記事
メチレンブルーが細胞に入る仕組み:還元、再酸化、膜分配
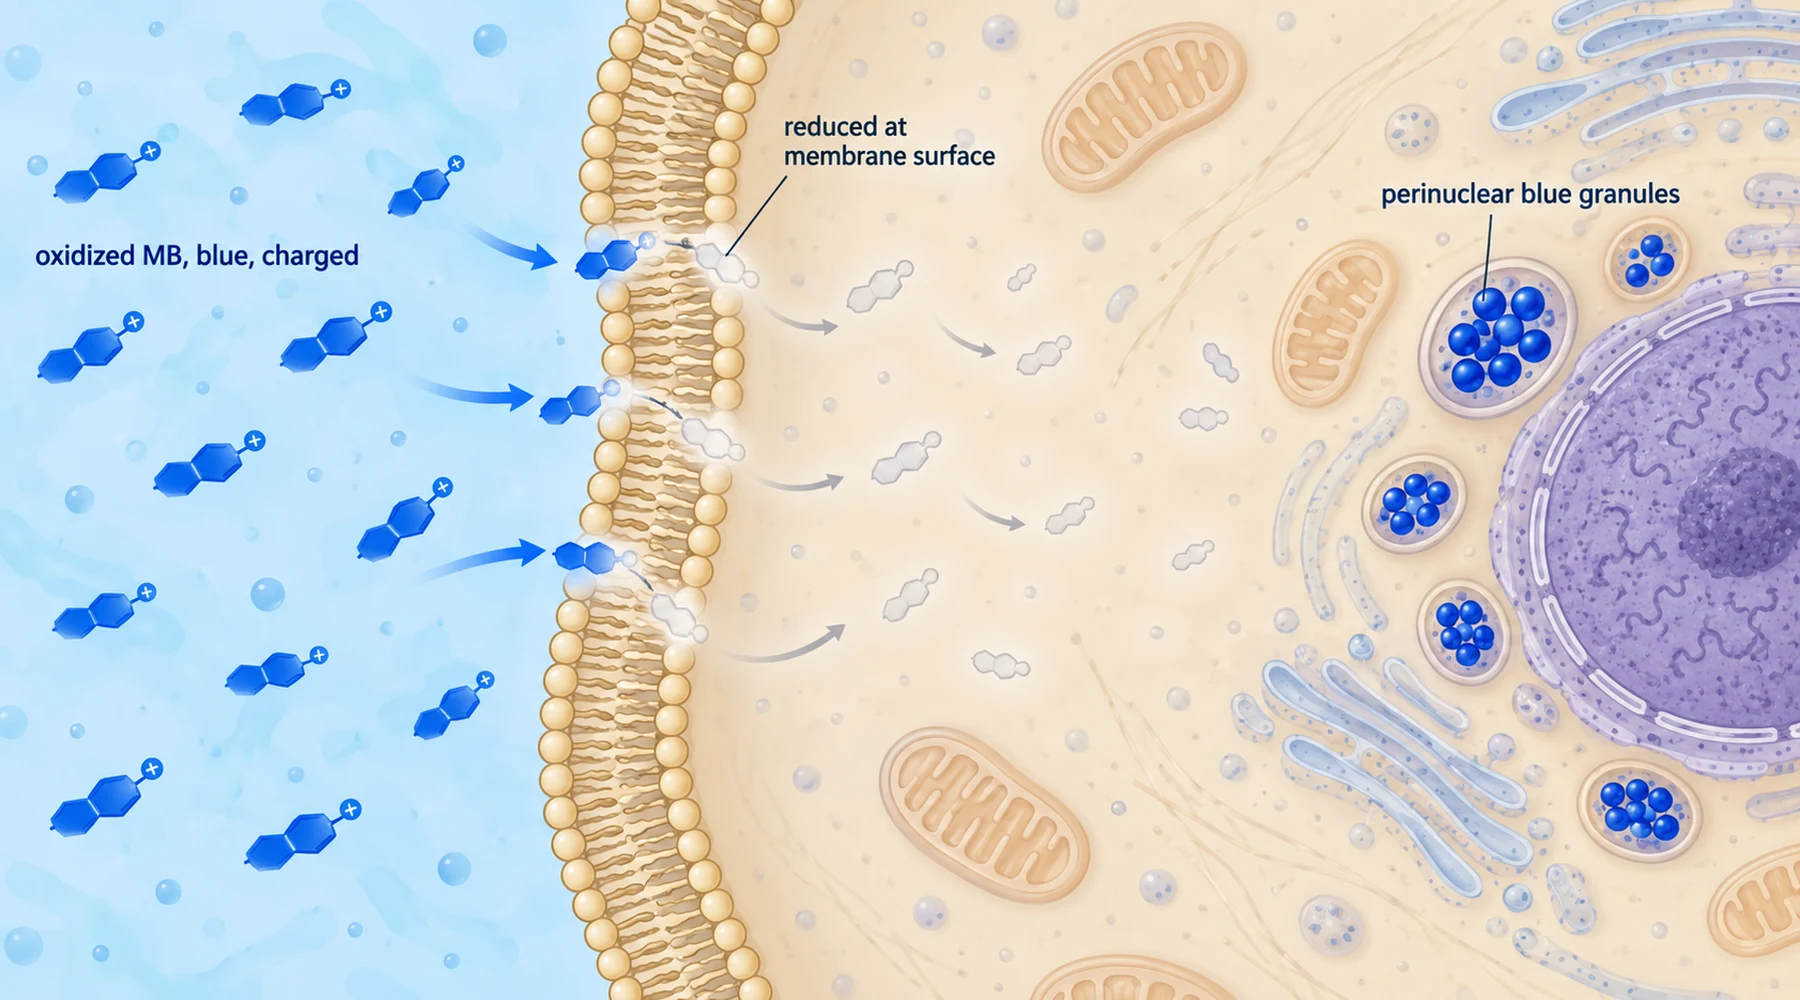
培養皿の内皮細胞がメチレンブルーを取り込む様子を見ると、自然に思える解釈が、実は誤った解釈でもあります。培地の青色が消え、細胞に青色の顆粒が現れるのだから、色素は青色の分子として膜を通り抜けたに違いない、という解釈です。実験はそうではないことを示しています。青色の形態はほとんど通過しません。通過するのは無色の形態であり、内部に見える青色は、到着後に内部で生じたものです。
この順序の逆転は、染色から何がわかり、何がわからないかを決めるため重要です。青色の顆粒が示すのは、再酸化されて細胞小器官内に捕捉された酸化型色素です。細胞内の総色素量も、還元型のプールも示さず、生物学的効果を測定するものでもありません。その理由を理解するには、表面での還元、還元型の拡散、内部での再酸化と捕捉という3つの段階をたどってください。
2つの形態は異なる分子のように振る舞う
酸化型メチレンブルーは、平面状で正に帯電した環構造を持ちます。水に溶け、600から700 nanometers付近の光を強く吸収し、青く見えます。重要なのは電荷です。帯電した親水性分子は脂質膜を容易には通り抜けないため、文献での慎重な表現は「膜を比較的透過しにくい」であり、「透過しない」ではありません。
ロイコメチレンブルーと呼ばれる還元型メチレンブルーは、無色で電荷を持たず、脂溶性です。電荷がなくなると、膜は障壁ではなくなります。還元型分子は容易に拡散して通過し、内部のより酸化的な区画に入ると、再び電子を失って、青色で帯電し、捕捉される形態に戻ることができます。したがって、色素の酸化還元化学は、その輸送機構でもあります。電子数が変わると、透過性も変わります。
最初の段階で使われる電子は、細胞自体から供給されます。哺乳類の細胞は細胞膜を横断する電子伝達を行い、細胞内の供与体から表面の受容体へ還元当量を移動させます。この細胞膜を横断する活性は、多くの細胞種に見られる正常な細胞機能です。チアジン色素を扱う内皮表面の還元酵素には、他の同様の酵素に共通する、重要な特徴があります。後段の過程を停止させる用量のシアン化物とアジ化物が存在しても、働き続けることです。この分離が、仕組み全体を理解する鍵になります。
分配という説明が先行し、取り込みをほぼ説明した
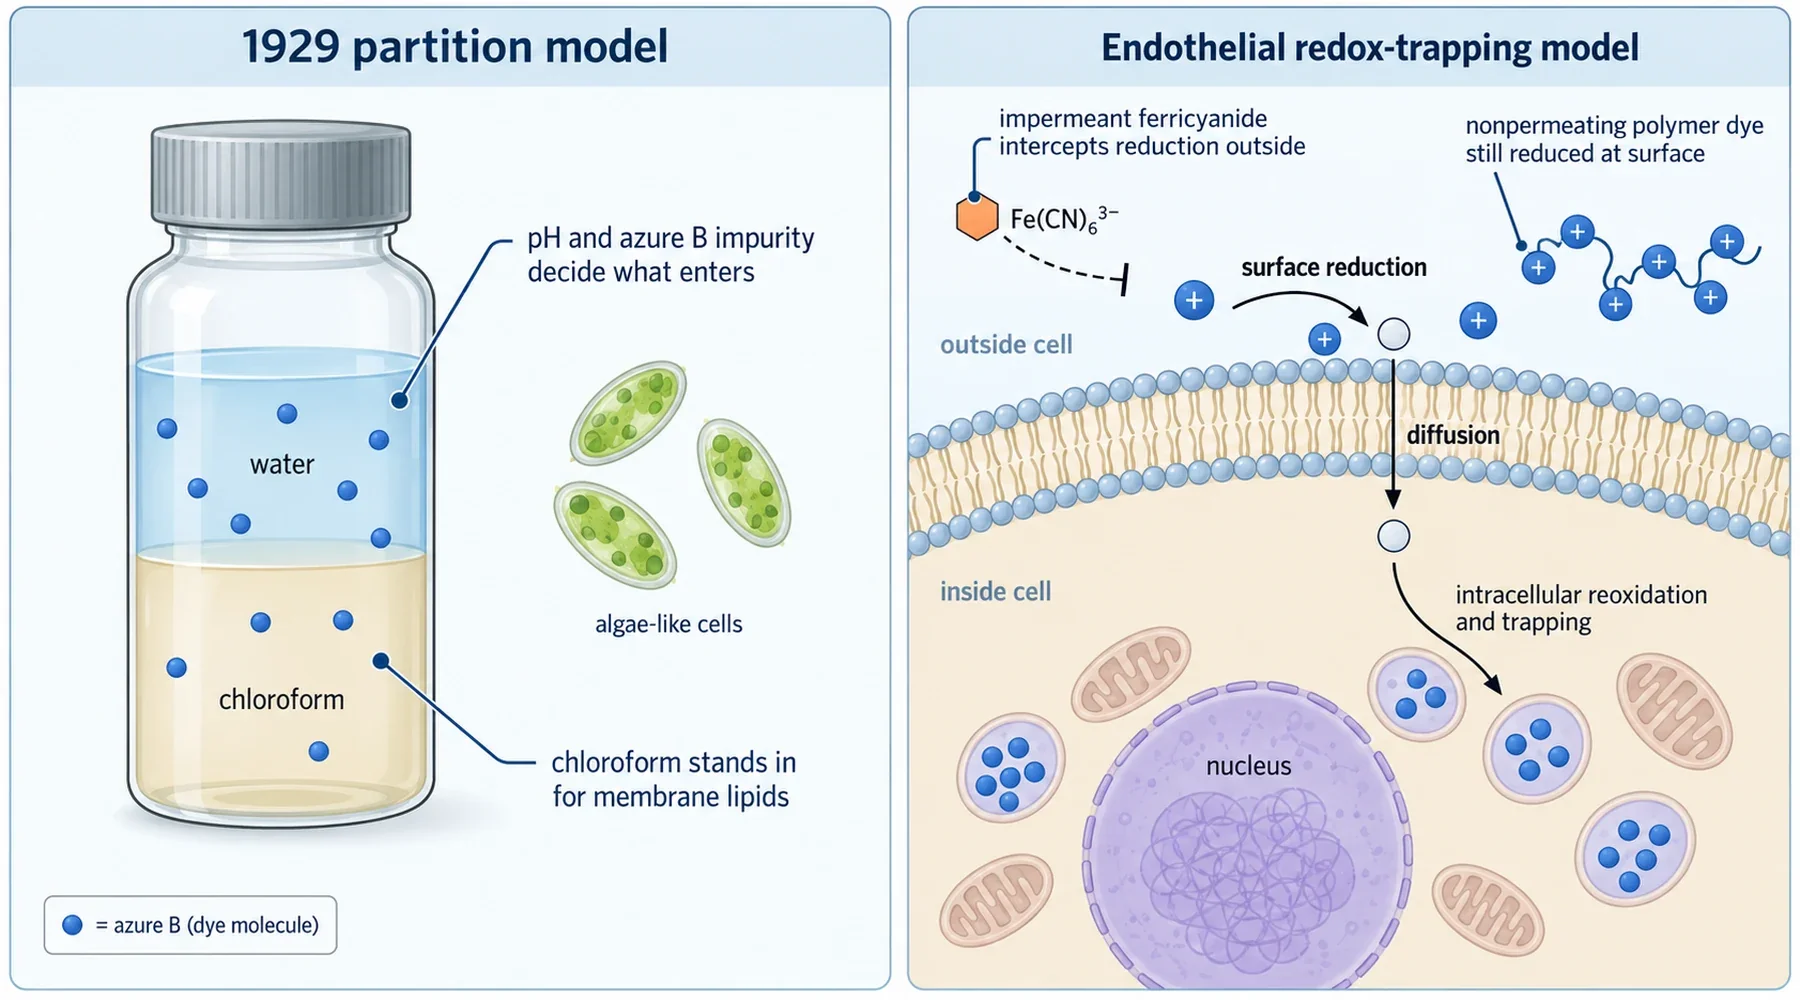
1929年、ロックフェラー研究所のMarian Irwinは、より単純な問いを立てました。色素の侵入は単に水と細胞の脂質層との間の分配であり、実験台上ではクロロホルム層を脂質層の代わりにできるのではないか、という問いです。彼女の分光光度法による浸透研究では、色素の水溶液をクロロホルムと振り混ぜ、有機相へ移ったものと、生きた藻類細胞に入ったものを比較しました。
この研究の2つの知見は、現在も注目に値します。第1に、市販のメチレンブルー溶液には、現在アズールBと呼ばれるトリメチルチオニンが含まれ、この不純物はメチレンブルー自体より速く浸透しました。特に、脂溶性の遊離塩基型が優勢になるアルカリ性pHで顕著でした。メチレンブルーの侵入に見えた現象の一部は、実際にはアズールBの選択的な侵入でした。第2に、pHはイオン化状態を決めることで結果を左右し、損傷した細胞は無傷の細胞よりはるかに多くの色素を取り込みました。人工的な系と生きた細胞のそれぞれが何を吸収するかは、分配係数と電荷状態に支配されていました。両者の類似は、細胞境界に非水性の層があるという考えを支持しました。
このモデルは脂質とイオン化について先見性がありましたが、色素がそのまま分配される場合と、表面で化学的に変換され、別の姿で通過し、内部で元に戻る場合を区別できませんでした。その区別には別の実験が必要であり、70年後に肺の内皮細胞で行われました。
外部で還元され、内部で捕捉される
Merkerらは培養ウシ肺動脈内皮細胞を用い、3段階の過程を提案しました。酸化型色素が細胞表面で無色の親油性形態に還元され、還元型が拡散して内部に入り、細胞内の再酸化によって膜を透過しない酸化型が再生され、蓄積するという過程です。彼らの内皮細胞によるチアジン取り込み研究は、特定の箇所でこの過程を遮断することにより、順序を検証しました。
最初の道具は、細胞内に入れない電子受容体であるフェリシアン化物でした。表面酵素が細胞外で青色色素を無色の形態に還元すると、フェリシアン化物がその電子を奪い返し、膜を通過する前に培地中で青色色素を再生できます。フェリシアン化物が過剰に存在する間(色素10 micromolarに対してフェリシアン化物50から500 micromolar)、色素の取り込みはほぼ停止し、フェリシアン化物が消費された後にのみ、通常の速度で再開しました。反応速度も、別の形で同じ仕組みを示しました。フェリシアン化物はほぼ一定の速度で減少し、再利用可能な媒介物質へ供給される一定の表面還元フラックスと整合しました。一方、細胞外の色素は、そのプールが減るにつれて指数関数的に減少しました。一定のフラックスと減少するプールの組み合わせは、フェリシアン化物のシグナルが、色素分子が溶液から離れることではなく、継続的な還元を示すことを意味します。
第2の道具は、膜を通過する段階自体をなくしました。研究グループは、近縁のチアジン色素であるトルイジンブルーOを、どちらの酸化状態でも細胞内に入れないほど大きなポリアクリルアミド鎖に結合させました。それでも細胞は、つながれた色素を還元しました。したがって、還元には細胞内へのアクセスが必要ありません。その機構は表面に露出しているか、表面と電気的に結合しています。
次に、この論文の表題の根拠となる分離が示されました。2 millimolarのシアン化物とアジ化物は、色素の蓄積を強く抑制しました。顕微鏡下では、通常は核の周囲を囲む濃青色と紫色の封入体がほぼ消失しました。しかし、どちらの阻害物質も細胞外の還元を遅らせませんでした。フェリシアン化物の循環は低下せずに続き、膜を透過しない高分子も依然として還元されました。遮断されたのは下流の過程でした。シアン化物とアジ化物が止めていたのは、表面での還元ではなく、細胞内での再酸化と隔離でした。生存性の対照もこの解釈を裏づけました。これらの処理中も、細胞は細胞質のマーカー酵素である乳酸脱水素酵素を保持していたため、取り込みの消失は単なる毒性や膜破裂によるものではありませんでした。
この論文の注意点の1つは、現在も当てはまります。青色の封入体は核の周囲にあり、核の内部にはありませんでした。これは細胞小器官内での酸化と整合しますが、研究ではどの細胞小器官かを特定していません。他の細胞種で見られた類似のパターンは、乏しい根拠でリソソーム性と呼ばれていました。捕捉は確立されたものとして、その場所は暫定的なものとして扱ってください。電子が次にどこへ行くかを追う読者は、ミトコンドリア電子伝達と酸化還元の処理、さらに広い視点の投与経路別の吸収と分布へ進むことができます。
染色は曝露ではない
第3の研究は、この取り込みの仕組みを生物学的な測定結果と結びつけると何が起こるかを示しています。Scottらは、環状の糖であるメチルβシクロデキストリンがメチレンブルーに直接結合し、包接複合体の会合定数は約310 per molarであるのに対し、色素の二量体化では約5846 per molarであることを見いだしました。L929線維芽細胞では、この結合が細胞染色とグルコース取り込みの促進の両方を阻害しました。シクロデキストリンと事前にインキュベートすると青色染色が防がれ、染色後に加えると脱色が速まりました。光学的な青色シグナルが細胞から失われるにつれて、活性化したグルコース輸送も密接に並行して弱まりました。
著者らは、この相関を、長く続く酸化ストレス機構よりも、色素とグルコース輸送体活性化経路のタンパク質との直接的な相互作用を支持するものと解釈しました。この推論は妥当ですが、限界があります。この実験はタンパク質を特定しておらず、輸送体自体への結合も示していません。また、脱色と効果の消失との相関によって、酸化還元を介するすべての経路を排除できるわけではありません。
長く通用する教訓は、測定に関するものです。光学的な染色が示すのは、可視で酸化型の、細胞に関連した色素です。無色の還元型プールはまったく捉えないため、淡く見える細胞にも色素当量が残っていることがあり、強く染まった細胞が示すのは捕捉された酸化型色素であって、組織の総曝露量や効果の大きさではありません。同じ注意は、より大きなスケールにも当てはまります。細胞種間で染色を比較したり、濃く染まった組織切片を高い曝露の証拠とみなしたりすると、培養皿での最初の誤りを繰り返すことになります。取り込みは還元、拡散、再酸化のサイクルであり、青色の形態の単一時点の像が捉えるのは、その一部分だけです。実験室での染色と取り扱いや、用量と曝露に関する主張の解釈への実務的な影響は、このことから直接導かれます。