
Articolo
Blu di metilene per la colorazione di DNA e RNA: applicazioni su gel e membrane
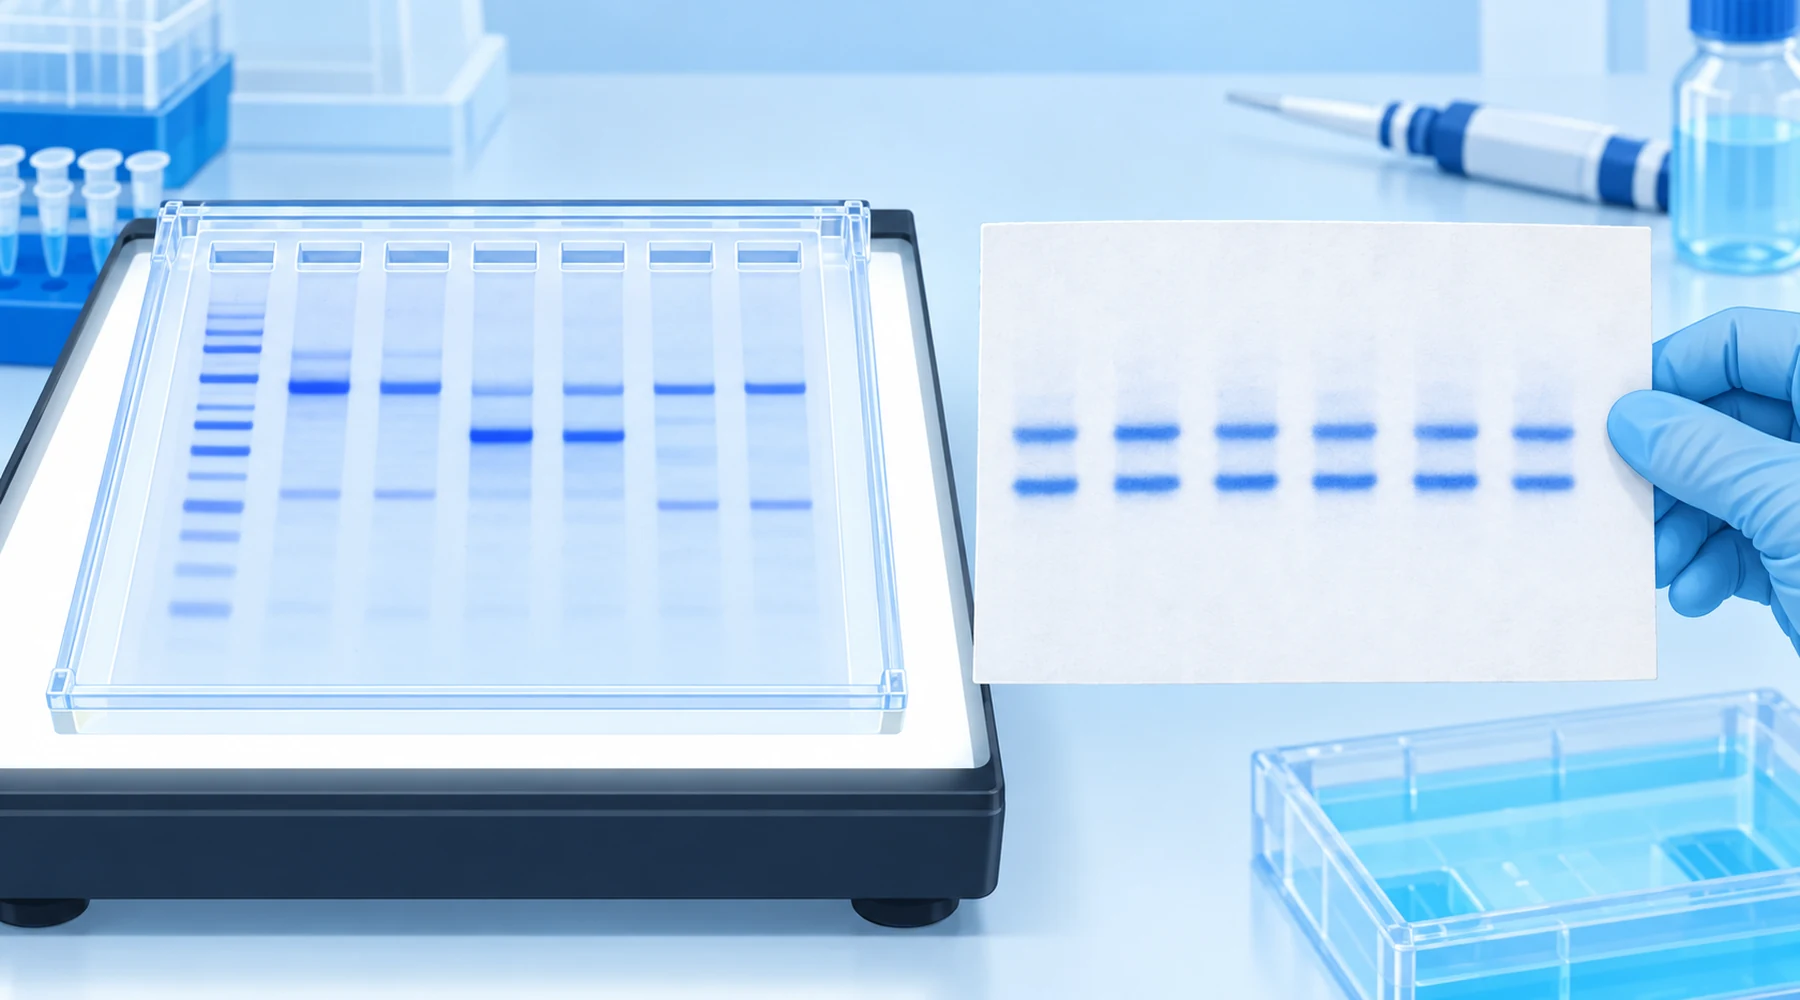
Uno studente esegue un'elettroforesi su gel di agarosio, colora il gel con blu di metilene e non vede nulla dove si aspettava una banda ben evidente. Nella postazione accanto, un ricercatore postdoc colora una membrana Northern con lo stesso flacone blu e ottiene bande ribosomiali nitide in tre minuti. Lo studente conclude che il gel non abbia funzionato. Il gel ha funzionato. Le due operazioni avevano scopi diversi, e lo stesso colorante risponde con sensibilità diverse, fondi diversi e regole diverse per le fasi successive.
La colorazione del DNA e quella dell'RNA con blu di metilene condividono la stessa chimica, ma non lo stesso scopo. In un gel, il colorante indica quanto acido nucleico si trova all'interno di una matrice porosa. Su una membrana, indica se il trasferimento ha funzionato e se le corsie sono state caricate in modo uniforme. Una volta chiarita questa distinzione, protocolli, limiti di rilevazione e limiti di compatibilità diventano comprensibili.
La risposta in breve
Il blu di metilene è un colorante cationico planare che si lega agli acidi nucleici in modo non covalente e reversibile, attraverso una combinazione di attrazione elettrostatica verso i fosfati, intercalazione tra le coppie di basi e associazione con il solco minore. Il punto è proprio la reversibilità. Le bande possono essere colorate, documentate alla luce visibile e poi decolorate, oppure il materiale può essere purificato per clonaggio, ibridazione o nuova ibridazione con una sonda.
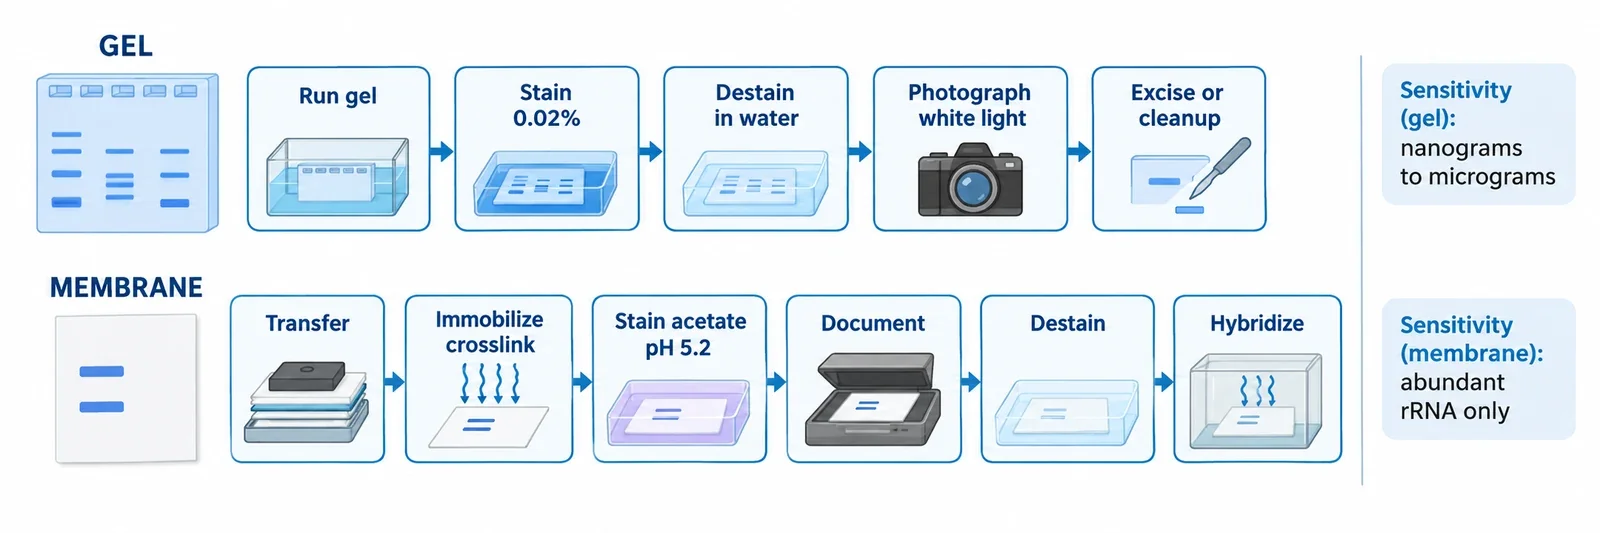
Per la colorazione con blu di metilene del DNA a doppio filamento nei gel di agarosio, la preparazione rapida standard è allo 0.02 per cento w/v (200 microgrammi per mL) in acqua, con circa 15 minuti di colorazione più circa 15 minuti di decolorazione in acqua e osservazione su un transilluminatore a luce bianca. Per le membrane, la preparazione classica per Northern blot contiene dallo 0.02 allo 0.04 per cento di colorante in acetato di sodio a pH vicino a 5.2, con diversi minuti di colorazione dopo il trasferimento e l'immobilizzazione, seguiti da un risciacquo in acqua e da una decolorazione completa prima dell'ibridazione. La sensibilità è modesta: da decine a centinaia di nanogrammi per banda su gel in buone condizioni, mentre le guide più prudenti indicano da 0.5 a 1 microgrammo. Questi valori sono superiori di diversi ordini di grandezza ai limiti del bromuro di etidio e dei coloranti SYBR. Sulle membrane non esiste un unico limite di rilevazione utile per un singolo trascritto, perché il colorante mostra soprattutto l'abbondante RNA ribosomiale e il materiale totale caricato. Non sostituire il reagente di nessuna delle due preparazioni con una soluzione di integratore venduta al dettaglio. I metodi validati presuppongono un colorante di grado analitico, tamponi definiti e manipolazione priva di RNasi quando si lavora con RNA.
Come funziona il legame e dove può trarre in inganno
Il modello utile comprende tre elementi. Primo, il sistema di anelli a carica positiva è attratto dallo scheletro fosfato a carica negativa. Gli studi spettroscopici rilevano che questa componente elettrostatica è dominante a bassa concentrazione salina, mentre la modellazione e la dinamica molecolare indicano l'intercalazione e il legame al solco minore come modalità stabili per il DNA a doppio filamento, come riassunto in uno studio spettroscopico sul legame del blu di metilene al DNA. Secondo, esiste una certa preferenza per GC: la modellazione favorisce i passi CpG e GpC e gli esperimenti riportano un'associazione preferenziale con duplex ricchi di GC negli studi sulle preferenze di intercalazione del blu di metilene, ma anche i duplex AT legano il colorante. La colorazione di routine non è specifica per una sequenza. Terzo, il DNA a singolo filamento e l'RNA si legano principalmente attraverso interazioni elettrostatiche e impilamento con le basi accessibili e le regioni a doppio filamento; per questo l'intensità della colorazione varia con la lunghezza, la sequenza e la struttura secondaria.
Ne derivano due conseguenze. Poiché il legame è non covalente, il colorante viene rimosso dai lavaggi. Le bande nei gel di poliacrilammide sbiadiscono rapidamente, a meno che non vengano fissate intenzionalmente, ed esiste una variante dedicata con fissazione permanente proprio perché la colorazione normale è temporanea, come descritto da Soto e Draper per i gel PAGE. Poiché il colorante è un fotosensibilizzatore, un'illuminazione intensa e prolungata del DNA colorato in presenza di ossigeno può ossidare la guanina e, col tempo, causare rotture nei filamenti, un meccanismo descritto in dettaglio negli studi sull'ossidazione della guanina fotosensibilizzata dal blu di metilene. Una breve osservazione alla luce bianca evita il noto danno da UV delle procedure classiche con bromuro di etidio, e questo vantaggio è concreto per il recupero preparativo. La luce visibile è meno aggressiva, non innocua. Mantieni breve l'illuminazione quando il DNA sarà destinato al clonaggio. Per la fotochimica più ampia alla base di questa precauzione, consulta le due vie della fotochimica del blu di metilene. Per la coppia redox e gli stati di carica che spiegano perché la forma ossidata si lega e quella ridotta no, consulta la chimica della struttura e delle proprietà del blu di metilene.
Prima applicazione: colorazione all'interno dei gel
La colorazione dei gel risponde a una domanda: c'è abbastanza acido nucleico in questa banda da poterlo vedere a occhio nudo? Il DNA a doppio filamento in agarosio è il caso meglio caratterizzato. Il metodo originale di colorazione dei gel con blu di metilene di Flores e colleghi ha validato il protocollo rapido allo 0.02 per cento su agarosio all'1 per cento e ha dimostrato il successivo recupero e clonaggio. Lo stesso protocollo del fornitore compare nella pagina del prodotto blu di metilene di IBI Scientific, che presenta affiancate la preparazione allo 0.04 per cento per membrane e la variante rapida per gel.
Procedura pratica:
- Esegui l'elettroforesi del gel normalmente. Colora dopo l'elettroforesi, non durante, a meno che il trasferimento o la risoluzione non siano stati validati per un metodo modificato.
- Immergi il gel in blu di metilene allo 0.02 per cento w/v in acqua distillata, con agitazione delicata, per circa 15 minuti.
- Decolora con diversi cambi d'acqua, per circa 15 minuti complessivi, finché il fondo della matrice diminuisce e le bande risaltano.
- Fotografa subito su un illuminatore a luce bianca.
Agarosio e poliacrilammide si comportano diversamente. L'agarosio trattiene il colorante nella matrice, quindi la decolorazione è la fase lenta. I gel sottili di poliacrilammide si colorano rapidamente, ma perdono anche rapidamente il colorante: questo facilita l'escissione preparativa e penalizza la documentazione da archiviare. Gli oligonucleotidi sintetici in poliacrilammide possono essere individuati con la stessa preparazione allo 0.02 per cento in 20–30 minuti, con ripetuti lavaggi in acqua, seguendo metodi PAGE consolidati sul modello di Current Protocols. Sono state riportate varianti molto diluite, intorno allo 0.0002 per cento in TBE diluito, per oligonucleotidi preparativi nell'arco di diverse ore, ma la base di evidenze è più debole.
La distinzione tra DNA e RNA conta. Il DNA a doppio filamento offre il legame strutturato più forte. L'RNA e il DNA a singolo filamento si colorano, ma in modo più debole e meno prevedibile. Per i gel di RNA in agarosio con formaldeide, la maggior parte dei laboratori evita la colorazione con blu di metilene nel gel e trasferisce prima l'RNA su una membrana, per poi colorarlo lì. Questo passaggio sostituisce un segnale debole nel gel con un segnale più nitido sulla membrana e una documentazione del caricamento.
Seconda applicazione: colorazione sulle membrane
La colorazione delle membrane risponde a una domanda diversa: il trasferimento ha funzionato e le corsie sono confrontabili? L'applicazione classica è la colorazione reversibile per Northern blot di Herrin e Schmidt, originariamente con colorante allo 0.04 per cento in acetato di sodio 50 mM a pH 5.0 per 2–3 minuti, seguita da un risciacquo in acqua e rimovibile con SDS diluito in SSPE prima dell'ibridazione.
La variante moderna ampiamente utilizzata si svolge così:
- Trasferisci RNA o DNA denaturato su nylon o nitrocellulosa, quindi immobilizzalo mediante reticolazione con UV o trattamento termico, per evitare che il campione vada perso durante la colorazione.
- Facoltativo ma comune: bagna la membrana in acido acetico al 5 per cento per circa 15 minuti.
- Colora per 5–10 minuti in blu di metilene dallo 0.02 allo 0.04 per cento in acetato di sodio da 0.3 a 0.5 M, a pH vicino a 5.2.
- Risciacqua e decolora in acqua per 5–15 minuti, documenta, quindi rimuovi il colorante residuo prima dell'ibridazione.
Il nylon a carica positiva è il materiale predominante nei Northern. Anche la nitrocellulosa funziona con la stessa procedura basata su acido acetico e acetato. L'immagine serve a confermare il trasferimento, confrontare le bande 28S e 18S (oppure 23S e 16S per l'RNA batterico), segnare i marcatori e gli standard e conservare una documentazione approssimativa per la normalizzazione dell'RNA totale. Metodi Northern pubblicati quantificano le bande ribosomiali colorate per controllare il caricamento, compreso uno studio nel settore lattiero-caseario che ha usato bande ribosomiali colorate con blu di metilene per la normalizzazione. Le membrane Southern possono essere visualizzate allo stesso modo, ma il colorante è molto più consolidato come controllo del caricamento e del trasferimento nei Northern; inoltre, il DNA dei Southern viene denaturato prima del trasferimento, quindi i valori di sensibilità dei gel non sono direttamente applicabili.
Limiti di rilevazione e fondo: dove il blu perde terreno
Il confronto seguente è volutamente approssimativo. Le prestazioni del colorante dipendono dalla percentuale del gel, dalla larghezza delle bande, dall'ottica e dalla cura nella decolorazione. Considera ogni numero come un ordine di grandezza, non come una specifica.
| Colorante e formato | Rilevazione approssimativa per banda | Interpretazione |
|---|---|---|
| Blu di metilene, dsDNA in agarosio | Da 40 a 250 ng in condizioni ottimizzate; da 0.5 a 1 microgrammo secondo stime prudenti | Sufficiente per carichi preparativi e gel didattici. Poco adatto alle bande in tracce. |
| Blu di metilene, ssDNA corto, RNA o oligonucleotidi in PAGE | Circa da 0.1 a 0.5 microgrammi | Dipende da lunghezza e struttura. Nessun limite universale. |
| Bromuro di etidio, dsDNA in agarosio | Circa da 1 a 10 ng | Circa quattro volte più sensibile del blu in condizioni ottimizzate nel confronto di Flores. Richiede UV. |
| SYBR Green I, dsDNA | Circa 60 pg | Richiede acquisizione di immagini in fluorescenza. |
| SYBR Gold, DNA e RNA | Circa 25 pg | Oltre dieci volte più sensibile del bromuro di etidio in diversi formati. |
| Colorazione argentica, acidi nucleici in PAGE | Circa da 0.3 a 0.9 ng; riportati 100 pg di RNA in una sequenza ottimizzata dal blu alla colorazione argentica | Molto sensibile, ma chimicamente complessa e poco adatta al recupero. |
| Blu di toluidina, RNA e oligonucleotidi in PAGE | Quantità operative di centinaia di ng, circa 250 ng documentati | Luce visibile come per il blu di metilene, ma senza un limite standardizzato confrontabile con le specifiche SYBR. |
Il controllo del fondo determina se il segnale modesto è utilizzabile. Il colorante libero è intensamente colorato, quindi il contrasto deriva dalla rimozione del colorante non legato senza asportare quello legato. Un colorante più concentrato raramente aumenta la sensibilità. Aumenta soprattutto il tempo di decolorazione. Esegui una serie di diluizioni con lo stesso gel, la stessa membrana e la stessa fotocamera, e usa solo l'intervallo in cui la densità integrata rimane proporzionale alla quantità introdotta. Il blu di metilene consente una normalizzazione semiquantitativa del caricamento. Non è un saggio quantitativo ad ampia gamma dinamica, perché capacità della membrana, efficienza del trasferimento, saturazione e decolorazione variano da una corsia all'altra.
Limiti di compatibilità: cosa resta utilizzabile dopo la colorazione
Il clonaggio dopo colorazione con blu di metilene è stato dimostrato. Flores e colleghi hanno escisso bande di agarosio colorate, recuperato il DNA ed eseguito ligazione e trasformazione, riportando risultati di clonaggio migliori rispetto al bromuro di etidio con UV. La ragione probabile è un minore fotodanneggiamento, non un beneficio del colorante in sé. Mantieni breve l'esposizione alla luce bianca e sottoponi il DNA recuperato a una normale purificazione mediante estrazione da gel.
Le evidenze per PCR e sequenziamento sono più limitate. Il colorante residuo si lega agli acidi nucleici, quindi decolora e purifica prima delle fasi enzimatiche. Ci si aspetta che il DNA correttamente purificato da un gel colorato con blu di metilene funzioni, ma la tolleranza al trascinamento diretto del colorante nelle diverse polimerasi e chimiche di sequenziamento non è ben quantificata. Non darla per scontata.
L'ibridazione su blot è compatibile quando si rispetta rigorosamente l'ordine: trasferimento, immobilizzazione, colorazione, documentazione, decolorazione, ibridazione. Questa sequenza è alla base del metodo di Herrin e Schmidt. Colorare prima del trasferimento o saltare la decolorazione significa adottare un metodo diverso, che richiede una propria validazione. Dopo la rimozione del colorante, la rimozione standard della sonda e la nuova ibridazione procedono normalmente. Per la colorazione a livello cellulare con la stessa famiglia di coloranti e per capire perché la logica degli strisci fissati non si applica ai metodi su cellule vive, consulta l'atlante delle colorazioni per microscopia.
L'escissione delle bande funziona per l'agarosio preparativo e per gli oligonucleotidi in PAGE individuati con il blu, purché si eviti la variante con fissazione permanente. L'elettroeluizione dopo decolorazione è chimicamente plausibile per un legante reversibile, ma i dati controllati sulla resa specifici per il blu di metilene sono scarsi. Dopo l'eluizione, esegui una dissalazione o una precipitazione.
Problemi ricorrenti
Bande deboli sul gel indicano di solito una massa troppo bassa per una colorazione colorimetrica, soprattutto per bersagli corti a singolo filamento o di RNA. Carica più materiale, usa colorante fresco, prolunga la colorazione prima di aumentare la concentrazione e interrompi prima la decolorazione. Un gel uniformemente blu senza contrasto indica di solito una colorazione eccessiva o troppo pochi cambi d'acqua. Lo sbiadimento delle bande PAGE è un comportamento chimico previsto, non una colorazione fallita. Fotografa rapidamente. Un fondo disomogeneo sulla membrana suggerisce pieghe, bolle, impronte, agitazione irregolare o trasferimento disomogeneo. Non interpretarlo come un caricamento disuguale senza un controllo di ibridazione. Un profilo ribosomiale debole e diffuso può indicare degradazione, ma anche trasferimento incompleto, troppo poco RNA totale (le corsie tipiche contengono da alcuni a decine di microgrammi) o decolorazione eccessiva. Il colorante evidenzia l'abbondante RNA ribosomiale. Non evidenzia un trascritto specifico. Quello è il compito della sonda.
Sicurezza e manipolazione senza esagerazioni
Il blu di metilene è più semplice da maneggiare del bromuro di etidio, ma non è innocuo. Una scheda di dati di sicurezza attuale di MilliporeSigma classifica il colorante nella Categoria 4 di tossicità orale acuta, nocivo se ingerito, con smaltimento attraverso un circuito autorizzato secondo la scheda di dati di sicurezza del blu di metilene di Sigma-Aldrich. Il bromuro di etidio presenta avvertenze più severe sulla genotossicità, compresi sospetti effetti sulle cellule germinali nella sua scheda di dati di sicurezza di Sigma-Aldrich, e i suoi gel e le sue soluzioni vengono comunemente raccolti separatamente come rifiuti chimici pericolosi, come indicato nella guida ai coloranti per acidi nucleici di Thermo Fisher. Per entrambi, segui la scheda di dati di sicurezza e le regole dell'istituzione. Mantieni il colorante secco ben chiuso e asciutto, riutilizza la soluzione di lavoro solo se il protocollo lo consente, conserva le membrane colorate asciutte tra fogli di carta da filtro e fotografa i gel prima che le bande si disperdano per diffusione.
Ricorda la regola pratica da banco. I gel verificano la visibilità a carichi elevati sotto luce bianca. Le membrane verificano trasferimento e caricamento prima che la sonda svolga il lavoro più sensibile. Un solo colorante serve a entrambi gli scopi, con sensibilità modesta, legame reversibile e un ordine rigoroso delle operazioni.