
Artigo
Azul de metileno e NAD+/NADH: interpretar o equilibrio redox celular
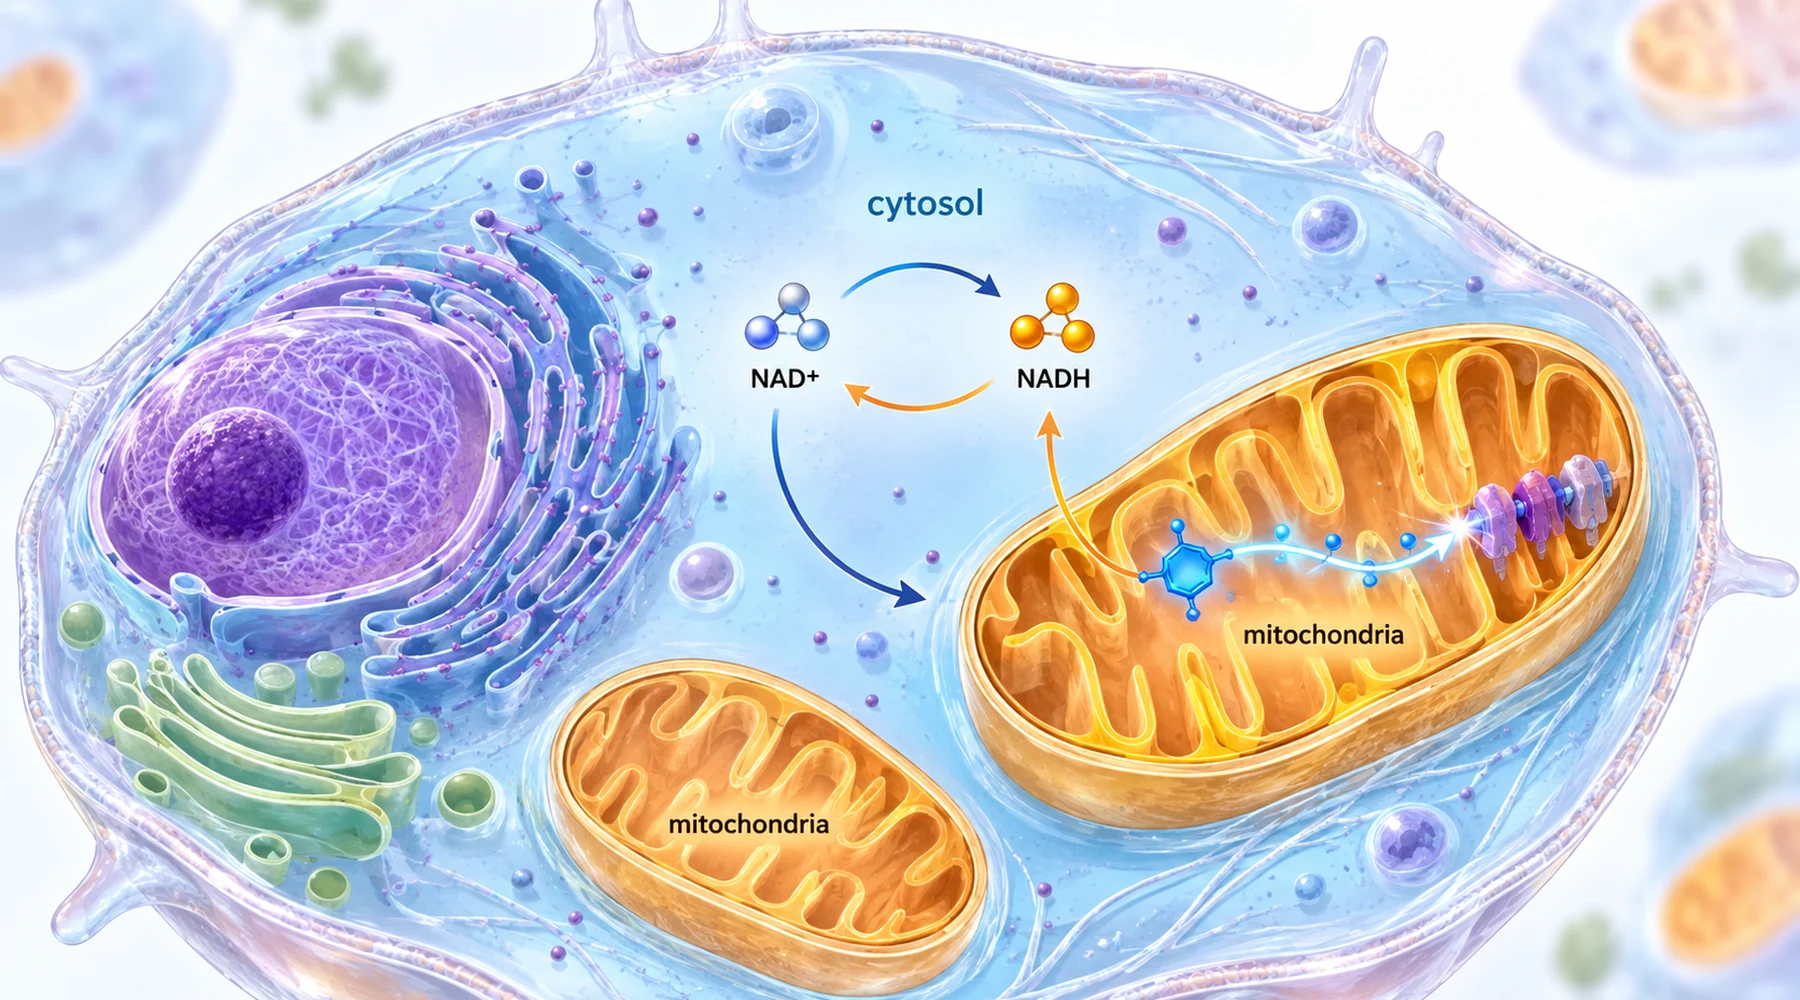
Os informes sobre o azul de metileno e o NAD+ tenden a mesturar tres afirmacións distintas nunha soa. A primeira é que a relación entre NAD+ e NADH se desprazou cara ao estado oxidado. A segunda é que a célula contén máis NAD total. A terceira é que se recuperou a produción de enerxía. Parecen formar un único relato sobre o restablecemento do metabolismo. Nos experimentos adoitan darse por separado, e os resultados interesantes son precisamente os casos nos que diverxen.
A confusión é comprensible porque as tres magnitudes comparten vocabulario. O NAD+ acepta electróns nas reaccións metabólicas e convértese en NADH; despois, as mitocondrias oxidan o NADH de novo a NAD+ no complexo I e utilizan a enerxía liberada para impulsar a síntese de ATP. Hai unha explicación máis completa desa ruta dos electróns na explicación do transporte mitocondrial de electróns, e da vertente enerxética en ATP e metabolismo enerxético. Pero unha relación e unha reserva son cousas distintas. A relación indica como se distribúe a frota de transportadores existente entre os estados cargado e descargado. A reserva indica cantas moléculas transportadoras existen en total. Unha mellor relación coa mesma reserva significa redistribución, non fabricación.
Dous compartimentos, dous indicadores
Hai unha segunda distinción que provoca interpretacións erróneas pouco evidentes. As reservas citosólica e mitocondrial de NAD están en gran medida separadas pola membrana mitocondrial interna, polo que cada compartimento pode manterse relativamente oxidado ou reducido de forma independente. Un único valor para toda a célula oculta isto.

A investigación no fígado permitiu medir esa separación entre compartimentos. O equilibrio entre lactato e piruvato indica a relación citosólica entre NAD+ e NADH, porque a lactato deshidroxenase vincula eses dous pares. O equilibrio entre 3-hidroxibutirato e acetoacetato indica a relación mitocondrial mediante un acoplamento semellante. Cando se miden ambos os pares en tecido conxelado rapidamente por pinzamento, como no estudo de alimentación crónica con etanol en ratas, obtéñense dúas lecturas redox dun mesmo fígado, e un composto pode modificar unha máis ca a outra.
O azul de metileno actúa neste sistema como transportador de electróns, non como combustible. Acepta electróns do NADH preto do complexo I, redúcese e despois cédellos a transportadores situados máis adiante na cadea, como o citocromo c. O efecto neto é a oxidación do NADH sen percorrer toda a ruta normal. Ese mecanismo explica tanto o seu atractivo como o seu límite: pode aliviar un bloqueo redutivo, pero non reconstrúe un complexo danado nin sintetiza novas moléculas de NAD.
Cinco estudos, un patrón de resultados diverxentes
A táboa seguinte organiza os cinco estudos segundo o tecido, o criterio de avaliación redox, o criterio enerxético e o que realmente se recuperou. Cómpre ler as dúas últimas columnas como un par. Esa comparación é o núcleo do artigo.
| Tecido e agresión | Criterio de avaliación redox co azul de metileno | Criterio de avaliación enerxética e de sinalización | Resultado funcional |
|---|---|---|---|
| Fígado de rata, dieta crónica con etanol | Relacións NAD+/NADH citosólica e mitocondrial restablecidas en gran medida; glicerol 3-fosfato normalizado | ATP sen cambios co etanol ou co tratamento; lixeira caída do ATP co colorante no punto temporal tardío | Infiltración graxa sen cambios; os lípidos e o triacilglicerol mantivéronse elevados |
| Hepatocitos e fígado de rato con dieta rica en graxas | Aumento da relación NAD+/NADH e do contido de NAD+ nas células e no fígado | Aumento de SIRT1, desacetilación de PGC-1alpha, aumento do ADN mitocondrial e do uso de osíxeno, activación de AMPK dependente de SIRT1 | Redución da acumulación de graxa hepática e da esteatohepatite |
| Corazón de rata diabética | Redución da relación NADH/NAD+ durante a oxidación de substratos en mitocondrias illadas | Aumento da actividade de SIRT3; menor acetilación de lisina en 83 sitios de 34 proteínas | Mellora dos volumes cardíacos e da fracción de exección; o defecto do complexo I en si non se corrixiu |
| Retina de rato con deficiencia de AIF e células fotorreceptoras tratadas con rotenona | Relación NADH/NAD+ normalizada nas células; redución do estrés oxidativo | Déficit de ATP non corrixido nas células; atenuación das vías de estrés mitocondrial | Preservación do grosor retiniano e dos marcadores de fotorreceptores; mellora da supervivencia celular |
| Tendón de Aquiles humano e de rata, lesión por oxidantes e colaxenase | Equilibrio de NAD+ e química do NAD total restablecidos cara aos valores de control | Aumento do ATP e redución das ROS onde houbo recuperación | Mellora dos marcadores da matriz, agás baixo bloqueo directo do complexo I, no que a química cambiou pero o tecido non |
Onde a corrección redox non recuperou o tecido
O estudo máis antigo do conxunto segue sendo a advertencia máis clara. As ratas alimentadas con etanol como fonte do 36 por cento da enerxía desenvolveron relacións NAD+/NADH citosólica e mitocondrial máis baixas, medidas mediante ambos os pares indicadores, e o azul de metileno, a uns 42 mg por kg e día na dieta, evitou en gran medida eses cambios. Porén, o triacilglicerol hepático aproximadamente triplicouse no punto temporal tardío, tanto coa presenza do colorante como sen ela, e a histoloxía mostrou a mesma graxa centrolobular. Os autores extraeron directamente unha conclusión incómoda: o cambio redox que acompaña a oxidación do etanol non é, por si só, o que produce o fígado graxo. Un lector que equiparase unha relación corrixida cun órgano recuperado interpretaría mal este traballo. O deseño completo, incluídos os controis con alimentación pareada e a toma de mostras á medianoite no pico de intoxicación, detállase no estudo do etanol no fígado.
Isto contrasta co traballo sobre o fígado baixo unha dieta rica en graxas, no que o mesmo tipo de cambio na relación coincidiu cunha mellora real do tecido. Nos hepatocitos e no fígado de rato tras a administración oral, o azul de metileno aumentou a relación NAD+/NADH, e a cadea de sinalización seguiuse paso a paso: aumento de SIRT1, desacetilación de PGC-1alpha, aumento dos marcadores de bioxénese mitocondrial e do consumo de osíxeno, e posterior activación de AMPK, CPT-1 e PPARalpha; demostrouse que a activación de AMPK dependía de SIRT1. Os ratos coa dieta rica en graxas acumularon menos graxa hepática. A explicación proposta é que, neste caso, o cambio redox desbloqueou un eixe de regulación xénica, en vez de limitarse a reequilibrar a química, como se detalla no estudo de SIRT1 e AMPK no fígado. A mesma familia de medicións ca no estudo do etanol, pero cunha conclusión oposta no tecido. A diferenza está na vía que actúa despois, non só na relación.
Corazón e retina: sirtuínas, acetilación e recuperación sen ATP
O estudo do corazón diabético relaciona o cambio redox coa acetilación de proteínas a través dunha sirtuína diferente. As mitocondrias diabéticas presentan un exceso de acetilación de lisina nos encimas metabólicos, asociado á falta de flexibilidade no uso de substratos. O azul de metileno, a 10 mg por kg e día, facilitou a oxidación do NADH de forma dependente da dose nun intervalo de 6 a 18 micromolar en mitocondrias illadas, aumentou a actividade de SIRT3 e reduciu amplamente a acetilación, mentres os volumes cardíacos e a fracción de exección melloraron malia persistir a alteración subxacente do complexo I. O traballo describe de forma explícita o comportamento segundo a dose recollido noutras publicacións: as concentracións baixas favorecen o papel de transportador redutivo, mentres que as máis altas poden desviar os electróns de forma improdutiva, polo que o efecto é hormético e non monótono. A análise proteómica e as medicións cardíacas preséntanse no estudo da acetilación no corazón diabético. O marco do estrés oxidativo que sustenta isto trátase en estrés oxidativo e control das ROS.
O estudo da retina leva esta separación aínda máis lonxe. En ratos Harlequin con deficiencia de AIF, un defecto de ensamblaxe do complexo I, o azul de metileno preservou o grosor retiniano, os segmentos externos dos fotorreceptores e os marcadores de bastóns, conos, células de Muller e células ganglionares. Nas células fotorreceptoras 661W tratadas con rotenona, o colorante normalizou a relación entre NADH e NAD+ e reduciu as especies reactivas de osíxeno a 15 micromolar, pero o ATP mantívose baixo nas concentracións que favorecían a supervivencia. A estrutura e a supervivencia preserváronse sen recuperación enerxética, xunto coa atenuación da resposta mitocondrial ás proteínas non pregadas e da mitofaxia. Ese resultado reformula o papel do colorante como atenuante do estrés redutivo e oxidativo, máis ca como restaurador da enerxía, segundo se documenta no estudo de protección dos fotorreceptores retinianos.
Tendón: o experimento no que cambiou a química pero non o tecido
O traballo sobre o tendón de Aquiles contén ambos os patróns nun mesmo artigo e merece unha lectura pausada. A análise completa de cada rama experimental está na análise de 2026 sobre a tendinopatía de Aquiles. O tendón enfermo mostrou esgotamento de NAD+, unha relación baixa entre NAD+ e NADH, niveis baixos dos marcadores do complexo I, ATP baixo e coláxeno desorganizado. O azul de metileno restableceu a química do NAD e o ATP e mellorou os marcadores da matriz en preparacións de rata, explantes humanos e células.
Despois chegaron as dúas perturbacións. Baixo o bloqueo do complexo I con rotenona, o colorante seguiu protexendo a química do NAD+ e os indicadores relacionados co ATP, pero non conseguiu aliviar a carga oxidante, restablecer o equilibrio do coláxeno nin preservar a viabilidade. Coa redución da expresión de AIF, na que a maquinaria do complexo I estaba insuficientemente formada en vez de bloqueada farmacoloxicamente, o colorante logrou unha recuperación ampla: equilibrio do NAD, estrés oxidativo, potencial de membrana e marcadores do coláxeno. A lección é precisa. Pódese manter un mellor valor de NAD mesmo cando o complexo I está bloqueado, pero a recuperación do tecido nesta preparación dependía dunha vía funcional do complexo I. Neste caso, o cambio na relación é necesario sen ser suficiente, un punto desenvolvido con máis detalle no estudo redox do tendón.
Como interpretar a seguinte afirmación sobre redox
Tres comprobacións permiten evitar a maioría das interpretacións erróneas. Primeiro, hai que preguntar a que compartimento pertence a relación e que par indicador a produciu. Un resultado citosólico de lactato respecto a piruvato non di nada directamente sobre a matriz mitocondrial. Segundo, hai que preguntar se o traballo informa dun cambio na relación, dunha reserva total maior ou dunha recuperación do ATP, e tratar cada un como un achado separado. Terceiro, hai que preguntar que seguiu alterado: nestes traballos aparecen graxa non corrixida, un defecto do complexo I non corrixido ou un déficit de ATP non corrixido xunto cunha mellora redox real.
Nada disto é unha guía de dosificación. Os cinco estudos son traballos con animais, células ou preparacións de tecido sometidos a agresións controladas: dietas líquidas con etanol, diabetes por estreptozotocina, defectos xenéticos do complexo I, rotenona, peróxido e colaxenase. As concentracións en placas de cultivo non se poden converter en doses orais a simple vista, e ningunha persoa tomou azul de metileno para o equilibrio redox nestes traballos. O fío condutor para a farmacoloxía redox e a dosificación é máis limitado e máis útil ca calquera protocolo: o azul de metileno oxida o NADH e modifica a relación medida, as sirtuínas traducen ese cambio en desacetilación e reprogramación metabólica nalgúns tecidos, e que o tecido responda depende dunha maquinaria que o colorante non pode substituír.