
Article
Bleu de méthylène et progéria : enseignements d’un modèle cellulaire du vieillissement
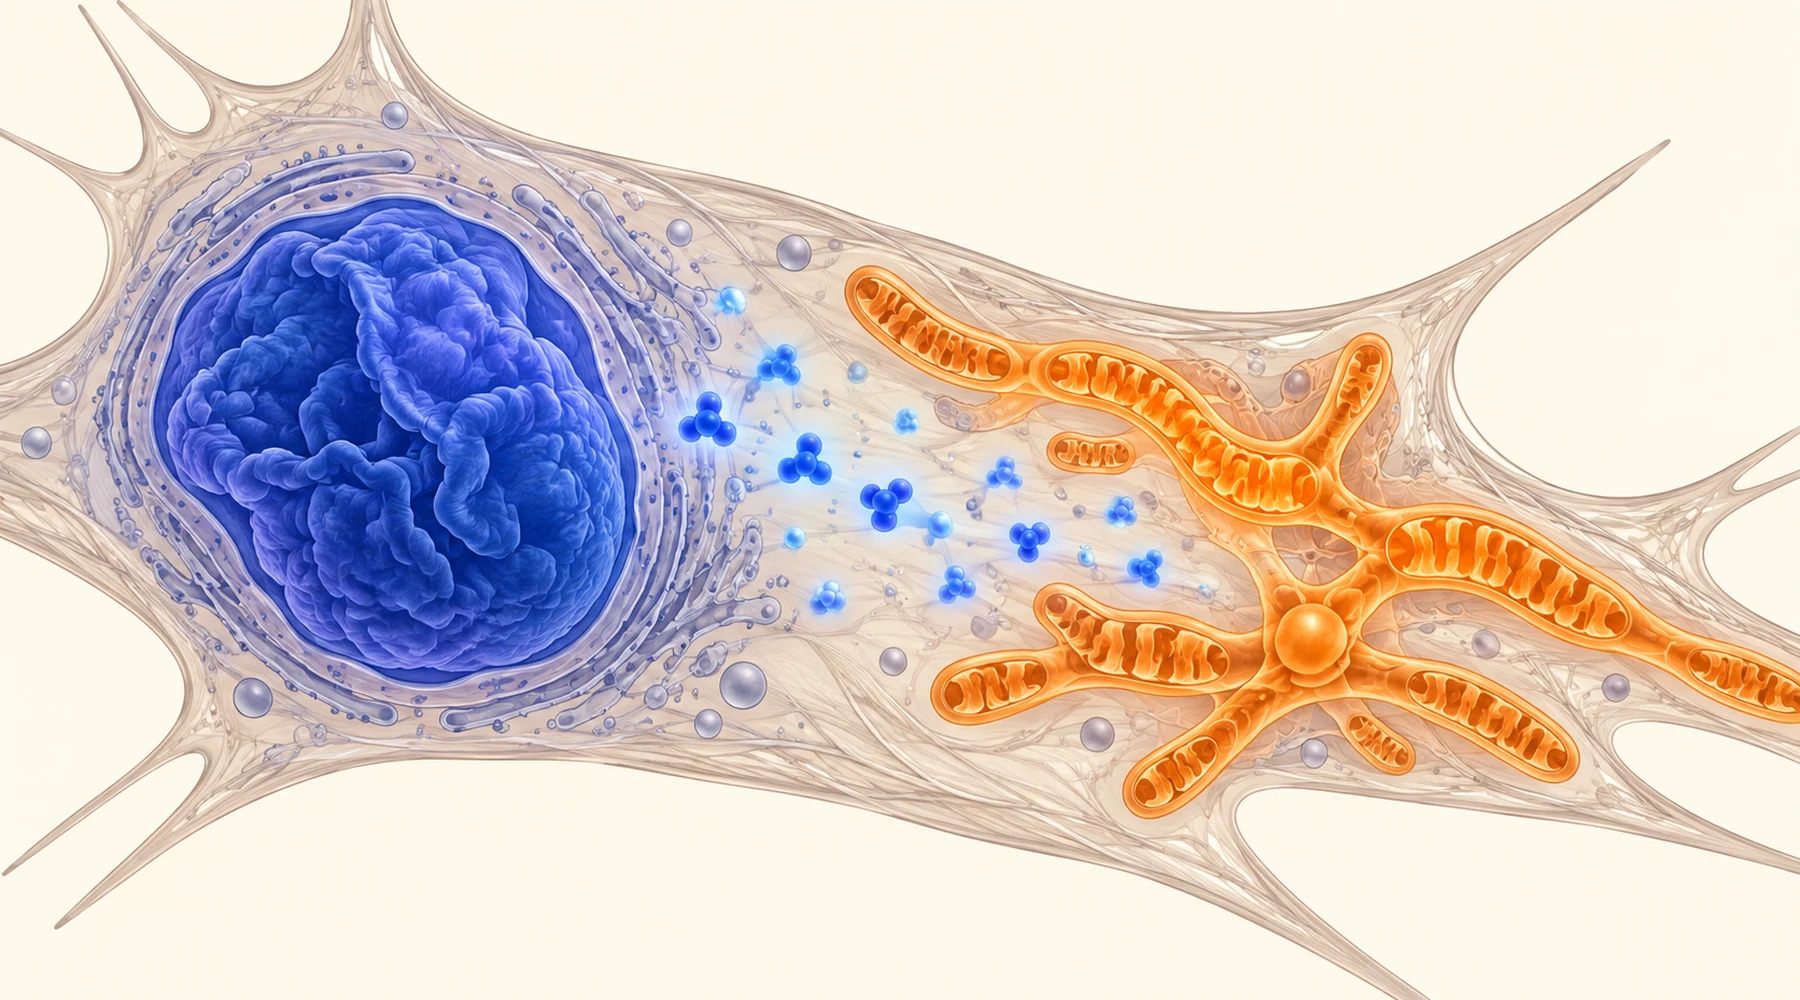
La modification d’une seule lettre dans un gène fait vieillir les enfants à une vitesse terrifiante. Perte de cheveux, raideur articulaire, rétrécissement des artères et espérance de vie limitée à l’adolescence. Cette maladie est le syndrome de progéria de Hutchinson-Gilford et, pendant des années, les recherches se sont concentrées sur le noyau, où la protéine mutante exerce ses effets délétères. Une étude menée en 2016 à l’Université du Maryland a posé une autre question : à quoi ressemblent les mitochondries dans ces cellules ? La réponse a établi un lien entre deux compartiments cellulaires, et un colorant bleu vieux d’un siècle a agi sur les deux.
L’étude est celle de Xiong et ses collègues, publiée dans Aging Cell en 2016. Elle a été menée exclusivement sur des cellules cultivées. Ce fait structure tout ce qui suit. Les résultats sont réels et précis. La distance qui les sépare de tout traitement l’est tout autant.
Le modèle : une mutation, une protéine qui reste accrochée
La progéria commence par une substitution de C par T à la position 1824 du gène LMNA. Cette modification ne change pas un acide aminé. Elle active un site d’épissage caché, ce qui supprime 50 acides aminés de la protéine lamine A. Le produit raccourci, appelé progérine, perd le site de clivage qui permettrait normalement à la cellule de retirer son ancre farnésyle. La progérine reste donc farnésylée en permanence et fixée à la membrane nucléaire interne, alors que la lamine A normale s’y associerait et s’en dissocierait de manière cyclique.
Les conséquences au niveau du noyau sont bien documentées et visibles au microscope. Les noyaux forment des bourgeonnements et des replis au lieu de conserver une forme ovale et lisse. L’hétérochromatine, l’ADN silencieux densément compacté qui borde normalement la périphérie du noyau, s’amincit. L’expression de milliers de gènes est modifiée. On peut imaginer la lamina nucléaire comme une ossature derrière du papier peint : lorsqu’un élément de cette ossature est soudé au mauvais endroit, le mur se déforme et le motif du papier se distord dans toute la pièce.
L’étude a utilisé des fibroblastes cutanés provenant de patients atteints de progéria, comparés à des cellules témoins au même nombre de passages, ainsi qu’une seconde lignée modifiée pour que des fibroblastes normaux produisent directement de la progérine. Les cellules modifiées ont développé les mêmes anomalies, ce qui attribue la responsabilité à la progérine plutôt qu’aux antécédents des patients ou au temps passé en culture. La gravité suivait la dose : la lignée exprimant davantage de progérine présentait des anomalies plus marquées dans l’ensemble des analyses.
À quoi ressemblaient les mitochondries
Dans des fibroblastes sains, les mitochondries forment un réseau ramifié autour du noyau, constitué de longs tubules qui se déplacent le long des structures du cytosquelette. Dans les lignées de progéria, ce réseau avait disparu. Une plus grande proportion de mitochondries était fragmentée, beaucoup étaient gonflées, et la microscopie électronique montrait une augmentation d’environ deux fois du nombre d’organites gravement endommagés. L’imagerie en accéléré montrait qu’elles parcouraient des distances plus courtes et se déplaçaient plus lentement que celles des témoins.
La fonction suivait la forme. Le superoxyde mitochondrial et les niveaux d’oxydants dans l’ensemble de la cellule augmentaient. Davantage de cellules présentaient une perturbation du potentiel membranaire. La production d’ATP diminuait. Pris isolément, rien de cela n’est surprenant, puisque des mitochondries endommagées libèrent des espèces réactives de l’oxygène et produisent moins d’énergie. La nouveauté résidait dans la cause proposée. PGC-1alpha, le coactivateur transcriptionnel qui stimule la biogenèse mitochondriale par l’intermédiaire de facteurs en aval tels que NRF1, TFAM et les régulateurs de fusion et de fission MFN1, MFN2, OPA1, FIS1 et DRP1, était réduit d’environ huit fois au niveau de l’ARNm dans les cellules de progéria, avec une diminution correspondante de la protéine. La progérine semblait inhiber le commutateur principal responsable de la production et de l’entretien des mitochondries. Ce lien entre les lésions de la lamina nucléaire et le métabolisme énergétique s’inscrit dans l’explication plus générale de la production d’énergie mitochondriale, tandis que l’aspect oxydatif de ce même équilibre est abordé dans le contexte du stress oxydatif et du contrôle des ROS.

Ce que le bleu de méthylène a modifié
Les chercheurs ont traité les cellules avec 100 nanomolaires de bleu de méthylène, une faible concentration, en continu pendant plusieurs semaines. Dans le contexte d’une culture cellulaire, il s’agit d’une exposition longue et modérée, et non d’une brève impulsion médicamenteuse. Le bleu de méthylène alterne entre des formes oxydées et réduites et peut transporter des électrons à l’intérieur des mitochondries, raison pour laquelle il est décrit comme un composé redox ciblant les mitochondries plutôt que comme un antioxydant ordinaire consommé lorsqu’il neutralise un oxydant.
Les mitochondries ont réagi aussi bien dans les cellules normales que dans celles de progéria. L’ATP a augmenté, les niveaux d’oxydants ont diminué et la proportion de mitochondries gravement défectueuses s’est réduite. L’expression de PGC-1alpha s’est partiellement rétablie, de même que celle de certaines de ses cibles en aval. Jusqu’ici, il s’agit d’un effet général de soutien mitochondrial, non spécifique à la progéria.
Les résultats nucléaires ont constitué la surprise, et ils étaient spécifiques aux cellules malades. Les bourgeonnements nucléaires ont diminué selon une analyse quantitative de la forme. Les quantités totales de lamines A et C ont augmenté. Plus remarquable encore, la progérine s’est redistribuée : dans les cellules de progéria non traitées, seulement environ 30 pour cent de la progérine se trouvait dans la fraction nucléoplasmique soluble, le reste étant ancré à la membrane. Après traitement, la part soluble a atteint environ 65 pour cent, proche du comportement normal des lamines. Une fois libérée de la membrane, la progérine entraîne moins ses protéines voisines avec elle, et les fractions solubles des lamines A et C se sont elles aussi rétablies.
En aval de cette libération, deux phénotypes nucléaires se sont améliorés. L’hétérochromatine périnucléaire, examinée par microscopie électronique et par coloration de la protéine d’hétérochromatine HP1-alpha, était visiblement restaurée. Le séquençage de l’ARN a également montré que le transcriptome revenait vers un profil plus normal : les cellules de progéria non traitées différaient des témoins pour plus de 3,200 gènes, tandis que les cellules de progéria traitées différaient pour environ 1,670. Dans les cellules normales, le même traitement ne modifiait que quelques dizaines de gènes, ce qui suggère que l’effet nucléaire est lié à la progérine plutôt qu’à une stimulation transcriptionnelle générale. Le principe selon lequel les préparations cellulaires et animales répondent à des questions plus limitées que ne le suggèrent leurs titres est expliqué dans comment lire les recherches sur le bleu de méthylène.
Pourquoi ce n’est pas un traitement
Quatre limites maintiennent cette étude à sa juste place : le laboratoire.
Premièrement, tout s’est déroulé dans des boîtes de culture. Les fibroblastes cultivés ne disposent ni d’un apport sanguin, ni d’un contexte immunitaire, ni d’une architecture tissulaire, ni de la pharmacologie à l’échelle de l’organisme qui détermine si un composé atteint réellement sa cible. Aucun animal n’a reçu de dose et aucun patient n’a été traité dans cette étude.
Deuxièmement, les fibroblastes de progéria constituent un modèle d’un seul type cellulaire. La maladie entraîne principalement ses conséquences mortelles au niveau des artères, des os et du tissu adipeux, et l’étude n’a examiné que des fibroblastes ainsi qu’une préparation de muscle lisse. D’autres tissus peuvent se comporter différemment.
Troisièmement, la restauration nucléaire résultait de plusieurs semaines d’exposition continue à une concentration nanomolaire dans un milieu de culture. Les concentrations dans une boîte de culture ne sont pas des doses, et rien dans l’article ne permet de convertir 100 nanomolaires dans un milieu en un schéma d’utilisation chez l’humain. Le bleu de méthylène possède par ailleurs sa propre relation dose-réponse et son propre profil de sécurité en médecine, et cette étude ne fournit aucune base pour un usage à domicile. Le contexte général de sécurité est présenté dans sécurité et effets secondaires du bleu de méthylène.
Quatrièmement, la progéria n’est pas le vieillissement normal. Il s’agit d’une maladie rare due à une mutation unique, dans laquelle l’ossature nucléaire se détériore d’une manière particulière. Le fait qu’un composé atténue cette altération spécifique dans des cellules cultivées apporte peu d’informations sur le vieillissement chez les personnes dépourvues de cette mutation. Le phénotype cellulaire offre une fenêtre sur les interactions entre le noyau et les mitochondries, et non un résultat sur la longévité.
Le résumé approprié est donc conditionnel. Dans les fibroblastes de progéria, la progérine supprime PGC-1alpha et laisse les mitochondries fragmentées, ralenties, chargées en oxydants et pauvres en énergie. Le bleu de méthylène à faible concentration a restauré les paramètres mitochondriaux dans toutes les cellules et, en plus, libéré la progérine de la membrane nucléaire dans les cellules malades, avec une récupération partielle de la forme du noyau, de l’hétérochromatine et de l’expression génique. Cette double action rend l’étude digne d’intérêt. Elle ne fait pas du bleu de méthylène un traitement de la progéria ni du vieillissement. ::