
Article
Bleu de méthylène et NAD+/NADH : interpréter l’équilibre rédox cellulaire
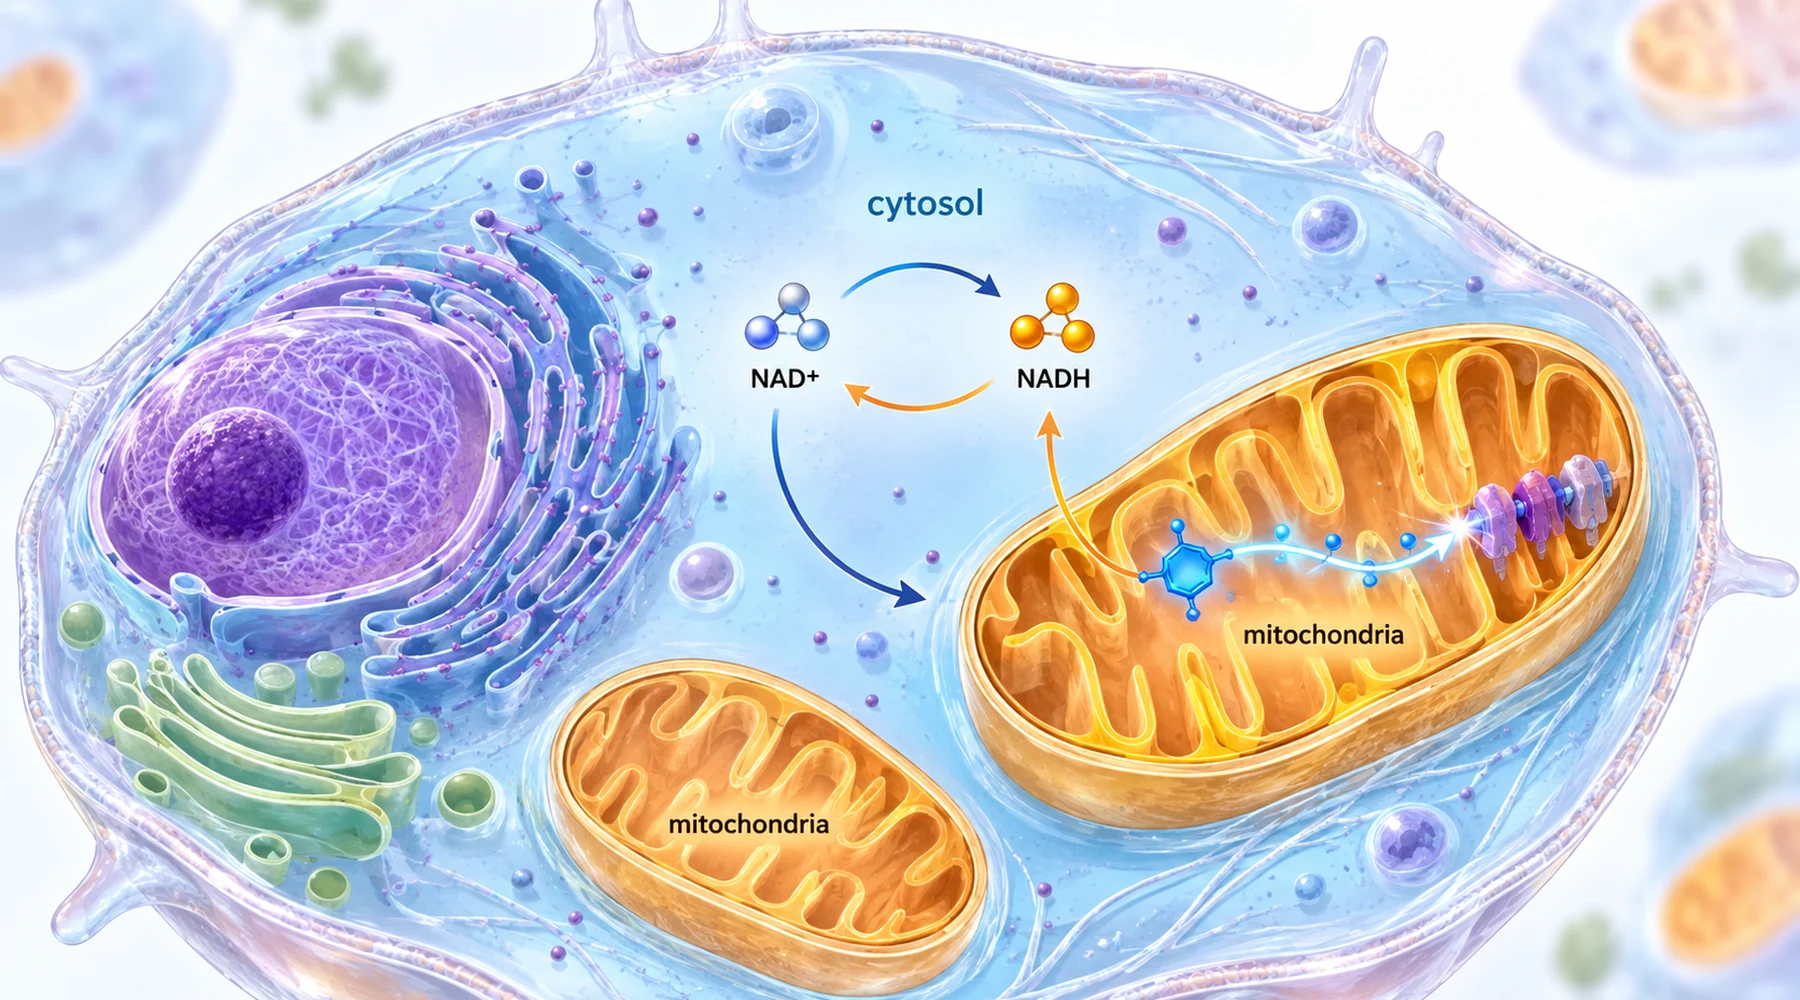
Les publications sur le bleu de méthylène et le NAD+ tendent à confondre trois affirmations distinctes. La première est que le rapport NAD+ sur NADH s’est déplacé vers l’état oxydé. La deuxième est que la cellule contient davantage de NAD total. La troisième est que la production d’énergie s’est rétablie. Ces trois éléments peuvent sembler raconter une seule histoire de restauration du métabolisme. Dans les expériences, ils divergent pourtant régulièrement, et les résultats les plus intéressants sont précisément ceux où cette divergence apparaît.
La confusion est compréhensible, car ces trois grandeurs partagent le même vocabulaire. Le NAD+ accepte des électrons lors des réactions métaboliques et devient du NADH, puis les mitochondries réoxydent le NADH en NAD+ au niveau du complexe I et utilisent l’énergie libérée pour alimenter la synthèse d’ATP. Une présentation plus complète de ce trajet électronique figure dans l’explication du transport mitochondrial des électrons, et son volet énergétique dans ATP et métabolisme énergétique. Mais un rapport et un pool sont deux objets différents. Le rapport indique comment la population existante de navettes est répartie entre les états chargés et déchargés. Le pool indique combien de molécules de navette existent au total. Un meilleur rapport avec le même pool signifie une redistribution, pas une production supplémentaire.
Deux compartiments, deux indicateurs
Une deuxième distinction entraîne des interprétations erronées plus discrètes. Les pools cytosolique et mitochondrial de NAD sont en grande partie séparés par la membrane mitochondriale interne, de sorte que chaque compartiment peut présenter indépendamment un état relativement oxydé ou réduit. Une valeur unique pour l’ensemble de la cellule masque cette différence.

Les recherches sur le foie ont permis de mesurer cette séparation entre compartiments. L’équilibre lactate sur pyruvate renseigne sur le rapport cytosolique NAD+ sur NADH, car la lactate déshydrogénase couple ces deux paires. L’équilibre 3-hydroxybutyrate sur acétoacétate renseigne sur le rapport mitochondrial par un couplage similaire. Lorsque les deux paires sont mesurées dans des tissus congelés par clampage, comme dans l’étude d’alimentation chronique à l’éthanol chez le rat, on obtient deux mesures rédox issues d’un même foie, et un composé peut modifier l’une davantage que l’autre.
Le bleu de méthylène agit sur ce système comme une navette électronique plutôt que comme un carburant. Il accepte des électrons du NADH à proximité du complexe I, passe à l’état réduit, puis les transmet en aval à des transporteurs tels que le cytochrome c. L’effet net est une oxydation du NADH sans passage par l’intégralité de la voie normale. Ce mécanisme explique à la fois son intérêt et sa limite : il peut atténuer un engorgement réducteur, mais il ne reconstruit pas un complexe endommagé et ne synthétise pas de nouvelles molécules de NAD.
Cinq études, un même schéma de résultats divergents
Le tableau ci-dessous aligne les cinq études selon le tissu, le critère rédox, le critère énergétique et ce qui s’est réellement rétabli. Lisez les deux dernières colonnes comme une paire. C’est cette association qui constitue le sujet de l’article.
| Tissu et agression | Critère rédox avec le bleu de méthylène | Critère énergétique et de signalisation | Résultat fonctionnel |
|---|---|---|---|
| Foie de rat, régime chronique à l’éthanol | Rapports cytosolique et mitochondrial NAD+/NADH largement restaurés ; glycérol 3-phosphate normalisé | ATP inchangé par l’éthanol ou le traitement ; légère baisse de l’ATP avec le colorant au dernier point temporel | Infiltration graisseuse inchangée ; lipides et triacylglycérol restés élevés |
| Hépatocytes et foie de souris sous régime riche en graisses | Rapport NAD+/NADH et teneur en NAD+ augmentés dans les cellules et le foie | SIRT1 augmentée, PGC-1alpha désacétylée, ADN mitochondrial et consommation d’oxygène augmentés, activation d’AMPK dépendante de SIRT1 | Accumulation de graisse hépatique et stéatohépatite réduites |
| Cœur de rat diabétique | Rapport NADH/NAD+ abaissé pendant l’oxydation des substrats dans des mitochondries isolées | Activité de SIRT3 augmentée ; acétylation de la lysine réduite sur 83 sites de 34 protéines | Volumes cardiaques et fraction d’éjection améliorés ; défaut du complexe I lui-même non corrigé |
| Rétine de souris déficiente en AIF et cellules photoréceptrices traitées à la roténone | Rapport NADH/NAD+ normalisé dans les cellules ; stress oxydatif réduit | Déficit d’ATP non corrigé dans les cellules ; voies de stress mitochondrial atténuées | Épaisseur rétinienne et marqueurs des photorécepteurs préservés ; survie cellulaire améliorée |
| Tendon d’Achille humain et de rat, lésions par oxydant et collagénase | Équilibre du NAD+ et chimie du NAD total restaurés vers les valeurs témoins | ATP augmenté et ROS réduites lorsqu’un effet de récupération se produisait | Marqueurs matriciels améliorés sauf sous blocage direct du complexe I, où la chimie évoluait mais pas le tissu |
Quand la correction rédox n’a pas permis de restaurer le tissu
L’étude la plus ancienne de l’ensemble reste l’avertissement le plus net. Des rats recevant de l’éthanol à hauteur de 36 percent de leur apport énergétique présentaient des rapports cytosolique et mitochondrial NAD+/NADH plus faibles, mesurés à l’aide des deux paires d’indicateurs, et le bleu de méthylène à environ 42 mg per kg per day dans l’alimentation a largement empêché ces changements. Pourtant, le triacylglycérol hépatique avait approximativement triplé au dernier point temporel, que le colorant soit présent ou non, et l’histologie montrait la même accumulation de graisse centrilobulaire. Les auteurs en ont directement tiré une conclusion dérangeante : le déplacement rédox qui accompagne l’oxydation de l’éthanol n’est pas, à lui seul, responsable de la stéatose hépatique. Un lecteur qui assimilerait la correction d’un rapport à celle d’un organe présenterait cette étude de manière incorrecte. Le protocole complet, notamment les témoins nourris par paires et les prélèvements à minuit au pic d’intoxication, est décrit dans l’étude sur le foie et l’éthanol.
Comparez cela aux travaux sur le foie sous régime riche en graisses, où un déplacement similaire du rapport coïncidait avec une véritable amélioration tissulaire. Dans les hépatocytes et dans le foie de souris après administration orale, le bleu de méthylène augmentait le rapport NAD+/NADH, et la chaîne de signalisation a été retracée étape par étape : augmentation de SIRT1, désacétylation de PGC-1alpha, augmentation des marqueurs de biogenèse mitochondriale et de la consommation d’oxygène, puis mobilisation d’AMPK, CPT-1 et PPARalpha, avec démonstration que l’activation d’AMPK dépendait de SIRT1. Les souris soumises au régime riche en graisses accumulaient moins de graisse hépatique. Le mécanisme proposé est qu’ici, le déplacement rédox déverrouillait un axe de régulation génique plutôt que de simplement rééquilibrer la chimie, comme détaillé dans l’étude hépatique sur SIRT1 et AMPK. Même famille de mesures que dans l’étude sur l’éthanol, mais résultat tissulaire opposé. La différence tient à la voie en aval, pas au rapport à lui seul.
Cœur et rétine : sirtuines, acétylation et récupération sans restauration de l’ATP
L’étude sur le cœur diabétique relie le déplacement rédox à l’acétylation des protéines par l’intermédiaire d’une autre sirtuine. Les mitochondries diabétiques présentent un excès d’acétylation de la lysine sur les enzymes métaboliques, associé à une moindre flexibilité d’utilisation des substrats. Le bleu de méthylène à 10 mg per kg per day facilitait l’oxydation du NADH de manière dépendante de la dose entre 6 et 18 micromolar dans des mitochondries isolées, augmentait l’activité de SIRT3 et réduisait largement l’acétylation, tandis que les volumes cardiaques et la fraction d’éjection s’amélioraient malgré la persistance de l’altération sous-jacente du complexe I. L’article est explicite sur le comportement en fonction de la dose rapporté ailleurs dans la littérature : de faibles concentrations favorisent le rôle de navette réductrice, tandis que des concentrations plus élevées peuvent détourner les électrons de manière improductive ; l’effet est donc hormétique plutôt que monotone. L’analyse protéomique et les mesures cardiaques sont présentées dans l’étude sur l’acétylation dans le cœur diabétique. Le cadre explicatif relatif au stress oxydatif qui sous-tend ces observations figure dans le contrôle du stress oxydatif et des ROS.
L’étude sur la rétine pousse cette dissociation encore plus loin. Chez des souris Harlequin présentant une déficience en AIF, un défaut d’assemblage du complexe I, le bleu de méthylène préservait l’épaisseur de la rétine, les segments externes des photorécepteurs ainsi que les marqueurs des bâtonnets, des cônes, des cellules de Muller et des cellules ganglionnaires. Dans les cellules photoréceptrices 661W traitées à la roténone, le colorant normalisait le rapport NADH sur NAD+ et réduisait les espèces réactives de l’oxygène à 15 micromolar, alors que l’ATP restait abaissé aux concentrations qui favorisaient la survie. La structure et la survie étaient préservées sans restauration énergétique, parallèlement à une atténuation de la réponse mitochondriale aux protéines mal repliées et de la mitophagie. Ce résultat conduit à envisager le colorant comme un moyen d’atténuer les stress réducteur et oxydatif plutôt que comme un restaurateur de l’énergie, comme documenté dans l’étude sur la protection des photorécepteurs rétiniens.
Tendon : l’expérience où la chimie a changé mais pas le tissu
Les travaux sur le tendon d’Achille contiennent les deux schémas dans un même article et méritent une lecture attentive. L’analyse complète branche par branche figure dans l’analyse de 2026 sur la tendinopathie d’Achille. Le tendon pathologique présentait une déplétion en NAD+, un faible rapport NAD+ sur NADH, de faibles marqueurs du complexe I, un faible taux d’ATP et un collagène désorganisé. Le bleu de méthylène restaurait la chimie du NAD et l’ATP et améliorait les marqueurs matriciels dans les préparations de rat, d’explants humains et de cellules.
Deux perturbations ont ensuite été appliquées. Sous blocage du complexe I par la roténone, le colorant continuait de protéger la chimie du NAD+ et les paramètres liés à l’ATP, mais ne parvenait pas à réduire la charge oxydante, à restaurer l’équilibre du collagène ni à préserver la viabilité. Lors de l’inhibition d’AIF, où la machinerie du complexe I était insuffisamment assemblée plutôt que bloquée pharmacologiquement, le colorant produisait un effet de récupération plus large : équilibre du NAD, stress oxydatif, potentiel membranaire et marqueurs du collagène. La leçon est précise. Une amélioration des paramètres du NAD peut être maintenue même lorsque le complexe I est bloqué, mais dans cette préparation, la restauration tissulaire dépendait d’une voie du complexe I fonctionnelle. Dans ce contexte, le déplacement du rapport est nécessaire sans être suffisant, un point développé davantage dans l’étude sur l’état rédox du tendon.
Comment lire la prochaine affirmation sur l’état rédox
Trois vérifications permettent d’éviter la plupart des erreurs d’interprétation. Premièrement, demandez à quel compartiment appartient le rapport et quelle paire d’indicateurs l’a produit. Un résultat cytosolique fondé sur le rapport lactate sur pyruvate ne dit rien directement sur la matrice mitochondriale. Deuxièmement, vérifiez si l’article rapporte un déplacement du rapport, un pool total plus important ou une récupération de l’ATP, et traitez chacun comme un résultat distinct. Troisièmement, demandez ce qui est resté altéré : graisse non corrigée, défaut du complexe I non corrigé ou déficit d’ATP non corrigé apparaissent tous dans ces articles aux côtés d’une véritable amélioration rédox.
Rien de tout cela ne constitue un guide posologique. Les cinq études reposent sur des animaux, des cellules ou des préparations tissulaires soumis à des agressions contrôlées : régimes liquides à l’éthanol, diabète induit par la streptozotocine, défauts génétiques du complexe I, roténone, peroxyde, collagénase. Les concentrations utilisées en culture ne se convertissent pas directement en doses orales, et aucun humain dans ces articles n’a pris de bleu de méthylène pour modifier son équilibre rédox. Le fil conducteur concernant la pharmacologie rédox et la posologie est plus limité et plus utile que n’importe quel protocole : le bleu de méthylène oxyde le NADH et modifie le rapport mesuré, les sirtuines traduisent ce changement en désacétylation et en reprogrammation métabolique dans certains tissus, et la réponse du tissu dépend de mécanismes que le colorant ne peut pas remplacer.