
مقاله
متیلن بلو بهعنوان آنتیاکسیدان و پرواکسیدان: چه چیزی نتیجه را تغییر میدهد؟
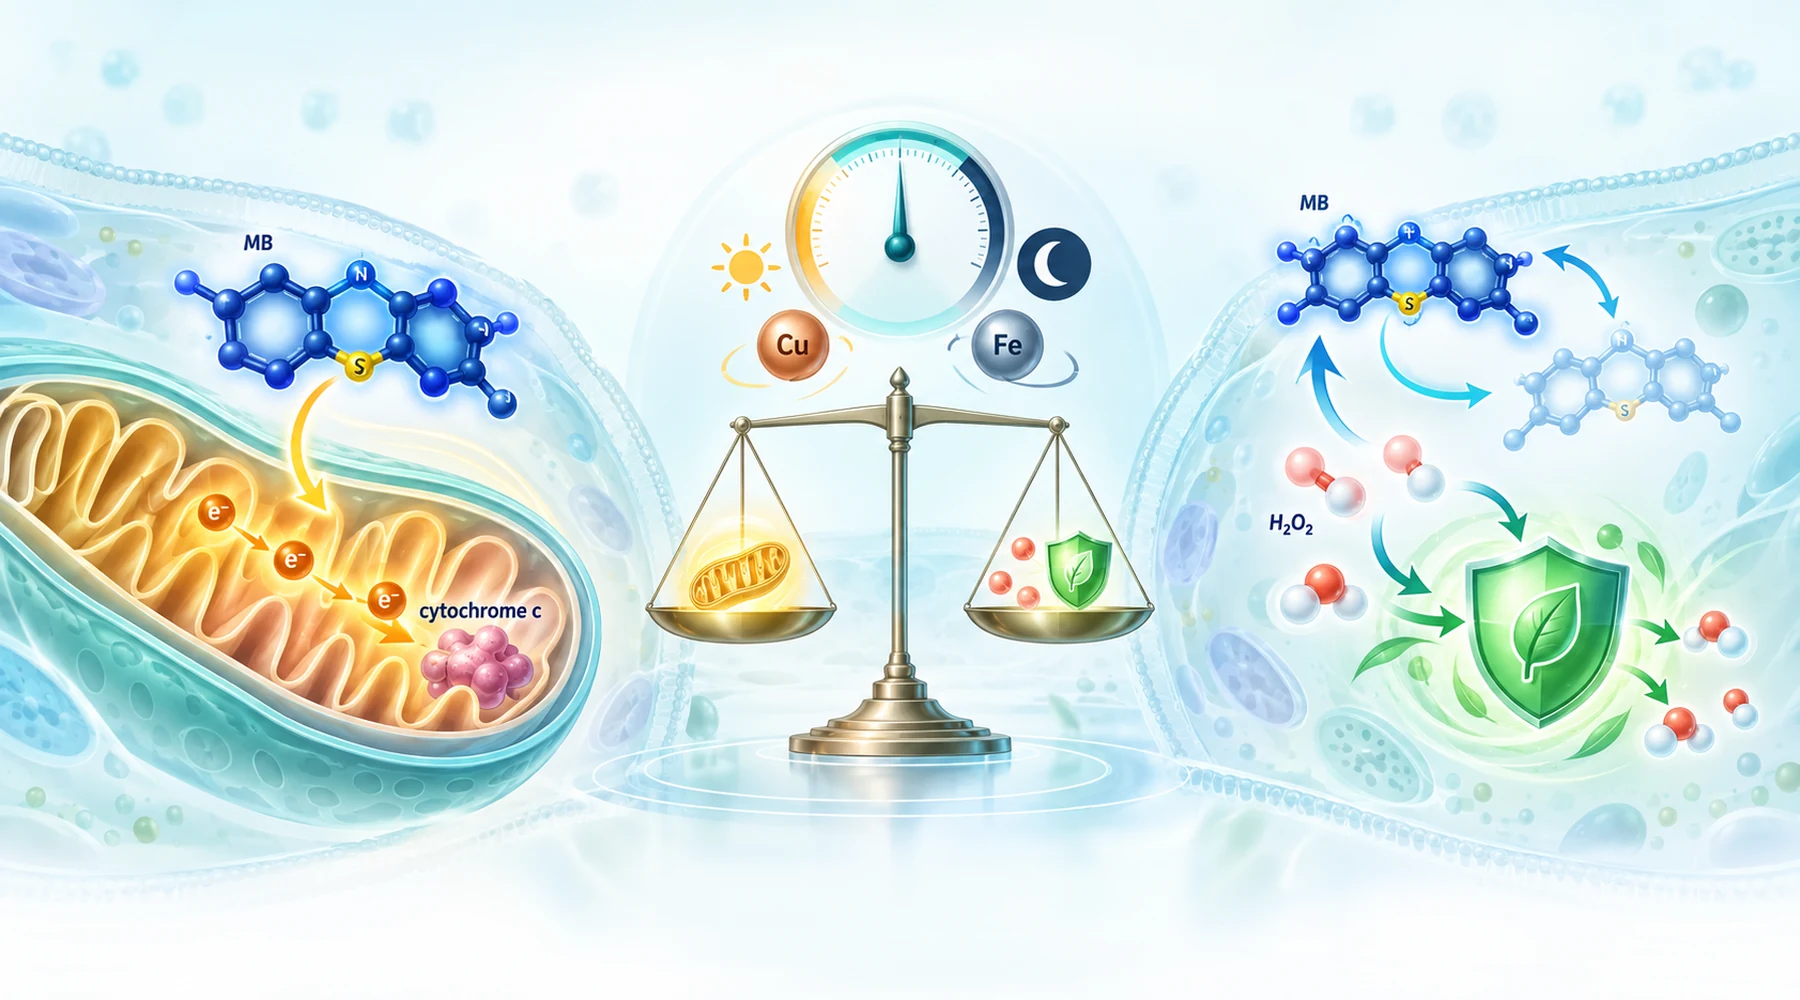
فرض کنید دو آزمایشگاه همان رنگ آبی را بررسی کنند و نتایج متضادی گزارش دهند. در آزمایشگاه نخست، میتوکندریهای جداشده از مغز بهتر تنفس میکنند و ATP بیشتری میسازند. در آزمایشگاه دوم، همان نمونه پراکسید هیدروژن بسیار بیشتری آزاد میکند. هر دو گزارش درستاند. آنها یک چرخه را از دو سوی متفاوت توصیف میکنند و سردرگمی از جایی آغاز میشود که خوانندگان یک سوی آن را تمام ماجرا میپندارند.
اشتباه این است که بپرسیم کدام برچسب به این مولکول میخورد. متیلن بلو واسطهای برای انتقال الکترونهاست؛ همانطور که نقشه اهداف آن در زیستشناسی سلولی در زمینهای گستردهتر نشان میدهد. رنگ اکسیدشده الکترون میپذیرد و به leucoMB بیرنگ تبدیل میشود. leucoMB این الکترونها را به گیرنده بعدی میدهد و دوباره آبی میشود. آنچه مشاهده میکنید به این بستگی دارد که چه چیزی الکترونها را میدهد، چه چیزی آنها را میگیرد و آیا سامانه میتواند پراکسید هیدروژنی را که در این مسیر ساخته میشود حذف کند یا نه. پرسش مهم هرگز این نیست که آیا این رنگ آنتیاکسیدان است. پرسش این است که شرایط به این واسطه انتقال اجازه انجام چه کاری را میدهد.
چرخهای که هر دو وجه را ایجاد میکند
در تاریکی، چرخه اصلی کوتاه است. NADH، NADPH یا حاملهای زنجیره تنفسی، رنگ را احیا میکنند. رنگ احیاشده سپس چند مسیر رقیب پیش رو دارد. میتواند الکترونها را به سیتوکروم c منتقل کند و جریان را از مسیری دورزننده یک کمپلکس آسیبدیده پشتیبانی کند؛ به همین دلیل، هنگام مهار کمپلکس I یا III، تنفس و پتانسیل غشا تا حدی بازیابی میشوند. یا میتواند الکترونها را مستقیماً به اکسیژن منتقل کند؛ این کار شکل آبی را بازسازی میکند و پراکسید هیدروژن میسازد. چون رنگ دوباره بازسازی میشود، مقدار کمی از آن میتواند این چرخه را بارها تکرار کند و پیوسته معادلهای احیاکننده را مصرف و پراکسید تولید کند.
دو شاخه دیگر، شیمی این فرایند را کاملاً تغییر میدهند. مس یا آهن آزاد، از طریق واکنشهای نوع فنتون، این پراکسید قابلانتشار را به اکسیدانهای موضعی بسیار مخربتری تبدیل میکند. نور قرمز شاخه فتوشیمیایی جداگانهای را فعال میکند که در آن رنگ برانگیخته، انرژی را به اکسیژن منتقل میکند و اکسیژن تکتایی میسازد؛ گونهای که در شرح فتوشیمی نوع I و نوع II بهتفصیل بررسی شده است. چرخه اکسایشکاهش در تاریکی، آسیب تشدیدشده بهوسیله فلزات و آسیب فوتودینامیک، سه سازوکار متفاوتاند که صرفاً مولکول آغازگر یکسانی دارند.
ماتریس شرایط و پیامدها
جدول زیر همان مرجعی است که ارزش نگهداشتن دارد. هر ردیف یک متغیر، جهت اثر آن و آزمایش پشتوانهاش را نشان میدهد. مثبت به معنای یک شاخص محافظتی یا بهبودیافته است. نامطلوب به معنای اکسیدان بیشتر، تخلیه بیشتر ذخایر یا آسیب بیشتر است.
| شرایط | جهت پیامد | آنچه آزمایش نشان داد |
|---|---|---|
| غلظت پایین، 0.1 تا 1 uM، میتوکندریهای جداشده | بهبود زیستانرژی همراه با پراکسید بیشتر | 0.1 uM مصرف اکسیژن را در میتوکندریهای قلب موش صحرایی سالم و دیابتی بهبود داد؛ 100 nM تا 1 uM، ATP، پتانسیل غشا و جذب کلسیم را در میتوکندریهای مغزی مهارشده تا حدی بازیابی کرد، در حالی که آزادسازی پراکسید در همه شرایط افزایش یافت |
| غلظت بالاتر، بیش از 5 uM، سلولهای محروم از گلوکز | سیگنال نامطلوب اکسیدان | در نبود گلوکز، سلولهای اندوتلیال در غلظتهای بالاتر از 5 uM یک پروب عمومی ROS را اکسید کردند و گلوتاتیون احیاشده خود را از دست دادند؛ افزودن گلوکز از هر دو رویداد جلوگیری کرد |
| سوبستراهای کمپلکس I (گلوتامات بههمراه مالات) | پراکسید بیشتر | پژوهشهای میتوکندریهای مغز و قلب هر دو، افزایش آزادسازی پراکسید را با سوبستراهای مرتبط با NADH نشان دادند |
| سوکسینات بههمراه روتنون، میتوکندریهای قلب، 0.1 uM | پراکسید کمتر در آن پروتکل | تنها شاخص پراکسید در این مجموعه که بهوضوح نشاندهنده اثر آنتیاکسیدانی بود؛ توجه کنید که پروتکل شامل روتنون و بافتی متفاوت بود، بنابراین سوبسترا بهتنهایی آن را توضیح نمیدهد |
| نور قرمز، 20 uM بههمراه 630 nm | آسیب نامطلوب به DNA | در تاریکی و در غلظت 20 uM ضایعات معناداری در DNA میتوکندری دیده نشد؛ همان غلظت با نور قرمز به همه قطعات آزمایششده آسیب رساند |
| غلظت بسیار بالا در تاریکی، 100 uM | آسیب انتخابی نامطلوب به DNA | ضایعات انتخابی DNA میتوکندری در توالیهای غنی از پورین؛ تغییری جهشی نسبت به سیگنال پراکسید در غلظتهای نانومولار |
| مس یا آهن بههمراه NADH، DNA در سامانه بدون سلول | ضایعات اکسیداتیو نامطلوب | مس آسیب را به یک توالی نقطه داغ در p53 هدایت کرد؛ آهن EDTA آسیب گسترده ایجاد کرد؛ کاتالاز و شلاتکنندههای فلزی مسیرهای مربوطه را مسدود کردند؛ گوانین اکسیدشده افزایش یافت |
| وجود گلوکز، سلولهای دستنخورده | مهار محافظتی تنش با وجود چرخه سریعتر | گلوکز احیای رنگ را افزایش داد، اما تنش خالص را کاهش داد؛ این نتیجه با تأمین NADPH از مسیر پنتوز فسفات برای بازسازی آنتیاکسیدانها سازگار است |
| سلولهای دارای ذخیره بالای آسکوربات | ترکیبی: آسکوربات مصرف شد، سیگنال پروب مهار شد | رنگ حتی در حضور گلوکز، آسکوربات درونسلولی را بهتدریج اکسید کرد و همزمان اکسیداسیون پروب را تا حدی مهار کرد؛ ذخیره دفاعی هزینه را پرداخت |
| حیوانات در معرض روتنون، با تجویز رنگ پیش از آن | پیامد بافتی مثبت | پیشتیمار با رنگ، ضایعات DNA میتوکندری ناشی از روتنون را در مغز میانی موش کاهش داد، با وجود اینکه پراکسید را در میتوکندریهای جداشده افزایش میداد |
نکته اصلی، الگوی مشترک میان ردیفهاست. تولید پراکسید و محافظت زیستی دو محور جداگانهاند. یک مداخله میتواند همزمان در محور نخست نامطلوب و در محور دوم مثبت باشد.
چرا مقدار یکسان پاسخهای متفاوتی میدهد
غلظت، ظرفیت انتقال را تعیین میکند، نه سرنوشت را. در پژوهش روی میتوکندریهای دستنخورده مغز، آزادسازی پراکسید از غلظت 50 nM به بالا بهطور قابلاندازهگیری افزایش یافت، در حالی که آسیب آشکار به DNA میتوکندری در تاریکی به 100 uM نیاز داشت. این یعنی فاصلهای تقریباً دو هزار برابری میان نخستین سیگنال و سمیت ژنتیکی؛ اما این فاصله حاشیه ایمنی نیست. شاخصهای نهایی، بخشهای زیستی و زمانهای مواجهه متفاوتاند، بنابراین این اعداد نشاندهنده پدیدههای متمایزند، نه نقاطی روی یک منحنی واحد. بحث پاسخ به دوز این نوع فاصله میان سیگنال در سطح پایین و آسیب در سطح بالا را در چارچوب گستردهتر هورمسیس قرار میدهد.
سوبسترا تعیین میکند الکترونها از کجا وارد شوند. سوختهای مرتبط با NADH، معادلهای احیاکننده فراوانی را هم برای مسیر دورزننده مفید و هم برای واکنش اتلافی با اکسیژن در اختیار رنگ میگذارند. این جمعبندی رایج که سوکسینات رنگ را آنتیاکسیدان میکند، در حالی که گلوتامات آن را پرواکسیدان میکند، فراتر از دادههاست؛ زیرا شرایط سنجش پراکسید با سوکسینات در مطالعه قلب، روتنون را نیز شامل میشد و از بافت و مقدار متفاوتی نسبت به پژوهش مغزی استفاده میکرد که افزایش پراکسید را در همه سوبستراها و حالتهای تنفسی نشان داد.
نور سازوکار را عوض میکند، نه فقط شدت آن را. روشنترین مقایسه در این مجموعه، غلظت 20 uM در تاریکی است که هیچ اثر قابلتشخیصی بر قطعات DNA میتوکندری نداشت، در برابر 20 uM زیر نور قرمز که به همه آنها آسیب رساند. هرکس آزمایشی در روشنایی را با آزمایشی در تاریکی مقایسه کند، در واقع فتوشیمی را با چرخه اکسایشکاهش مقایسه میکند.
فلزات نوع اکسیدان را تغییر میدهند. بدون فلزات، چرخه رنگ در تاریکی پراکسید میسازد؛ مولکولی قابلانتشار که سلولها از آن برای پیامرسانی نیز استفاده میکنند. با وجود مس یا آهن در دسترس، رنگ احیاشده بهوسیله NADH به احیای فلز کمک میکند و فلز احیاشده، پراکسید را در مجاورت DNA به گونههای نوع هیدروکسیل یا پراکسید مس فعال میکند. به همین ترتیب، پژوهش بدون سلول با NADH و یونهای فلزی از همان رنگ آغازین، هم آسیب انتخابی در نقاط داغ و هم آسیب گسترده به DNA ایجاد کرد. نحوه مدیریت فلزات در آن بخش زیستی، نه رنگ بهتنهایی، تعیین میکند که این شاخه اهمیت داشته باشد یا نه.
وضعیت سوخت تعیین میکند آیا سلول میتواند هزینه را بپردازد. در سلولهای اندوتلیال در معرض 2 تا 20 uM رنگ، حذف گلوکز هزینه اکسیدانی را آشکار کرد، در حالی که تأمین گلوکز آن را از بین برد؛ با اینکه گلوکز احیای رنگ را نیز سریعتر میکرد. چرخه سریعتر با منابع دفاعی تأمینشده، از چرخه کندتر با ذخایر دفاعی تهی بهتر عمل میکند. هر ادعای مربوط به اکسیدان را که وضعیت گلوکز یا NADPH را نادیده میگیرد، ناقص بدانید.
بافت، تجهیزات موجود را تعیین میکند. سلولهای اندوتلیال از طریق سوختوساز گلوکز، NADPH را بازسازی میکنند و ذخایر آنتیاکسیدانی سیتوزولی دارند. میتوکندریهای جداشده هیچیک از این امکانات را ندارند. DNA خالصشده حتی امکان ترمیم هم ندارد. نتیجه یک نمونه آزمایشی، اطلاعات اندکی برای پیشبینی وضعیت نمونههای دیگر میدهد؛ به همین دلیل، مقاله برنامهریزیشده درباره پاسخهای اختصاصی بافتها باید این سامانهها را جدا نگه دارد.
اندازهگیری مستقیم با دفاع پاییندستی یکی نیست
بسیاری از نوشتهها دو لایهای را در هم میآمیزند که آزمایشها از یکدیگر جدا نگه میدارند. یک لایه میپرسد چه مقدار اکسیدان پدید آمده است. لایه دیگر میپرسد سلول چگونه پاسخ داده است.
آزمونهای پراکسید از نوع Amplex به لایه نخست نزدیکترند و حتی آنها نیز شار خالص را گزارش میکنند؛ یعنی تولید منهای تخریب منهای خروج. مطالعه میتوکندریهای مغز نشان داد هر دو سوی این فرایند تغییر میکنند: پراکسید بیشتری تشکیل شد و حذف مقدار یکباره پراکسید افزودهشده کندتر شد. در مراحل پاییندستی، اکسیداسیون گلوتاتیون، مصرف آسکوربات، گوانین اکسیدشده و ضایعات DNA که فعالیت پلیمراز را متوقف میکنند قرار دارند. هر مرحله، فرایندهای زیستی بیشتری میان اکسیدان و شاخص اندازهگیریشده اضافه میکند.
آنزیمهای آنتیاکسیدانی تحت کنترل Nrf2 و زیستزایی میتوکندری در لایه دوم قرار میگیرند. اینها برنامههای سازگاریاند که یک پالس خفیف پراکسید میتواند فعالشان کند و نویسندگان مطالعه محافظت از میتوکندریهای مغز دقیقاً همین محرک تنش خفیف را پیشنهاد میکنند؛ در عین حال یادآور میشوند که زنجیره علّی از طریق Nrf2 بر پژوهشهای پیشین تکیه دارد، نه بر اثبات کامل آن در مطالعه خودشان. محافظتی که ساعتها بعد از طریق پروتئینهای جدید پدید میآید، به این معنا نیست که شیمی آغازگر آنتیاکسیدانی بوده است. معنایش این است که یک رویداد پرواکسیدانی کوچک، دفاعی بزرگتر را به دست آورده است. ملاحظات لازم برای خواندن چنین ادعاهایی، از جمله محدودیتهای آزمون و تفاوت نمونههای آزمایشی، موضوع راهنمای خواندن پژوهشهای متیلن بلو است.
چرا آزمونها با یکدیگر همخوان نیستند
یک پروب عمومی مانند دیهیدروفلورسئین، اکسیداسیون گسترده پروب را گزارش میکند، نه غلظت پراکسید را. این شاخص به شیمی پراکسیداز و هِم وابسته است و ممکن است افزایش پراکسیدی را که یک آزمون کالیبرهشده Amplex ثبت میکند، تشخیص ندهد. مطالعه میتوکندریهای مغز، پراکسید بسیار بالاتری را بدون سیگنال متناظر سوپراکسید مشاهده کرد؛ هشداری در برابر استناد به هر ادعای آنتیاکسیدانی مبتنی بر یک پروب رنگی منفرد. همپوشانی نوری مسئلهای موجه برای آزمایش کنترل است، زیرا رنگ، نور مرئی را نزدیک باندهای رایج برانگیزش و گسیل جذب میکند؛ اما آن مطالعه دقیق، آزمون را با مقادیر معلوم پراکسید کالیبره کرد، زمان مواجهه با نور برانگیزش را کاهش داد و تغییر اندکی در سیگنال دید، و با یک الکترود جداگانه کندتر شدن حذف پراکسید را تأیید کرد. تداخل باید با آزمایش کنترل بررسی شود، نه اینکه خودبهخود دلیلی برای رد نتیجه باشد.
نتیجه مربوط به کلسیم نیز همین نیاز به دقت را نشان میدهد. مواجهه حاد با رنگ در مطالعه قلب، بار کل کلسیم را پیش از گذار نفوذپذیری تغییر نداد، اما در مطالعه میتوکندریهای قلب با تمرکز بر دیابت، سرعت جذب کلسیم را در میتوکندریهای مغزی مهارشده بهبود داد. شاخصهای نهایی متفاوت، سامانههای متفاوت و هیچ تناقضی در میان نیست.
چکلیستی پیش از اعتماد به یک نتیجهگیری
هر نتیجهگیری درباره آنتیاکسیدان یا پرواکسیدان بودن را گزارشی درباره یک سامانه بدانید و پنج پرسش مطرح کنید. در چه غلظتی و در کدام بخش زیستی؟ با کدام دهنده الکترون و کدام گیرنده رقیب؟ در روشنایی یا تاریکی، و با چه طول موج و مقدار تابش؟ با کدام فلزات در دسترس و با چه میزان تأمین سوخت و ذخایر آنتیاکسیدانی؟ و با کدام آزمون؛ با اندازهگیری شار اکسیدان، آسیب یا پاسخ سازگاری؟ هر یک از این پاسخها را تغییر دهید و همان مولکول میتواند در ماتریس از محافظتکننده به آسیبرسان جابهجا شود، بیآنکه هیچ تناقضی وجود داشته باشد.