
Article
Blau de metilè per a la tinció d'ADN i ARN: aplicacions en gels i membranes
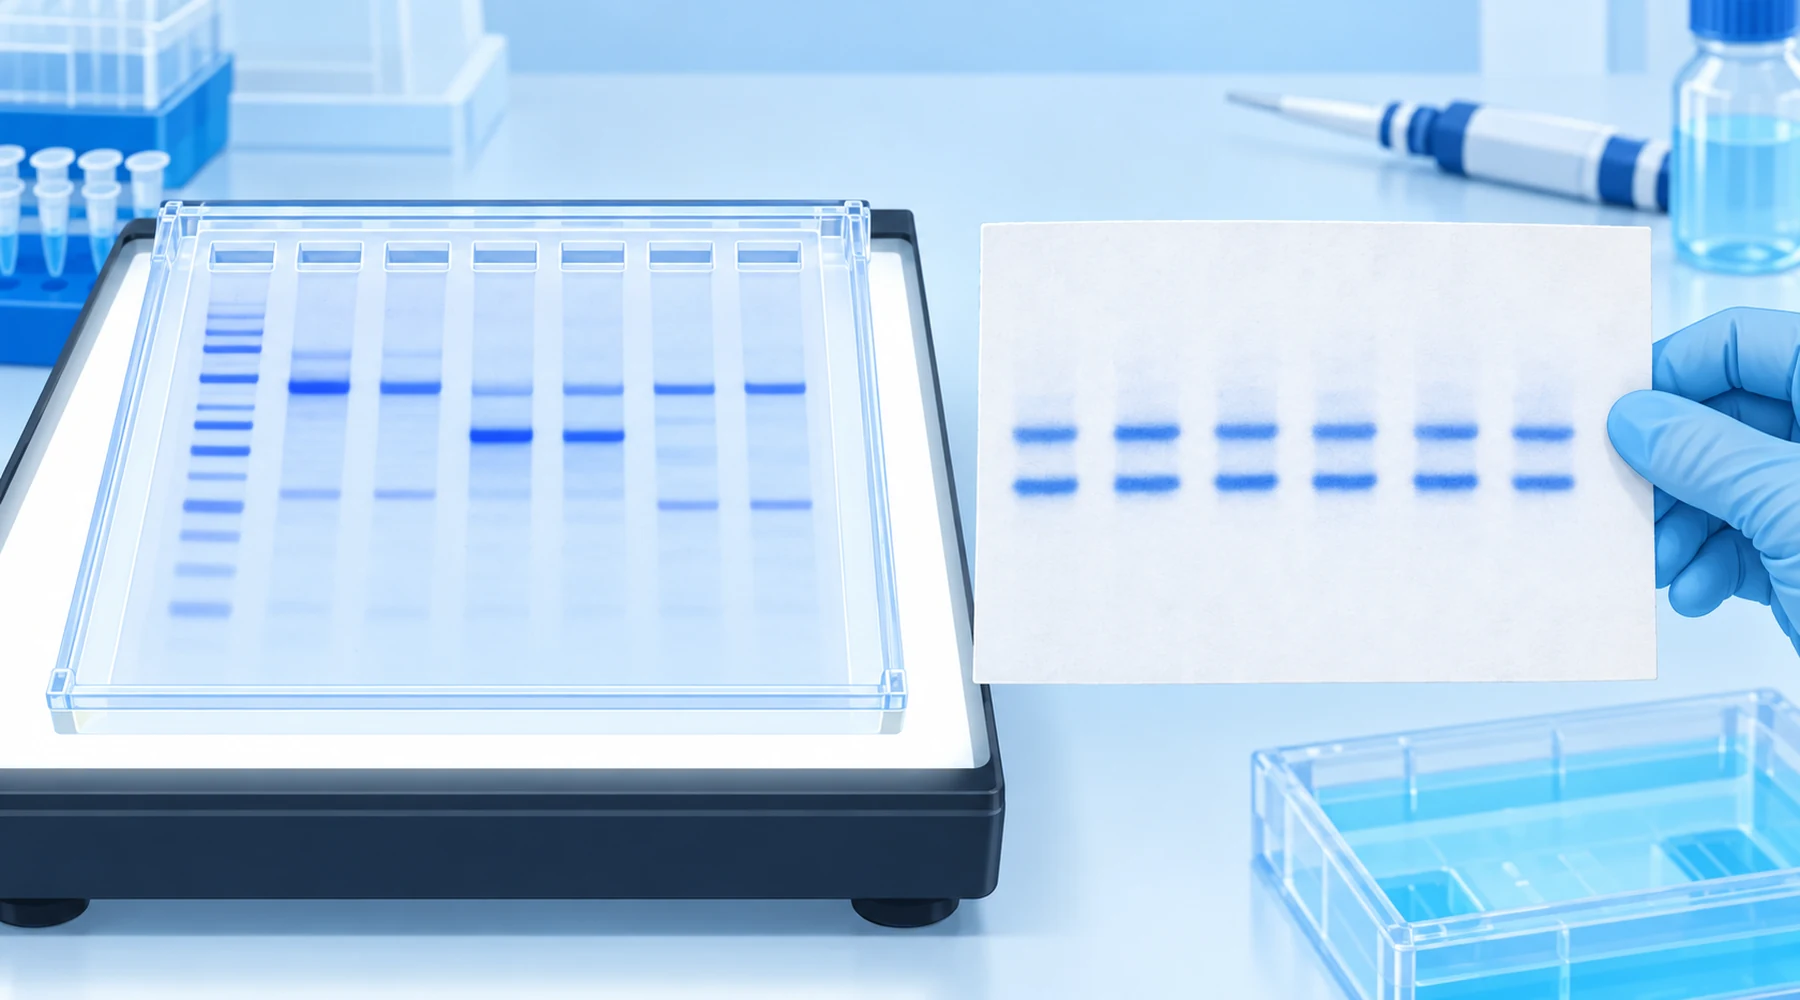
Un estudiant fa córrer un gel d'agarosa, el tenyeix amb blau de metilè i no veu res allà on esperava una banda intensa. Al lloc de treball del costat, un investigador postdoctoral tenyeix una membrana Northern amb el mateix flascó blau i obté bandes ribosòmiques nítides en tres minuts. L'estudiant conclou que el gel ha fallat. El gel no ha fallat. Les dues tasques eren diferents, i el mateix colorant hi respon amb una sensibilitat diferent, un fons diferent i unes regles diferents per als passos posteriors.
La tinció d'ADN i la tinció d'ARN amb blau de metilè comparteixen la química, però no la finalitat. En un gel, el colorant indica quina quantitat d'àcid nucleic hi ha dins d'una matriu porosa. En una membrana, indica si la transferència ha funcionat i si els carrils s'han carregat de manera uniforme. Un cop aquesta distinció és clara, els protocols, els límits de detecció i els límits de compatibilitat prenen sentit.
La resposta breu
El blau de metilè és un colorant catiònic pla que s'uneix als àcids nucleics de manera no covalent i reversible, mitjançant una combinació d'atracció electroestàtica pels fosfats, intercalació entre parells de bases i associació amb el solc menor. Aquesta reversibilitat és la clau. Les bandes es poden tenyir i observar amb llum visible, documentar i després destenyir o purificar per a la clonació, la hibridació o una nova hibridació amb sonda.
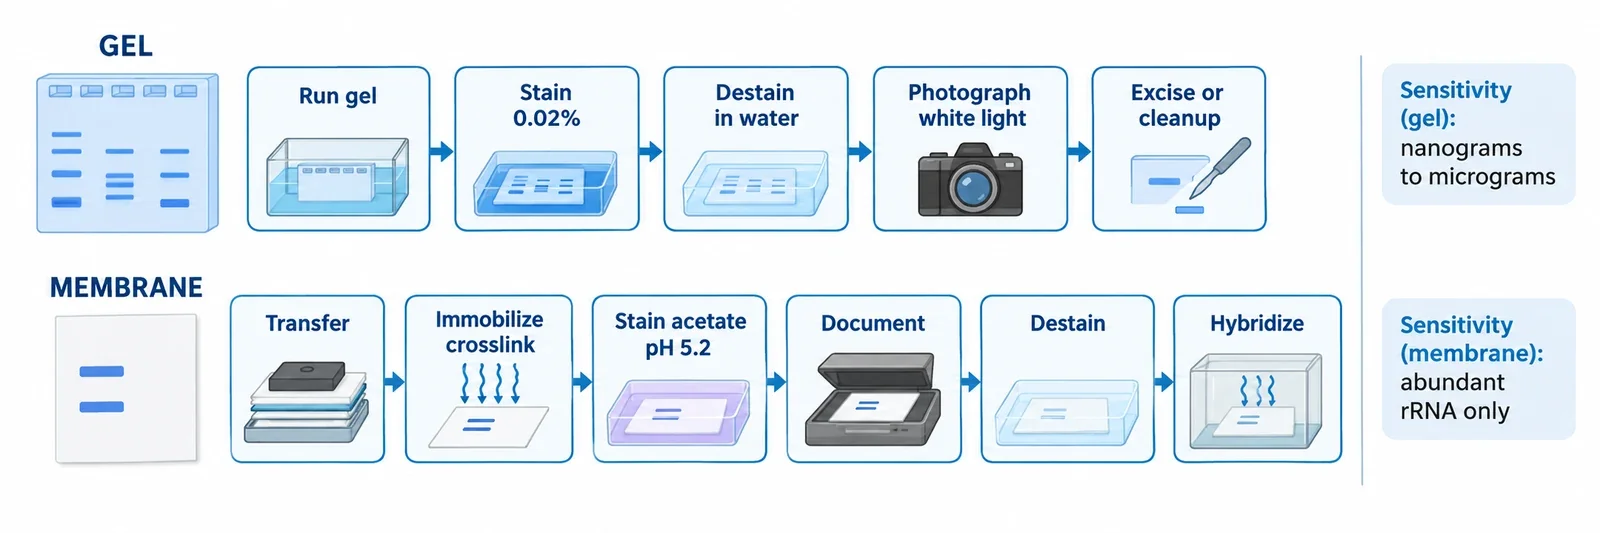
Per a la tinció d'ADN bicatenari en gels d'agarosa amb blau de metilè, la preparació ràpida estàndard és del 0.02 per cent w/v (200 micrograms per mL) en aigua, amb uns 15 minuts de tinció i uns 15 minuts de destinció en aigua, i observació sobre una caixa de llum blanca. Per a les membranes, la preparació clàssica per a Northern blot és del 0.02 al 0.04 per cent de colorant en acetat de sodi a un pH proper a 5.2, amb diversos minuts de tinció després de la transferència i la immobilització, seguits d'una esbandida amb aigua i una destinció completa abans de la hibridació. La sensibilitat és modesta: de desenes a centenars de nanograms per banda de gel en bones condicions, i les guies conservadores indiquen de 0.5 a 1 microgram. Això és diversos ordres de magnitud per sobre del bromur d'etidi i dels colorants SYBR. En membranes no hi ha un límit de detecció útil per a un transcrit individual, perquè la tinció mostra principalment l'ARN ribosòmic abundant i el material total carregat. No substitueixis cap d'aquestes preparacions per una solució de suplement de venda al detall. Els mètodes validats pressuposen un colorant de grau analític, tampons definits i una manipulació lliure de RNases quan es treballa amb ARN.
Com funciona la unió i quan pot induir a error
El model útil té tres parts. En primer lloc, el sistema d'anells amb càrrega positiva és atret per l'esquelet de fosfats amb càrrega negativa. Els estudis espectroscòpics troben que aquest component electroestàtic domina a baixa concentració de sal, mentre que la modelització i la dinàmica molecular mantenen la intercalació i la unió al solc menor com a modes estables per a l'ADN bicatenari, tal com resumeix un estudi espectroscòpic de la unió del blau de metilè a l'ADN. En segon lloc, hi ha una certa preferència per GC: la modelització afavoreix els passos CpG i GpC, i els experiments descriuen una associació preferent amb dúplexs rics en GC en estudis sobre les preferències d'intercalació del blau de metilè, però els dúplexs AT també s'hi uneixen. La tinció rutinària no és específica de seqüència. En tercer lloc, l'ADN monocatenari i l'ARN s'hi uneixen principalment mitjançant interaccions electroestàtiques i apilament amb bases accessibles i regions de dúplex, cosa que explica per què la intensitat de la tinció varia amb la longitud, la seqüència i l'estructura secundària.
D'això se'n deriven dues conseqüències. Com que la unió no és covalent, el colorant s'elimina amb els rentats. Les bandes de poliacrilamida s'esvaeixen ràpidament tret que es fixin deliberadament, i existeix una variant específica de fixació permanent precisament perquè la tinció normal és temporal, tal com descriuen Soto i Draper per als gels PAGE. Com que el colorant és un fotosensibilitzador, una il·luminació intensa i prolongada de l'ADN tenyit en presència d'oxigen pot oxidar la guanina i acabar provocant trencaments en una de les cadenes, un mecanisme detallat en estudis sobre l'oxidació de la guanina fotosensibilitzada pel blau de metilè. L'observació breu amb llum blanca evita el conegut dany per UV dels procediments clàssics amb bromur d'etidi, i aquest avantatge és real per a la recuperació preparativa. La llum visible és menys agressiva, però no innòcua. Mantén breu la il·luminació quan l'ADN s'hagi de clonar. Per conèixer la fotoquímica més àmplia que justifica aquesta precaució, consulta les dues vies de la fotoquímica del blau de metilè. Per entendre el parell redox i els estats de càrrega que expliquen per què la forma oxidada s'uneix i la reduïda no, consulta la química de l'estructura i les propietats del blau de metilè.
Primera tasca: tinció dins dels gels
La tinció de gels respon a una pregunta: hi ha prou àcid nucleic en aquesta banda per veure'l a ull nu? L'ADN bicatenari en agarosa és el cas més ben caracteritzat. El mètode original de tinció de gels amb blau de metilè de Flores i col·laboradors va validar el protocol ràpid del 0.02 per cent en agarosa a l'1 per cent i va demostrar que la recuperació i la clonació posteriors eren possibles. El mateix protocol del proveïdor apareix a la pàgina del producte blau de metilè d'IBI Scientific, que presenta conjuntament la preparació del 0.04 per cent per a membranes i la variant ràpida per a gels.
Procediment pràctic:
- Fes córrer el gel de la manera habitual. Tenyeix-lo després de l'electroforesi, no durant aquesta, tret que s'hagi validat la transferència o la resolució per a un mètode modificat.
- Submergeix-lo en blau de metilè al 0.02 per cent w/v en aigua destil·lada, amb agitació suau, durant uns 15 minuts.
- Destenyeix-lo amb diversos canvis d'aigua, durant uns 15 minuts en total, fins que disminueixi el fons de la matriu i les bandes destaquin.
- Fotografia'l de seguida sobre un il·luminador de llum blanca.
L'agarosa i la poliacrilamida es comporten de manera diferent. L'agarosa reté el colorant a la matriu, de manera que la destinció és el pas lent. Els gels prims de poliacrilamida es tenyeixen ràpidament, però també perden el colorant ràpidament, cosa que facilita l'excisió preparativa i dificulta conservar-ne un registre. Els oligonucleòtids sintètics en poliacrilamida es poden localitzar amb la mateixa preparació del 0.02 per cent en 20 a 30 minuts, amb rentats repetits amb aigua, seguint mètodes PAGE establerts del tipus Current Protocols. S'han descrit variants molt diluïdes, properes al 0.0002 per cent en TBE diluït, per a oligonucleòtids preparatius durant diverses hores, però la base d'evidència és més feble.
La distinció entre ADN i ARN importa. L'ADN bicatenari presenta la unió estructurada més forta. L'ARN i l'ADN monocatenari es tenyeixen, però de manera més feble i menys predictible. En els gels d'agarosa amb formaldehid per a ARN, la majoria de laboratoris ometen la tinció amb blau dins del gel i transfereixen primer l'ARN a una membrana, on després el tenyeixen. Aquest canvi substitueix un senyal feble en el gel per un senyal més nítid en la membrana i un registre de la càrrega.
Segona tasca: tinció sobre membranes
La tinció de membranes respon a una altra pregunta: la transferència ha funcionat i els carrils són comparables? L'aplicació clàssica és la tinció reversible de Northern blot de Herrin i Schmidt, originalment amb un 0.04 per cent de colorant en acetat de sodi 50 mM a pH 5.0 durant 2 a 3 minuts, amb una esbandida amb aigua, i eliminable amb SDS diluït en SSPE abans de la hibridació.
La variant moderna més utilitzada es fa així:
- Transfereix l'ARN o l'ADN desnaturalitzat a niló o nitrocel·lulosa i després immobilitza'l mitjançant entrecreuament per UV o escalfament en forn, perquè la mostra no es perdi durant la tinció.
- Opcional però habitual: humiteja la membrana en àcid acètic al 5 per cent durant uns 15 minuts.
- Tenyeix-la durant 5 a 10 minuts amb blau de metilè del 0.02 al 0.04 per cent en acetat de sodi de 0.3 a 0.5 M a un pH proper a 5.2.
- Esbandeix-la i destenyeix-la en aigua durant 5 a 15 minuts, documenta-la i després elimina el colorant residual abans de la hibridació.
El niló amb càrrega positiva predomina en els treballs amb Northern. La nitrocel·lulosa també funciona amb el mateix procediment d'àcid acètic i acetat. La imatge s'utilitza per confirmar la transferència, comparar les bandes 28S i 18S (o 23S i 16S per a l'ARN bacterià), marcar els marcadors de mida i els estàndards, i conservar un registre aproximat de normalització de l'ARN total. Els mètodes Northern publicats quantifiquen les bandes ribosòmiques tenyides per comprovar la càrrega, inclosos treballs de ciència làctia que van utilitzar bandes ribosòmiques tenyides amb blau de metilè per a la normalització. Les membranes Southern es poden visualitzar de la mateixa manera, però el colorant està molt més consolidat com a control de càrrega i transferència en Northern, i l'ADN de Southern es desnaturalitza abans de la transferència; per tant, les xifres de sensibilitat dels gels no s'hi poden extrapolar.
Límits de detecció i fons: on el blau surt perdent
La comparació següent és expressament aproximada. El rendiment de la tinció depèn del percentatge del gel, l'amplada de la banda, l'òptica i el rigor de la destinció. Considera cada xifra un ordre de magnitud, no una especificació.
| Colorant i format | Detecció aproximada per banda | Interpretació |
|---|---|---|
| Blau de metilè, ADN bicatenari en agarosa | 40 a 250 ng en condicions optimitzades; 0.5 a 1 microgram amb un criteri conservador | Suficient per a càrregues preparatives i gels docents. Poc adequat per a bandes amb quantitats mínimes. |
| Blau de metilè, ADN monocatenari curt, ARN o oligonucleòtids en PAGE | Aproximadament 0.1 a 0.5 microgram | Depèn de la longitud i l'estructura. No hi ha cap límit universal. |
| Bromur d'etidi, ADN bicatenari en agarosa | Uns 1 a 10 ng | Aproximadament quatre vegades més sensible que el blau optimitzat en la comparació de Flores. Necessita UV. |
| SYBR Green I, ADN bicatenari | Uns 60 pg | Requereix obtenció d'imatges de fluorescència. |
| SYBR Gold, ADN i ARN | Uns 25 pg | Més de deu vegades més sensible que el bromur d'etidi en diversos formats. |
| Tinció amb plata, àcids nucleics en PAGE | Uns 0.3 a 0.9 ng; s'han descrit 100 pg d'ARN en una seqüència optimitzada de blau seguida de plata | Molt sensible, però químicament complexa i poc adequada per a la recuperació. |
| Blau de toluidina, ARN i oligonucleòtids en PAGE | Quantitats de treball de centenars de ng, amb uns 250 ng documentats | Llum visible, com el blau de metilè, però sense cap límit estandarditzat comparable a les especificacions de SYBR. |
El control del fons determina si el senyal modest és aprofitable. El colorant lliure té un color intens, de manera que el contrast s'obté eliminant el colorant no unit sense retirar el que està unit. Una tinció més concentrada rarament augmenta la sensibilitat. Principalment augmenta el temps de destinció. Prova una sèrie de dilucions amb el gel, la membrana i la càmera exactes que utilitzaràs, i fes servir només l'interval en què la densitat integrada es manté proporcional a la quantitat inicial. El blau de metilè permet una normalització semiquantitativa de la càrrega. No és un assaig quantitatiu amb un rang dinàmic ampli, perquè la capacitat de la membrana, l'eficiència de transferència, la saturació i la destinció varien d'un carril a l'altre.
Límits de compatibilitat: què es conserva després de la tinció
S'ha demostrat que es pot clonar després de la tinció amb blau. Flores i col·laboradors van extreure bandes d'agarosa tenyides, en van recuperar l'ADN i el van utilitzar en lligacions i transformacions, amb resultats de clonació millors que després d'emprar bromur d'etidi amb UV. La raó probable és un menor dany fotoquímic, no un benefici del colorant mateix. Mantén breu l'exposició a llum blanca i purifica l'ADN recuperat amb un procediment habitual d'extracció de gel.
L'evidència per a la PCR i la seqüenciació és més limitada. El colorant residual s'uneix als àcids nucleics, de manera que cal destenyir i purificar abans dels passos enzimàtics. S'espera que l'ADN purificat adequadament a partir d'un gel tenyit amb blau funcioni, però la tolerància a l'arrossegament directe de colorant entre diferents polimerases i químiques de seqüenciació no està ben quantificada. No la donis per feta.
La hibridació de membranes és compatible quan se segueix estrictament l'ordre: transferir, immobilitzar, tenyir, documentar, destenyir i hibridar. Aquesta seqüència és el disseny de Herrin i Schmidt. Tenyir abans de la transferència o ometre la destinció és un mètode diferent i necessita una validació pròpia. Després d'eliminar el colorant, l'eliminació de sondes i la nova hibridació amb sonda es fan amb normalitat segons els procediments estàndard. Per a la tinció a escala cel·lular amb la mateixa família de colorants i per entendre per què la lògica dels frotis fixats no és aplicable als mètodes amb cèl·lules vives, consulta l'atles de tinció per a microscòpia.
L'excisió de bandes funciona per a l'agarosa preparativa i per als oligonucleòtids en PAGE localitzats amb blau, sempre que s'eviti la variant de fixació permanent. L'electroelució després de la destinció és químicament plausible per a un colorant d'unió reversible, però les dades controlades de rendiment específiques del blau de metilè són escasses. Dessala o precipita després de l'elució.
Problemes recurrents
Les bandes febles en gels solen indicar una massa massa baixa per a una tinció colorimètrica, especialment en dianes curtes monocatenàries o d'ARN. Carrega més material, utilitza colorant acabat de preparar, allarga la tinció abans d'augmentar-ne la concentració i atura la destinció abans. Un gel completament blau i sense contrast sol indicar una tinció excessiva o massa pocs canvis d'aigua. L'esvaïment de les bandes PAGE és una conseqüència esperable de la química, no una tinció fallida. Fotografia-les ràpidament. Un fons irregular a la membrana apunta a plecs, bombolles, empremtes, agitació desigual o transferència irregular. No ho interpretis com una càrrega desigual sense un control d'hibridació. Un patró ribosòmic difús i feble pot indicar degradació, però també transferència incompleta, massa poc ARN total (els carrils típics contenen des d'uns quants fins a desenes de micrograms) o destinció excessiva. El colorant mostra l'ARN ribosòmic abundant. No mostra un transcrit específic. Aquesta feina correspon a la sonda.
Seguretat i manipulació sense exageracions
El blau de metilè és més senzill de manipular que el bromur d'etidi, però no és innocu. Una fitxa de dades de seguretat vigent de MilliporeSigma classifica el colorant en la categoria 4 de toxicitat oral aguda, nociu en cas d'ingestió, i indica que s'ha d'eliminar mitjançant una via de gestió de residus autoritzada, segons la fitxa de dades de seguretat del blau de metilè de Sigma-Aldrich. El bromur d'etidi té advertiments de genotoxicitat més greus, inclosa la sospita d'efectes sobre les cèl·lules germinals a la seva fitxa de dades de seguretat de Sigma-Aldrich, i els seus gels i solucions se separen habitualment com a residus químics perillosos, tal com assenyala la guia de colorants per a àcids nucleics de Thermo Fisher. Segueix la fitxa de dades de seguretat i les normes institucionals per a tots dos. Mantén el colorant sec ben tancat i en sec, reutilitza la solució de tinció de treball només si el protocol ho permet, desa les membranes tenyides en sec entre fulls de paper de filtre i fotografia els gels abans que les bandes es difonguin.
Recorda aquesta frase al banc de laboratori. Els gels comproven la visibilitat amb càrregues elevades sota llum blanca. Les membranes comproven la transferència i la càrrega abans que la sonda faci la feina sensible. Un sol colorant serveix per a totes dues tasques, amb una sensibilitat modesta, una unió reversible i un ordre estricte d'operacions.