
Article
Blau de metilè i NAD+/NADH: interpretar l'equilibri redox cel·lular
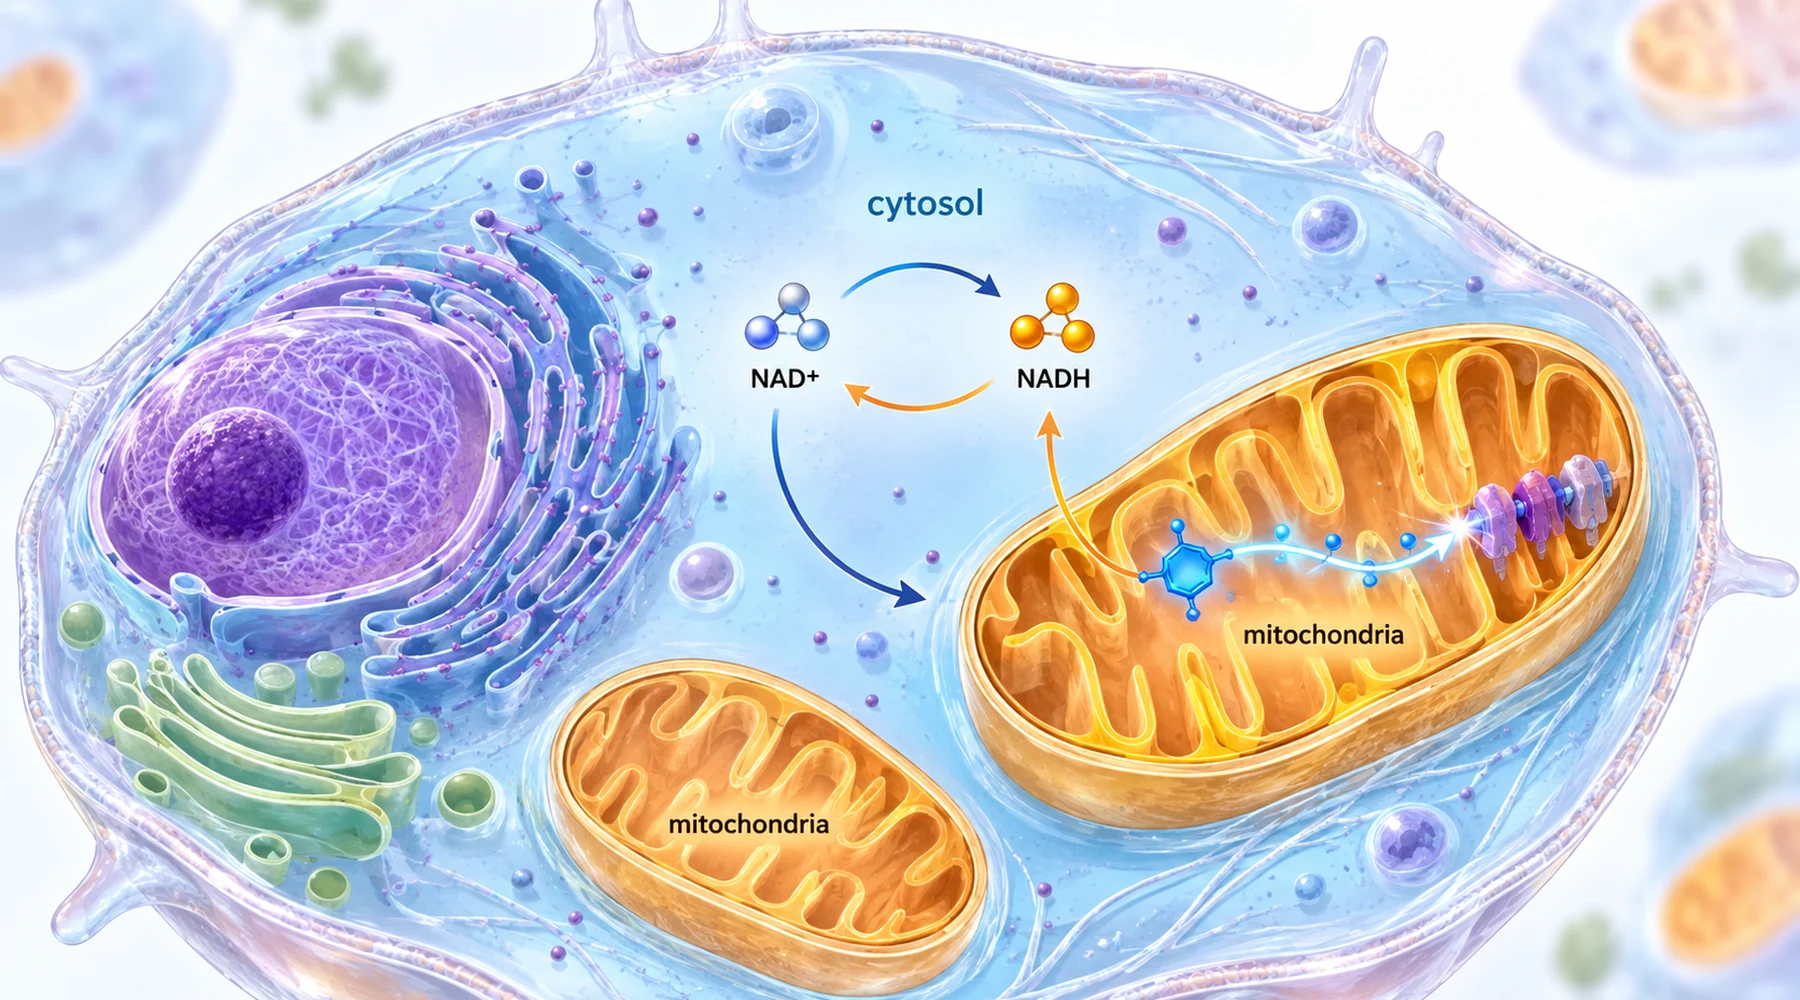
Els informes sobre el blau de metilè i el NAD+ tendeixen a confondre tres afirmacions diferents en una de sola. La primera és que la relació entre NAD+ i NADH es va desplaçar cap a l'estat oxidat. La segona és que la cèl·lula conté més NAD total. La tercera és que la producció d'energia es va recuperar. Sembla que totes tres expliquin una mateixa història de restabliment del metabolisme. En els experiments, però, sovint se separen, i els resultats interessants són precisament els casos en què divergeixen.
La confusió és comprensible perquè les tres magnituds comparteixen un mateix vocabulari. El NAD+ accepta electrons en les reaccions metabòliques i es converteix en NADH; després, els mitocondris oxiden el NADH i el tornen a convertir en NAD+ al complex I, i utilitzen l'energia alliberada per impulsar la síntesi d'ATP. Trobareu una explicació més completa d'aquest recorregut dels electrons a l'explicació del transport d'electrons mitocondrial, i de la part energètica a ATP i metabolisme energètic. Però una relació i una reserva són coses diferents. La relació indica com es distribueix la flota existent de transportadors entre els estats carregat i descarregat. La reserva indica quantes molècules transportadores hi ha en total. Una relació millor amb la mateixa reserva significa redistribució, no fabricació.
Dos compartiments, dos indicadors
Hi ha una segona distinció que provoca interpretacions errònies subtils. Les reserves de NAD citosòlica i mitocondrial estan en gran part separades per la membrana mitocondrial interna, de manera que cada compartiment pot mantenir, de manera independent, un estat relativament oxidat o reduït. Una única xifra per a tota la cèl·lula amaga aquesta diferència.

La recerca hepàtica va permetre mesurar aquesta separació entre compartiments. L'equilibri entre lactat i piruvat indica la relació entre NAD+ i NADH al citosol, perquè la lactat-deshidrogenasa vincula aquests dos parells. L'equilibri entre 3-hidroxibutirat i acetoacetat indica la relació mitocondrial mitjançant un acoblament semblant. Quan es mesuren tots dos parells en teixit congelat ràpidament per pinçament, com a l'estudi d'alimentació crònica amb etanol en rates, el resultat són dues lectures redox d'un mateix fetge, i un compost pot modificar-ne una més que l'altra.
El blau de metilè actua sobre aquest sistema com a transportador d'electrons, no com a combustible. Accepta electrons del NADH prop del complex I i es redueix; després els transfereix a transportadors posteriors, com el citocrom c. L'efecte net és l'oxidació del NADH sense passar per tota la ruta habitual. Aquest mecanisme explica tant el seu interès com el seu límit: pot alleujar un bloqueig per excés de reducció, però no reconstrueix un complex danyat ni sintetitza noves molècules de NAD.
Cinc estudis, un patró de resultats divergents
La taula següent compara els cinc estudis segons el teixit, el paràmetre redox, el paràmetre energètic i allò que realment es va recuperar. Llegiu les dues darreres columnes conjuntament. Aquesta lectura conjunta és el nucli de l'article.
| Teixit i agressió | Paràmetre redox amb blau de metilè | Paràmetre energètic i de senyalització | Resultat funcional |
|---|---|---|---|
| Fetge de rata, dieta crònica amb etanol | Relacions NAD+/NADH citosòlica i mitocondrial restablertes en gran part; glicerol 3-fosfat normalitzat | ATP sense canvis amb l'etanol ni amb el tractament; lleu descens de l'ATP amb el colorant en el punt temporal tardà | Infiltració grassa sense canvis; lípids i triacilglicerol encara elevats |
| Hepatòcits i fetge de ratolí amb dieta rica en greixos | Augment de la relació NAD+/NADH i del contingut de NAD+ en cèl·lules i fetge | Augment de SIRT1, desacetilació de PGC-1alpha, augment de l'ADN mitocondrial i del consum d'oxigen, activació d'AMPK dependent de SIRT1 | Reducció de l'acumulació de greix hepàtic i de l'esteatohepatitis |
| Cor de rata diabètica | Reducció de la relació NADH/NAD+ durant l'oxidació de substrats en mitocondris aïllats | Augment de l'activitat de SIRT3; menor acetilació de lisina en 83 llocs de 34 proteïnes | Millora dels volums cardíacs i de la fracció d'ejecció; el defecte del complex I no es va corregir |
| Retina de ratolí deficient en AIF i cèl·lules fotoreceptores tractades amb rotenona | Normalització de la relació NADH/NAD+ en les cèl·lules; reducció de l'estrès oxidatiu | El dèficit d'ATP no es va corregir en les cèl·lules; atenuació de les vies d'estrès mitocondrial | Preservació del gruix de la retina i dels marcadors de fotoreceptors; millora de la supervivència cel·lular |
| Tendó d'Aquil·les humà i de rata, lesió per oxidants i col·lagenasa | Restabliment de l'equilibri de NAD+ i de la química del NAD total cap als valors de control | Augment de l'ATP i reducció de les ROS allà on hi va haver recuperació | Millora dels marcadors de la matriu, excepte sota bloqueig directe del complex I, on la química va canviar però el teixit no |
Quan la correcció redox no va recuperar el teixit
L'estudi més antic del conjunt continua sent l'advertiment més clar. Les rates alimentades amb etanol com a 36 per cent de l'aportació energètica van desenvolupar relacions NAD+/NADH citosòlica i mitocondrial més baixes, mesurades amb tots dos parells indicadors, i el blau de metilè a uns 42 mg per kg i dia en la dieta va prevenir en gran part aquests canvis. Tanmateix, el triacilglicerol hepàtic es va multiplicar aproximadament per tres en el punt temporal tardà, tant si hi havia colorant com si no, i la histologia va mostrar el mateix greix centrilobular. Els autors en van extreure directament una conclusió incòmoda: el canvi redox que acompanya l'oxidació de l'etanol no és, per si sol, el que produeix el fetge gras. Un lector que interpretés una relació corregida com un òrgan corregit descriuria erròniament aquest article. El disseny complet, inclosos els controls amb ingesta aparellada i el mostreig a mitjanit en el pic d'intoxicació, s'exposa a l'estudi hepàtic amb etanol.
Compareu-ho amb el treball sobre fetge i dieta rica en greixos, en què el mateix tipus de canvi en la relació va coincidir amb una millora real del teixit. En hepatòcits i en fetge de ratolí després de l'administració oral, el blau de metilè va augmentar la relació NAD+/NADH, i la cadena de senyalització es va resseguir pas a pas: augment de SIRT1, desacetilació de PGC-1alpha, augment dels marcadors de biogènesi mitocondrial i del consum d'oxigen, i després activació d'AMPK, CPT-1 i PPARalpha, amb demostració que l'activació d'AMPK depenia de SIRT1. Els ratolins amb la dieta rica en greixos van acumular menys greix hepàtic. La interpretació proposada és que, en aquest cas, el canvi redox va desbloquejar un eix de regulació gènica, en lloc de limitar-se a reequilibrar la química, tal com es detalla a l'estudi hepàtic sobre SIRT1 i AMPK. La mateixa família de mesures que a l'estudi amb etanol, però un resultat oposat en el teixit. La diferència és la via posterior, no la relació per si sola.
Cor i retina: sirtuïnes, acetilació i recuperació sense restabliment de l'ATP
L'estudi del cor diabètic relaciona el canvi redox amb l'acetilació de proteïnes a través d'una altra sirtuïna. Els mitocondris diabètics presenten un excés d'acetilació de lisina en enzims metabòlics, que s'associa amb la manca de flexibilitat en l'ús de substrats. El blau de metilè a 10 mg per kg i dia va facilitar l'oxidació del NADH de manera dependent de la dosi entre 6 i 18 micromolar en mitocondris aïllats, va augmentar l'activitat de SIRT3 i va reduir àmpliament l'acetilació, mentre que els volums cardíacs i la fracció d'ejecció van millorar tot i que l'alteració subjacent del complex I va persistir. L'article és explícit sobre el comportament segons la dosi descrit en altres treballs: les concentracions baixes afavoreixen la funció de transportador en processos de reducció, mentre que les més altes poden desviar electrons de manera improductiva; per això, l'efecte és hormètic i no monotònic. L'anàlisi proteòmica i les mesures cardíaques es presenten a l'estudi d'acetilació en el cor diabètic. El marc d'estrès oxidatiu que hi ha al darrere s'explica a estrès oxidatiu i control de les ROS.
L'estudi de la retina porta aquesta separació encara més lluny. En ratolins Harlequin amb deficiència d'AIF, un defecte d'assemblatge del complex I, el blau de metilè va preservar el gruix de la retina, els segments externs dels fotoreceptors i els marcadors de bastons, cons, cèl·lules de Müller i cèl·lules ganglionars. En cèl·lules fotoreceptores 661W tractades amb rotenona, el colorant va normalitzar la relació entre NADH i NAD+ i va reduir les espècies reactives d'oxigen a 15 micromolar, però l'ATP va continuar baix a les concentracions que afavorien la supervivència. L'estructura i la supervivència es van preservar sense recuperació energètica, juntament amb l'atenuació de la resposta mitocondrial a proteïnes desplegades i de la mitofàgia. Aquest resultat replanteja el colorant com un agent que alleuja l'estrès reductiu i oxidatiu, més que no pas com un restaurador de l'energia, tal com es documenta a l'estudi de protecció dels fotoreceptors de la retina.
Tendó: l'experiment en què la química va canviar i el teixit no
El treball sobre el tendó d'Aquil·les conté tots dos patrons en un mateix article i val la pena llegir-lo amb calma. El desglossament complet de cada branca experimental es troba a l'anàlisi de la tendinopatia d'Aquil·les de 2026. El tendó malalt mostrava esgotament de NAD+, una relació baixa entre NAD+ i NADH, marcadors del complex I febles, ATP baix i col·lagen desorganitzat. El blau de metilè va restablir la química del NAD i l'ATP i va millorar els marcadors de la matriu en preparacions de rata, explants humans i cèl·lules.
Després van arribar les dues pertorbacions. Sota bloqueig del complex I amb rotenona, el colorant encara protegia la química del NAD+ i els indicadors relacionats amb l'ATP, però no va aconseguir reduir la càrrega oxidant, restablir l'equilibri del col·lagen ni preservar la viabilitat. Amb la reducció de l'expressió d'AIF, en què la maquinària del complex I estava insuficientment formada en lloc de bloquejada farmacològicament, el colorant va produir una recuperació àmplia: equilibri del NAD, estrès oxidatiu, potencial de membrana i marcadors del col·lagen. La lliçó és precisa. Es pot mantenir una millora en el valor de NAD fins i tot quan el complex I està bloquejat, però la recuperació del teixit en aquesta preparació depenia d'una via del complex I funcional. En aquest cas, el canvi en la relació és necessari però no suficient, un punt que es desenvolupa més a l'estudi redox del tendó.
Com llegir la propera afirmació sobre redox
Tres comprovacions resolen la majoria d'interpretacions errònies. Primer, pregunteu a quin compartiment pertany la relació i amb quin parell indicador s'ha obtingut. Un resultat citosòlic de lactat respecte a piruvat no diu res directament sobre la matriu mitocondrial. Segon, pregunteu si l'article informa d'un canvi en la relació, d'una reserva total més gran o d'una recuperació de l'ATP, i tracteu cadascun com una troballa independent. Tercer, pregunteu què va continuar alterat: el greix no corregit, un defecte del complex I no corregit o un dèficit d'ATP no corregit apareixen en aquests articles al costat d'una millora redox real.
Res d'això no és una guia de dosificació. Els cinc estudis són treballs amb animals, cèl·lules o preparacions de teixit amb agressions controlades: dietes líquides amb etanol, diabetis induïda per estreptozotocina, defectes genètics del complex I, rotenona, peròxid i col·lagenasa. Les concentracions en plaques de cultiu no es poden convertir directament en dosis orals, i cap persona en aquests articles va prendre blau de metilè per a l'equilibri redox. El fil conductor per a la farmacologia redox i la dosificació és més limitat i més útil que qualsevol protocol: el blau de metilè oxida el NADH i modifica la relació mesurada, les sirtuïnes tradueixen aquest canvi en desacetilació i reprogramació metabòlica en alguns teixits, i que el teixit respongui depèn d'una maquinària que el colorant no pot substituir.