
文章
亚甲蓝、tau 和淀粉样蛋白:为什么蛋白清除机制存在差异
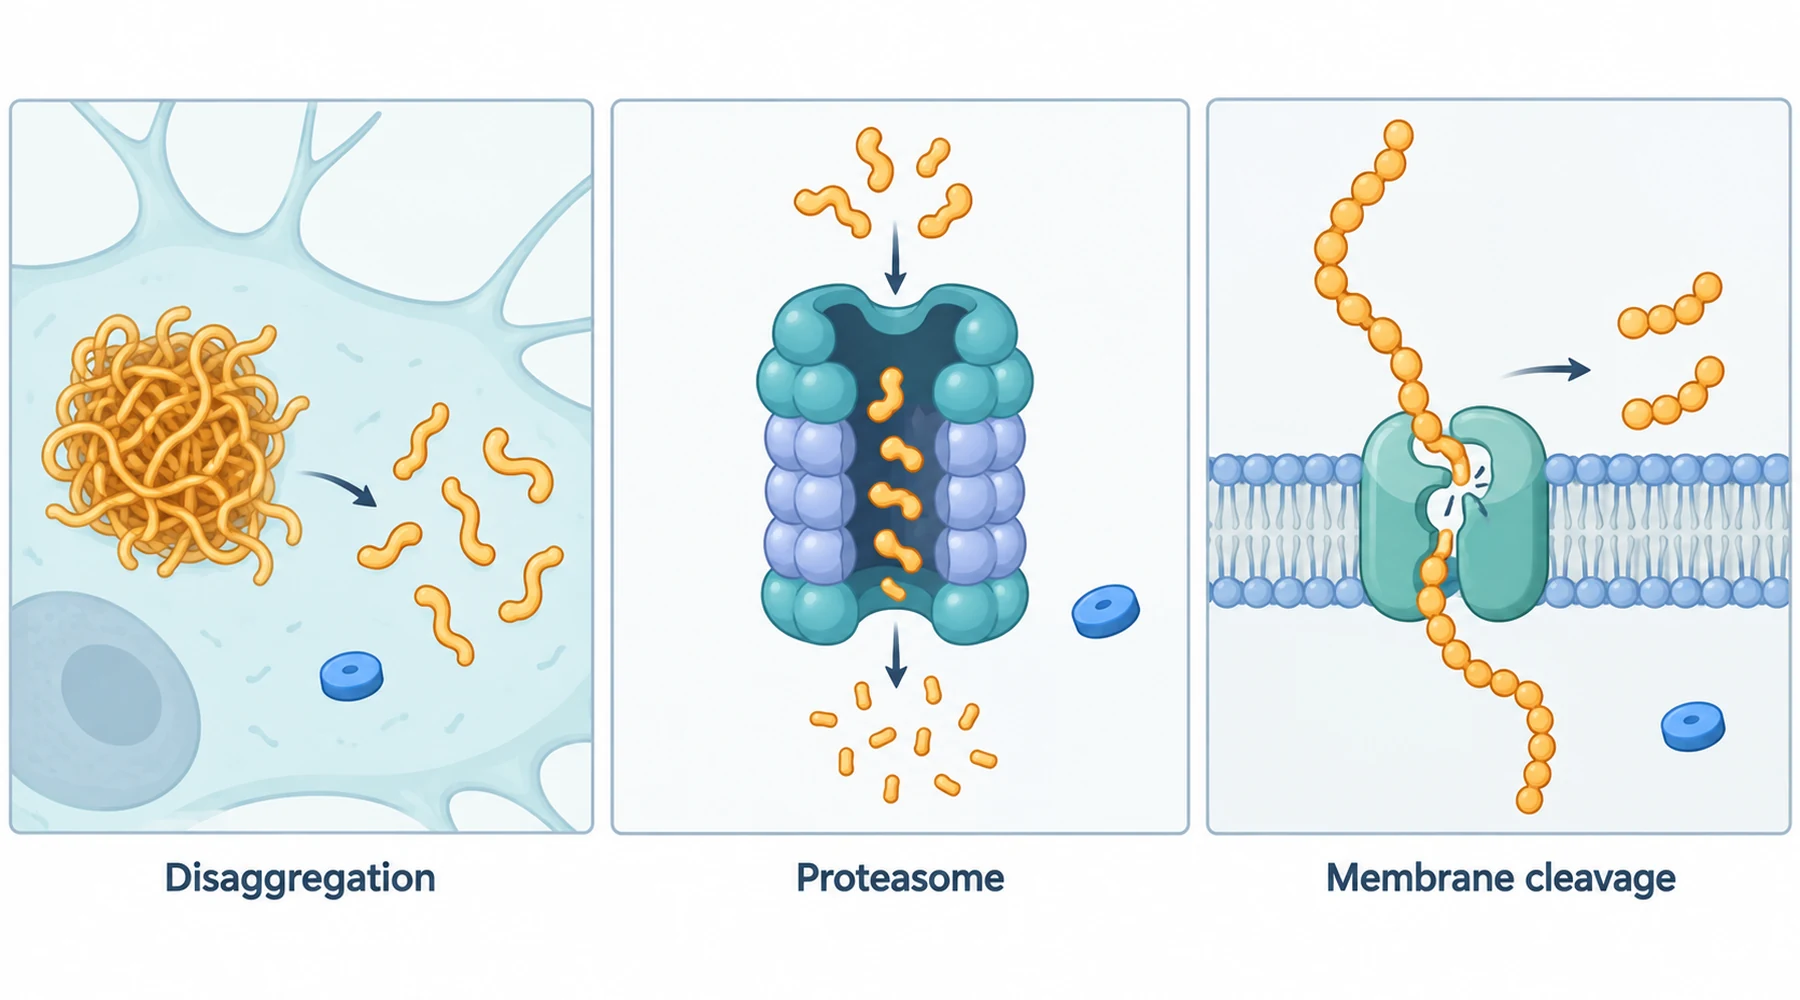
当你询问亚甲蓝对阿尔茨海默病相关蛋白产生什么作用时,你应该听到三个有条件限定的答案,而不是一个确定的答案。在试管中,它会干扰 tau 自身聚集。在一种小鼠模型中,它降低可溶性淀粉样蛋白,同时不影响 tau。在另一种模型中,它降低最初生成淀粉样蛋白的酶活性。这些现象都是真实存在的。但没有一个能代表完整故事,而且它们并不会在同一动物体内同时发生。本文将三个机制分开讨论,使一个实验中的结果不再被引用为另一个实验的证明。
希望了解更广泛的亚甲蓝如何在细胞内发挥作用的读者应从那里开始。希望了解这些机制是否帮助过患者的读者,应阅读阿尔茨海默病中的临床记录,因为人类试验结果应归属于该部分。本文不会重复该记录。
tau 发现属于聚集实验
三个故事中最早的一个来自关于 tau 的无细胞研究,tau 是形成神经原纤维缠结的蛋白。在 tau-tau 结合实验中,tau 片段组装成成对螺旋丝,而包括亚甲蓝在内的吩噻嗪类染料会在低微摩尔浓度下阻断这一组装。后续生化研究对此提供了化学解释:该染料会氧化 tau 上的半胱氨酸残基,使单体形式更加稳定,并抑制原本会生长的纤维形成。报告中的 tau 聚集抑制浓度大致处于个位数至低几十微摩尔范围,这一点对后续所有讨论都很重要。
注意这种说法属于什么类型的结论。它没有涉及 tau 生成、活体大脑中的 tau 磷酸化,或 tau 清除。它说明的是,在试管中的特定条件下,氧化后的染料阻止 tau 堆叠。这是一个精确、有限且有价值的结果。问题始于将其扩展为“亚甲蓝清除 tau 病理”的一般性说法,因为动物数据并不支持这种表述。
蛋白酶体发现属于 3xTg-AD 小鼠,并将淀粉样蛋白与 tau 分开
最清晰的分离终点实验是一项针对携带三种阿尔茨海默病突变小鼠的 16 周饮食研究。这些动物从六个月龄开始食用含有亚甲蓝的饲料,研究人员同时测量了三项指标:蛋白酶体、淀粉样蛋白水平和 tau。
蛋白酶体发生了变化。胰凝乳蛋白酶样活性增加约四分之一,胰蛋白酶样活性增加约一半,而第三种催化活性没有显著变化。可溶性淀粉样蛋白-beta 40 和 42 均下降约四分之一。作者认为这是由于清除增加,而不是生成减少,因为前体蛋白及其加工片段没有变化,并且水迷宫探测试验中的学习和记忆表现有所改善。
随后出现了分离现象。不溶性淀粉样蛋白没有变化。斑块染色没有变化。总人源 tau 和苏氨酸181位点磷酸化 tau 没有变化,tau 错误定位也没有变化。线粒体指标同样没有变化:细胞色素 c 氧化酶活性、氧化酶蛋白或 ATP 均无显著影响。因此,在该模型和该给药方案下,亚甲蓝提高了三种蛋白酶体活性中的两种,降低了可溶性淀粉样蛋白,改善了一项行为指标,同时 tau 终点、不溶性淀粉样蛋白以及所检测的线粒体指标均未改变。
有一点限制反而强化了这一结论。这些小鼠在测试年龄尚未形成 tau 聚集体,因此该实验不能证明亚甲蓝对 tau 缠结无效。它说明的是,可溶性淀粉样蛋白可以下降,而测量的 tau 指标不会变化,这正是本文需要关注的“一种蛋白改变、另一种蛋白不变”的结果。如果你认为亚甲蓝激活蛋白酶体会同时清除两种标志性蛋白,那么该研究提供了修正。
淀粉样蛋白生成发现属于老年 PSAPP 小鼠,并与前一种机制相反
不同研究团队、不同模型,以及相反的上游解释。在一项针对15月龄 PSAPP 小鼠、持续三个月的灌胃研究中,每日口服 3 mg/kg 降低了多个脑区的斑块负担,幅度约为三分之一至一半,并降低了多个淀粉样蛋白组分,包括通过专门实验测量的寡聚体。但这里提出的机制是减少生成,而不是加快清除:脑内 BACE1 蛋白下降,其产物 C99 下降,而信使 RNA 没有变化,这表明作用发生在蛋白水平,而非基因表达减少。
细胞实验进一步支持了这一结论。在使用重组酶的无细胞实验中,亚甲蓝直接抑制 BACE1;在表达人体淀粉样前体蛋白的仓鼠卵巢细胞中,分泌的淀粉样蛋白 40 和 42 在低至 1.56 微摩尔浓度时下降,而前体蛋白本身保持不变。相比之下,前一项研究中前体加工片段没有变化,并将功劳归于清除。两者不能同时作为同一种普遍机制的解释,因为模型、年龄、剂量、给药途径和持续时间均不同。重点就在这里。亚甲蓝对淀粉样蛋白的影响在一种条件下通过生成途径产生,在另一种条件下通过清除途径产生;脱离实验条件引用其中任何一种都会造成误导。
一种化学机制,多个靶点:半胱氨酸氧化桥梁
第三类研究解释了单一氧化还原化学过程如何出现在不同蛋白相关现象中。在一项关于半胱天冬酶抑制的生化研究中,亚甲蓝通过将其催化半胱氨酸氧化为亚磺酸,使半胱天冬酶-6 失活,质谱分析证实了这一点,其半数最大浓度接近 10.6 微摩尔。半胱天冬酶-3 也在类似浓度下受到抑制。作者明确将这一机制与 tau 文献联系起来:同样被认为可使 tau 保持单体状态的半胱氨酸氧化化学过程,也可能使半胱氨酸蛋白酶失活,并且有效浓度范围存在重叠。
这一机制具有吸引力,但同时也是一种警示。能够氧化暴露半胱氨酸的氧化还原活性分子,在任何有效浓度下都会具有多个靶点。tau 解聚机制、半胱天冬酶机制以及其他可能机制共享同一个化学动作,但作用对象不同。这种共同性并不意味着这些发现可以互换。它意味着剂量和环境决定哪个靶点更重要,并且针对某一种依赖半胱氨酸过程的长期给药可能影响其他过程,这是半胱天冬酶研究作者直接提出的考虑因素。关于亚甲蓝氧化还原化学如何选择靶点、蛋白酶体激活对其他聚集蛋白意味着什么,以及长期给药是否改变靶点谱等相关问题,都需要单独讨论。
按终点分析机制:哪个发现属于哪个模型
| 终点 | tau 聚集实验(无细胞) | 3xTg-AD 饮食研究(16 周) | PSAPP 灌胃研究(三个月) | 半胱天冬酶研究(体外和细胞) |
|---|---|---|---|---|
| tau-tau 组装 | 受到抑制,低微摩尔浓度 | 无法评估(该年龄无聚集体) | 未测量 | 提出了与 tau 相同的半胱氨酸化学机制 |
| 脑内总 tau 或磷酸化 tau | 不适用 | 未改变 | 未测量 | 未测量 |
| 蛋白酶体活性 | 未测量 | 胰凝乳蛋白酶样和胰蛋白酶样活性增加 | 未测量 | 未测量 |
| 淀粉样蛋白生成(BACE1、C99) | 不适用 | 未改变 | 降低(蛋白水平,已在无细胞实验中显示直接抑制) | 未测量 |
| 可溶性淀粉样蛋白 | 不适用 | 降低约 26% | 降低,取决于组分 | 未测量 |
| 不溶性淀粉样蛋白或斑块 | 不适用 | 未改变 | 根据区域降低 30% 至 56% | 不适用 |
| 认知 | 不适用 | 探测试验恢复 | 防止行为损害 | 不适用 |
| 线粒体指标 | 不适用 | 未改变 | 不是研究重点 | 未测量 |
逐行阅读该表,结论很明确。没有任何一行在所有列中都发生变化。最强的淀粉样蛋白生成结果来自没有测试蛋白酶体的研究。最强的蛋白酶体结果来自前体加工没有变化的研究。tau 结果主要存在于试管和与其他酶共享的化学机制中。任何将这些列合并为“亚甲蓝清除一类病理蛋白”的说法,实际上是在总结一个从未进行过的实验。
这种严谨性也适用于患者。这些机制是否最终转化为临床获益,是另一个需要通过独立试验和独立结论回答的问题,应在阿尔茨海默病临床证据中讨论,而不是本文主题。