
Стаття
Метиленовий синій як антиоксидант і прооксидант: що змінює результат?
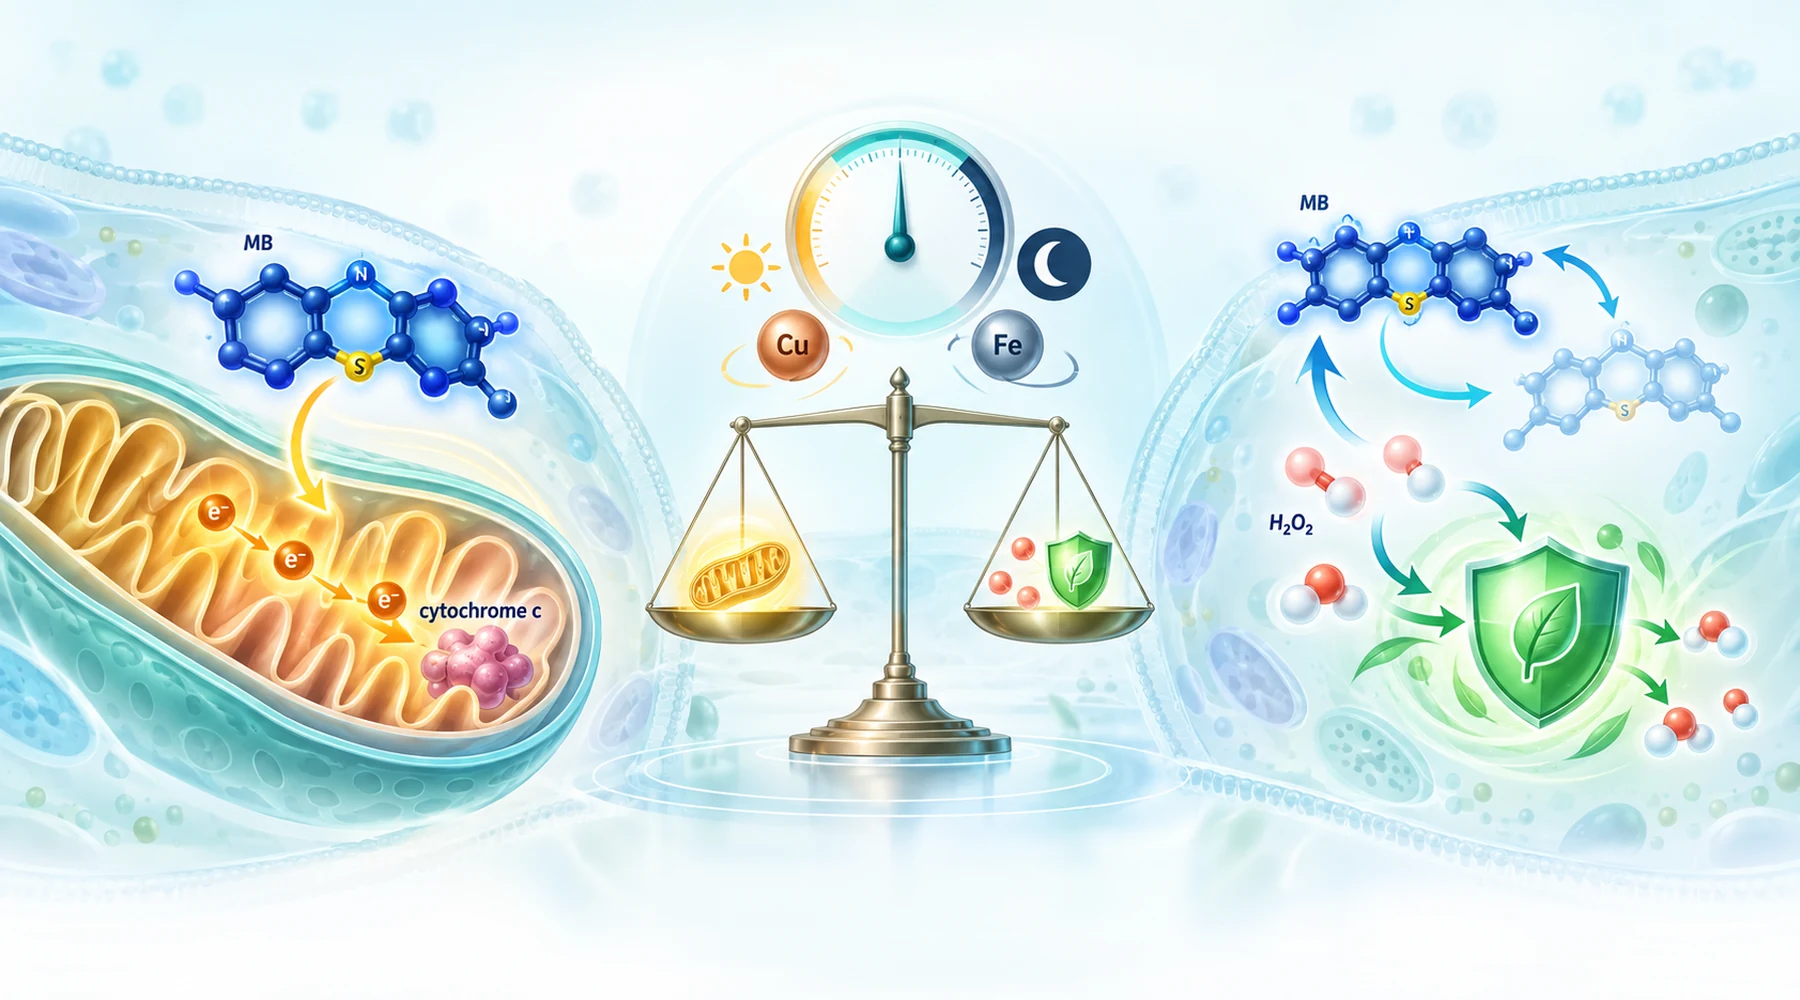
Припустімо, дві лабораторії досліджують той самий синій барвник і повідомляють про протилежні результати. У першій ізольовані мітохондрії мозку краще дихають і виробляють більше ATP. У другій такий самий препарат виділяє значно більше пероксиду водню. Обидва повідомлення правильні. Вони описують той самий цикл із двох боків, а плутанина починається, коли читачі сприймають один бік як повну картину.
Помилка — запитувати, який ярлик підходить молекулі. Метиленовий синій — це переносник електронів, як показує в ширшому контексті карта його клітинних мішеней. Окиснений барвник приймає електрони й перетворюється на безбарвний leucoMB. LeucoMB передає ці електрони далі й знову стає синім. Спостережуваний результат залежить від того, хто віддає електрони, хто їх приймає та чи здатна система усувати пероксид водню, що утворюється в процесі. Варто запитувати не про те, чи є барвник антиоксидантом, а про те, яку роботу цього переносника уможливлюють конкретні умови.
Цикл, що зумовлює обидві властивості
У темряві основний цикл короткий. NADH, NADPH або переносники дихального ланцюга відновлюють барвник. Далі відновлений барвник має кілька конкуруючих шляхів. Він може передати електрони цитохрому c й підтримати їхній потік в обхід пошкодженого комплексу — саме тому за блокади комплексу I або III дихання та мембранний потенціал частково відновлюються. Або він може передати електрони безпосередньо кисню, що відновлює синю форму й утворює пероксид водню. Оскільки барвник регенерується, невелика його кількість може багаторазово повторювати цей цикл, постійно витрачаючи відновні еквіваленти й утворюючи пероксид.
Ще два відгалуження повністю змінюють хімію процесу. Вільна мідь або залізо через реакції типу Фентона перетворюють цей здатний до дифузії пероксид на значно руйнівніші локальні окисники. Червоне світло запускає окремий фотохімічний шлях, у якому збуджений барвник передає енергію кисню й утворює синглетний кисень — форму, докладно розглянуту в поясненні фотохімії типу I та типу II. Окисно-відновний цикл у темряві, пошкодження, посилене металами, і фотодинамічне пошкодження — це три різні механізми, які лише мають спільну вихідну молекулу.
Матриця умов і результатів
Наведену нижче таблицю варто зберегти. Кожен рядок містить одну змінну, напрям її впливу та експериментальні дані, що його підтверджують. Позитивний напрям означає захисний ефект або поліпшення показника. Негативний — більше окисника, сильніше виснаження або більше пошкоджень.
| Умова | Напрям результату | Що показав експеримент |
|---|---|---|
| Низька концентрація, від 0.1 до 1 uM, ізольовані мітохондрії | Поліпшення біоенергетики та підвищення рівня пероксиду | 0.1 uM поліпшували споживання кисню мітохондріями серця здорових щурів і щурів із діабетом; від 100 nM до 1 uM частково відновлювали ATP, мембранний потенціал і поглинання кальцію в мітохондріях мозку з блокованим дихальним ланцюгом, тоді як виділення пероксиду зростало за всіх умов |
| Вища концентрація, понад 5 uM, клітини без глюкози | Негативний окиснювальний сигнал | За відсутності глюкози й концентрації понад 5 uM в ендотеліальних клітинах окиснювався загальний зонд ROS і знижувався вміст відновленого глутатіону; додавання глюкози запобігало обом явищам |
| Субстрати комплексу I (глутамат і малат) | Більше пероксиду | У дослідженнях мітохондрій як мозку, так і серця виявили підвищене виділення пероксиду із субстратами, пов’язаними з NADH |
| Сукцинат і ротенон, мітохондрії серця, 0.1 uM | Менше пероксиду в цьому протоколі | Єдиний у цій добірці показник пероксиду з виразно антиоксидантним напрямом; зауважте, що протокол передбачав ротенон та іншу тканину, тому сам лише субстрат цього не пояснює |
| Червоне світло, 20 uM і 630 nm | Негативне пошкодження ДНК | У темряві за 20 uM значущих ушкоджень мітохондріальної ДНК не було; та сама концентрація за червоного освітлення пошкоджувала кожен досліджений фрагмент |
| Дуже висока концентрація в темряві, 100 uM | Негативне вибіркове пошкодження ДНК | Вибіркові ушкодження мітохондріальної ДНК у послідовностях, багатих на пурини, — якісний перехід порівняно з пероксидним сигналом за наномолярних концентрацій |
| Мідь або залізо та NADH, ДНК у безклітинній системі | Негативні окиснювальні ушкодження | Мідь спрямовувала пошкодження на послідовність гарячої точки p53; комплекс заліза з EDTA спричиняв широке пошкодження; каталаза й хелатори металів блокували відповідні шляхи; вміст окисненого гуаніну зростав |
| Наявність глюкози, інтактні клітини | Захисне буферування попри швидший цикл | Глюкоза посилювала відновлення барвника, але знижувала сумарний стрес, що узгоджується з постачанням NADPH через пентозофосфатний шлях для регенерації антиоксидантів |
| Клітини з підвищеним вмістом аскорбату | Змішаний результат: аскорбат витрачався, сигнал зонда буферувався | Барвник поступово окиснював внутрішньоклітинний аскорбат навіть за наявності глюкози, водночас частково пригнічуючи окиснення зонда; ціною цього були витрати захисного резерву |
| Тварини з попереднім впливом ротенону, барвник вводили першим | Позитивний результат на рівні тканини | Попереднє введення барвника зменшувало спричинені ротеноном ушкодження мітохондріальної ДНК у середньому мозку мишей, попри підвищення рівня пероксиду в ізольованих мітохондріях |
Головне — закономірність, що простежується між рядками. Утворення пероксиду й біологічний захист — окремі виміри. Один вплив може одночасно мати негативний результат за першим і позитивний за другим.
Чому та сама доза дає різні результати
Концентрація визначає здатність переносити електрони, а не кінцевий результат. У дослідженні інтактних мітохондрій мозку помітне зростання виділення пероксиду починалося з 50 nM, тоді як явне пошкодження мітохондріальної ДНК у темряві потребувало 100 uM. Між першим сигналом і генотоксичністю є приблизно двотисячократна різниця, але це не запас безпеки. Кінцеві показники, компартменти й тривалість впливу різняться, тому ці числа позначають окремі явища, а не точки на одній кривій. Обговорення залежності ефекту від дози розглядає таку різницю між слабким сигналом і вираженим пошкодженням у ширшому контексті гормезису.
Субстрат визначає, звідки надходять електрони. Джерела енергії, пов’язані з NADH, забезпечують барвнику багато відновних еквівалентів як для корисного обхідного шляху, так і для марнотратної реакції з киснем. Часто цитоване узагальнення, що сукцинат робить барвник антиоксидантом, а глутамат — прооксидантом, виходить за межі даних. Адже в дослідженні серця умова вимірювання пероксиду із сукцинатом також включала ротенон, а тканина й доза відрізнялися від дослідження мозку, у якому виявили підвищення рівня пероксиду за всіх субстратів і станів дихання.
Світло змінює механізм, а не лише величину ефекту. Найчіткіший контраст у цій добірці: 20 uM у темряві не спричиняли помітних змін у фрагментах мітохондріальної ДНК, а 20 uM за червоного освітлення пошкоджували їх усі. Порівнюючи експеримент на світлі з експериментом у темряві, ми порівнюємо фотохімію з окисно-відновним циклом.
Метали перетворюють окисник. Без металів цикл барвника в темряві утворює пероксид — здатну до дифузії молекулу, яку клітини також використовують як сигнал. За наявності доступної міді або заліза барвник, відновлений NADH, забезпечує відновлення металу, а відновлений метал активує пероксид з утворенням частинок гідроксильного типу або пероксидних сполук міді поруч із ДНК. Саме так у безклітинному дослідженні з NADH та іонами металів той самий вихідний барвник спричиняв і вибіркове пошкодження гарячих точок, і широке пошкодження ДНК. Значущість цього шляху визначає поводження з металами в компартменті, а не сам лише барвник.
Забезпеченість джерелами енергії визначає, чи може клітина покрити витрати. В ендотеліальних клітинах під впливом від 2 до 20 uM барвника видалення глюкози виявляло окиснювальні витрати, а її надходження усувало їх, хоча глюкоза також прискорювала відновлення барвника. Швидший цикл із забезпеченим захистом кращий за повільніший цикл із виснаженим захистом. Будь-яке твердження про окиснювальний ефект, у якому не зазначено забезпеченість глюкозою або NADPH, слід вважати неповним.
Тканина визначає набір механізмів. Ендотеліальні клітини регенерують NADPH через метаболізм глюкози й мають цитозольні запаси антиоксидантів. Ізольовані мітохондрії не мають нічого з цього. Очищена ДНК не має навіть механізмів репарації. Результат в одному препараті мало що передбачає для інших, тому в запланованій статті про тканинно-специфічні відповіді ці системи потрібно буде розглядати окремо.
Пряме вимірювання — не те саме, що подальший захист
У багатьох текстах зливаються два рівні, які в експериментах розділяють. На одному запитують, скільки окисника з’явилося. На іншому — як відповіла клітина.
Аналізи пероксиду типу Amplex найближчі до першого рівня, але навіть вони показують результуючий потік: утворення мінус руйнування мінус виведення. У дослідженні мітохондрій мозку виявили зміни з обох боків: більше утворення пероксиду й повільніше усунення доданої порції пероксиду. Далі в ланцюгу наслідків перебувають окиснення глутатіону, витрачання аскорбату, окиснений гуанін і ушкодження ДНК, що блокують полімеразу. На кожному кроці між окисником і вимірюваним показником додаються біологічні процеси.
Антиоксидантні ферменти, регульовані Nrf2, і мітохондріальний біогенез належать до другого рівня. Це адаптивні програми, які може запускати слабкий імпульс пероксиду. Автори дослідження захисту мітохондрій мозку пропонують саме такий тригер слабкого стресу, водночас зазначаючи, що причинний ланцюг через Nrf2 спирається на попередні роботи, а не на їхнє власне повне доведення. Захист, що з’являється через кілька годин завдяки новим білкам, не означає, що початкова хімічна реакція була антиоксидантною. Це означає, що невелика прооксидантна подія забезпечила сильніший захист. Правила обережного тлумачення таких тверджень, зокрема обмеження аналізів і відмінності між препаратами, розглянуто в посібнику з читання досліджень метиленового синього.
Чому результати аналізів не узгоджуються між собою
Загальний зонд, як-от дигідрофлуоресцеїн, показує неспецифічне окиснення зонда, а не концентрацію пероксиду. Його сигнал залежить від хімії пероксидаз і гему, тому він може не помітити зростання рівня пероксиду, яке виявляє калібрований аналіз Amplex. У дослідженні мітохондрій мозку спостерігали різко підвищений рівень пероксиду без відповідного супероксидного сигналу. Це застерігає від цитування будь-якого окремого твердження про антиоксидантний ефект, що ґрунтується на барвниковому зонді. Перекриття оптичних спектрів — обґрунтоване питання для контрольної перевірки, оскільки барвник поглинає видиме світло поблизу поширених смуг збудження та емісії. Проте в ретельно проведеному дослідженні виконали калібрування за відомими концентраціями пероксиду, скоротили вплив збуджувального світла майже без зміни сигналу й підтвердили повільніше усунення пероксиду окремим електродом. Інтерференція потребує контрольної перевірки, а не автоматичного відхилення результату.
Результат щодо кальцію показує ту саму потребу в точності. У дослідженні серця короткочасний вплив барвника не змінював загального накопичення кальцію до переходу проникності, але він поліпшував швидкість поглинання кальцію в мітохондріях мозку з блокованим дихальним ланцюгом у зосередженому на діабеті дослідженні мітохондрій серця. Різні кінцеві показники, різні системи — жодної суперечності.
Перелік перевірок, перш ніж довіряти висновку
Сприймайте кожен висновок про антиоксидантну чи прооксидантну дію як повідомлення про конкретну систему й ставте п’ять запитань. За якої концентрації та в якому компартменті? З яким донором електронів і яким конкуруючим акцептором? На світлі чи в темряві, за якої довжини хвилі й дози опромінення? Які метали доступні та наскільки забезпечені джерела енергії й запаси антиоксидантів? І яким аналізом вимірювали потік окисника, пошкодження чи адаптивну відповідь? Змініть будь-яку відповідь — і та сама молекула може переміститися в матриці від захисної до пошкоджувальної дії без жодного парадоксу.