
Članak
Metilensko plavo i zapaljenska signalizacija: inflamazomi, IL-6 i STAT3
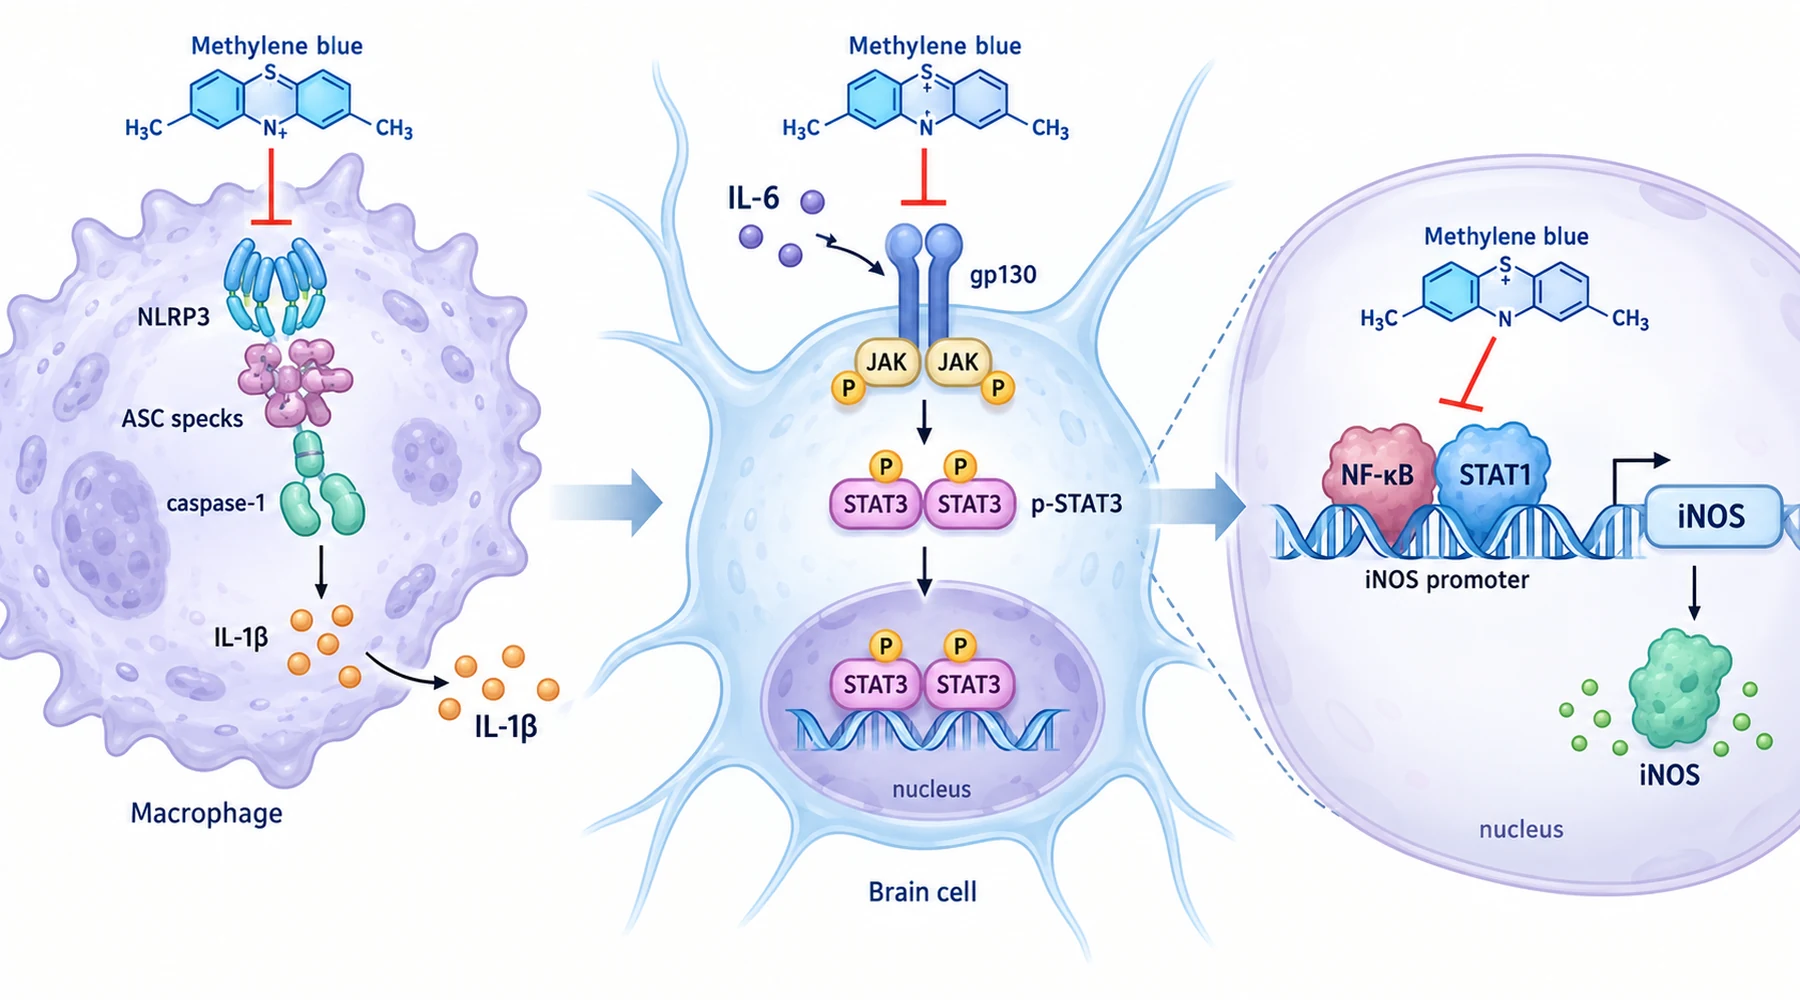
Pretpostavimo da tri laboratorije prijave da isto plavo jedinjenje deluje protivzapaljenski. Jedna pokazuje manje IL-1beta iz makrofaga. Druga pokazuje manje enzima iNOS u istom tipu ćelija. Treća pokazuje manje IL-6 u krvi i manju aktivnost STAT3 u mozgu. Primamljivo je objediniti ova tri rezultata u jednu tvrdnju. Takvo objedinjavanje zamagljuje nalaz.
Svaki rezultat pripada drugom konceptu signalizacije, sa sopstvenim okidačem, korakom sklapanja i merenim pokazateljem. Metilensko plavo deluje na svaki od tih procesa na različitom mestu. Da li bilo šta od toga poboljšava zdravstveni ishod zasebno je pitanje, obrađeno u našem pregledu metilenskog plavog i zapaljenja. Ova stranica se zadržava na signalnim putevima.
Put 1: sklapanje inflamazoma i kaspaza-1
Inflamazom je proteinska platforma koja se po potrebi sklapa unutar mijeloidne ćelije. Njegovi delovi su senzor, adapterski protein nazvan ASC i efektorski enzim nazvan kaspaza-1. Nakon sklapanja, kaspaza-1 cepa pro-IL-1beta i pro-IL-18 u oblike koji se izlučuju i može da pokrene piroptozu, zapaljenski oblik ćelijske smrti. Senzor određuje tip: NLRP3 reaguje na kristale i toksine koji stvaraju pore, poput nigericina i ATP, NLRC4 reaguje na bakterijski flagelin, AIM2 reaguje na dvolančanu DNK u citosolu, a nekanonski put reaguje na unutarćelijski lipopolisaharid.
Za aktivaciju su potrebna dva signala. Prvi signal je priprema: ligand receptora sličnog Toll receptorima pokreće transkripciju NLRP3 i pro-IL-1beta zavisnu od NF-kB, čime obezbeđuje potrebne komponente. Drugi signal je sklapanje: drugi okidač dovodi do oligomerizacije ASC u tačkaste agregate, cepanja kaspaze-1 u njen fragment p20 i oslobađanja zrelog IL-1beta p17. Poznato je da mitohondrijske reaktivne kiseonične vrste i unos kristala doprinose drugom signalu za NLRP3.
U studiji iz 2017. o širokoj inhibiciji inflamazoma u makrofagima metilensko plavo je ispitano pri oba signala. U makrofagima iz koštane srži miševa, prethodno pripremljenim lipopolisaharidom, nigericin, ATP i kristali mononatrijum-urata izazivali su oslobađanje IL-1beta i kaspaze-1, kao i stvaranje tačkastih agregata ASC. Metilensko plavo pri koncentracijama od 20 do 200 mikromolara smanjilo je sva tri pokazatelja na način zavisan od doze, bez ubijanja ćelija. Isti obrazac pokazali su flagelin i Salmonella za NLRC4, dvolančana DNK i Listeria za AIM2, kao i lipopolisaharid unet transfekcijom ili živa E. coli za nekanonski put. Samo jedinjenje nije pokretalo oslobađanje, a kontrolne ploče nisu pokazale antibakterijski efekat, pa se rezultat odnosi na odgovor domaćina.
Uzvodno su merena tri mesta delovanja. Mitohondrijski superoksid izazvan rotenonom smanjio se uz metilensko plavo, a zajedno s njim smanjilo se i oslobađanje IL-1beta izazvano rotenonom. Unos fluorescentnih kuglica se smanjio, što je u skladu sa smanjenom fagocitozom pre prepoznavanja kristala. Reporter pod kontrolom promotora NLRP3 sa dva mesta za NF-kB pokazao je nižu aktivnost uz metilensko plavo, dok skraćeni promotor bez tih mesta nije reagovao. U epruveti bez ćelija, metilensko plavo je takođe direktno smanjilo aktivnost rekombinantne ljudske kaspaze-1. Dodavanje jedinjenja samo tokom pripreme ili samo tokom aktivacije i dalje je smanjivalo oslobađanje IL-1beta, IL-18 i kaspaze-1, pa su uključena oba koraka.
Ispitivanja na miševima bila su u skladu sa ovom selektivnošću. Smrtonosna doza lipopolisaharida usmrtila je kontrolne životinje u roku od nekoliko sati, dok je metilensko plavo poboljšalo preživljavanje; peritonealni IL-1beta se smanjio, ali IL-6 u istoj tečnosti nije. U modelu peritonitisa izazvanog bakterijom Listeria, peritonealni IL-1beta se smanjio, dok je ukupan broj ćelija ostao nepromenjen. Ljudski monociti THP-1 ponašali su se kao mišji makrofagi kod sva četiri tipa inflamazoma. Nalaz koji se odnosi na inflamazom objašnjava sazrevanje IL-1beta i IL-18, a ne svaki citokin. Zato i oblik imunskih ćelija mozga u eksperimentima sa mikroglijom i astrocitima daje odgovor na drugačije pitanje od sklapanja proteinske platforme.
Put 2: transkripcija iNOS kroz vezivanje NF-kB i STAT1
Inducibilna sintaza azot-monoksida, odnosno iNOS, jedva je prisutna u stanju mirovanja, a njena transkripcija pokreće se po potrebi. Lipopolisaharid je pokreće prvenstveno razgradnjom IkB-alpha, nakon koje slede fosforilacija NF-kB i njegov ulazak u jedro. Interferon-gama je pokreće prvenstveno fosforilacijom STAT1 posredstvom Janus kinaze, nakon koje sledi ulazak STAT1 u jedro. Svaki faktor se zatim vezuje za svoje mesto na promotoru iNOS. Aktivnost enzima i indukcija gena zasebne su kontrolne tačke, a lek može delovati na jednu ili obe.
Studija iz 2015. o indukciji iNOS u makrofagima i miševima sa endotoksemijom smestila je efekat na nivo informacione RNK. U ćelijama RAW 264.7 i primarnim mišjim makrofagima, metilensko plavo u koncentraciji od 1 mikromolara, primenjeno 30 minuta pre lipopolisaharida, interferona-gama ili oba, smanjilo je protein iNOS i njegovu mRNA tokom perioda od 8 do 24 sata, uz manje nitrita u medijumu i bez smanjenja vijabilnosti. Kod miševa koji su primili 25 mg po kg lipopolisaharida, pojedinačna doza od 5 mg po kg primenjena jedan sat ranije smanjila je protein iNOS i njegovu mRNA u plućima, jetri i srcu.
Posebno je važno ono što se nije promenilo. Razgradnja IkB-alpha, fosforilacija NF-kB, fosforilacija STAT1 i nakupljanje oba faktora u jedru ostali su očuvani. Promena je nastupila jedan korak kasnije: ekstrakti jedra pokazali su manje vezivanje NF-kB za njegov element DNK nakon lipopolisaharida i manje vezivanje STAT1 nakon interferona-gama, a imunoprecipitacija hromatina potvrdila je manju zauzetost promotora iNOS svakim od ova dva faktora unutar ćelija. Smanjio se i faktor nekroze tumora alfa, čiji promotor takođe koristi NF-kB. Faktori su bili aktivirani i stigli su u jedro, ali su se slabije vezivali za svoju ciljnu DNK.
Obratite pažnju na razliku u odnosu na put 1. Ovde je reč o vezivanju faktora za DNK, učestvuje STAT1 umesto STAT3, a mere se mRNA, protein i nitriti, umesto tačkastih agregata ASC i fragmenata kaspaze-1. Naša mapa ciljnih mesta delovanja metilenskog plavog u ćelijskim modelima odvaja ovaj transkripcioni nivo od direktnih merenja enzimske aktivnosti i mitohondrijskih procesa.
Put 3: IL-6 u serumu i aktivacija STAT3 u tkivima
IL-6 prenosi signal preko porodice receptora gp130 u kaskadu od Janus kinaze do STAT3. Fosforilisani STAT3 dimerizuje, ulazi u jedro i pokreće zapaljenske programe, dok je sam IL-6 cilj NF-kB, pa ova dva činioca obrazuju petlju povratne sprege koja se često naziva osa IL-6–STAT3. Standardni mereni pokazatelji su uzvodni IL-6 u serumu, odnos fosforilisanog i ukupnog STAT3 i nizvodni efektorski enzimi kao što su iNOS i COX2.
Studija iz 2023. na miševima o IL-6 i STAT3 nakon lipopolisaharida merila je ovu osu u različitim telesnim odeljcima. Mužjaci miševa C57BL/6 primali su 1 mg po kg lipopolisaharida dnevno tokom tri dana, uz 5 ili 10 mg po kg metilenskog plavog 30 minuta nakon svake doze. Trećeg dana, IL-6 u serumu bio je niži u obe grupe koje su primale metilensko plavo nego u grupi koja je primala samo lipopolisaharid, dok se većina drugih citokina u panelu nije promenila tokom tretmana. Odnosi fosforilisanog i ukupnog STAT3 bili su niži u korteksu, hipokampusu i koži uha, uz slabije bojenje mikroglije za Iba-1, niže nivoe iNOS i COX2 i delimično ublažen gubitak telesne mase.
Ovde su potrebne dve napomene. Niži IL-6 u serumu uz manju fosforilaciju STAT3 u tkivima odgovara modulaciji ove ose, ali ne izdvaja primarno mesto delovanja, jer manje uzvodnog citokina, slabija receptorska signalizacija ili izmenjena aktivnost fosfataza mogu dati isti odnos. Takođe, telesna masa tokom tri dana akutnog izlaganja predstavlja pokazatelj na nivou cele životinje, a ne ocenu simptoma ili remisije. Ona pruža kontekst izvan rezultata blota, ali ne pretvara nalaz o signalizaciji u tvrdnju o lečenju. Zasebni hemijski procesi mitohondrijske redoks regulacije odvijaju se paralelno sa ovim citokinskim procesima i ne treba ih objedinjavati.
Poređenje puteva: mesta delovanja i mereni pokazatelji

| Put | Okidač u ovim radovima | Gde deluje metilensko plavo | Pokazatelj koji se promenio |
|---|---|---|---|
| Sklapanje inflamazoma | Nigericin, ATP, kristali urata, flagelin, DNK, citosolni lipopolisaharid | Manja transkripcija tokom pripreme, manje mitohondrijskih ROS, manja fagocitoza, manje sklapanja ASC, direktna inhibicija kaspaze-1 | Manje kaspaze-1 p20, manje zrelih IL-1beta i IL-18, manje tačkastih agregata ASC |
| Transkripcija iNOS | Lipopolisaharid preko NF-kB; interferon-gama preko STAT1 | Manje vezivanje NF-kB i STAT1 za promotorsku DNK uprkos normalnoj aktivaciji i ulasku u jedro | Manje mRNA i proteina iNOS, manje nitrita |
| Osa IL-6–STAT3 | Trodnevna primena lipopolisaharida kod miševa | Niži IL-6 u serumu uz manju fosforilaciju STAT3 u tkivima | Niži odnos pSTAT3 i STAT3 u korteksu, hipokampusu i koži; niži nivoi iNOS, COX2, Iba-1 |
Tabela sprečava tri neopravdana prenošenja zaključaka. Nalaz o tačkastim agregatima ASC ne dokazuje nalaz o STAT3. Nalaz o vezivanju STAT1 za promotor iNOS ne dokazuje nalaz o STAT3, iako oba proteina pripadaju porodici STAT. Nalaz o IL-6 u serumu ne dokazuje smanjeno sklapanje inflamazoma: u peritonealnom eksperimentu IL-1beta se smanjio, dok IL-6 nije. Svaki red zahteva sopstveni okidač i mereni pokazatelj, zbog čega čitanje ćelijskih, životinjskih i kliničkih studija metilenskog plavog zahteva povezivanje svake tvrdnje sa nivoom na kojem je merena.
Ništa od ovoga ne utvrđuje doziranje, bezbednost ili korist kod ljudi. Modeli sa lipopolisaharidom predstavljaju kontrolisane okidače za ispitivanje mehanizma, a ne replike hroničnih bolesti. Primena uz okidač ispituje sprečavanje izazvane promene, a ne preokretanje već razvijene bolesti. Ovaj prikaz mehanizama treba odvojiti od ishoda kod pacijenata, a svaku zdravstvenu tvrdnju procenjivati prema studiji na pacijentima koja je potkrepljuje.