
Članak
Metilensko plavo za bojenje DNK i RNK: primena na gelovima i membranama
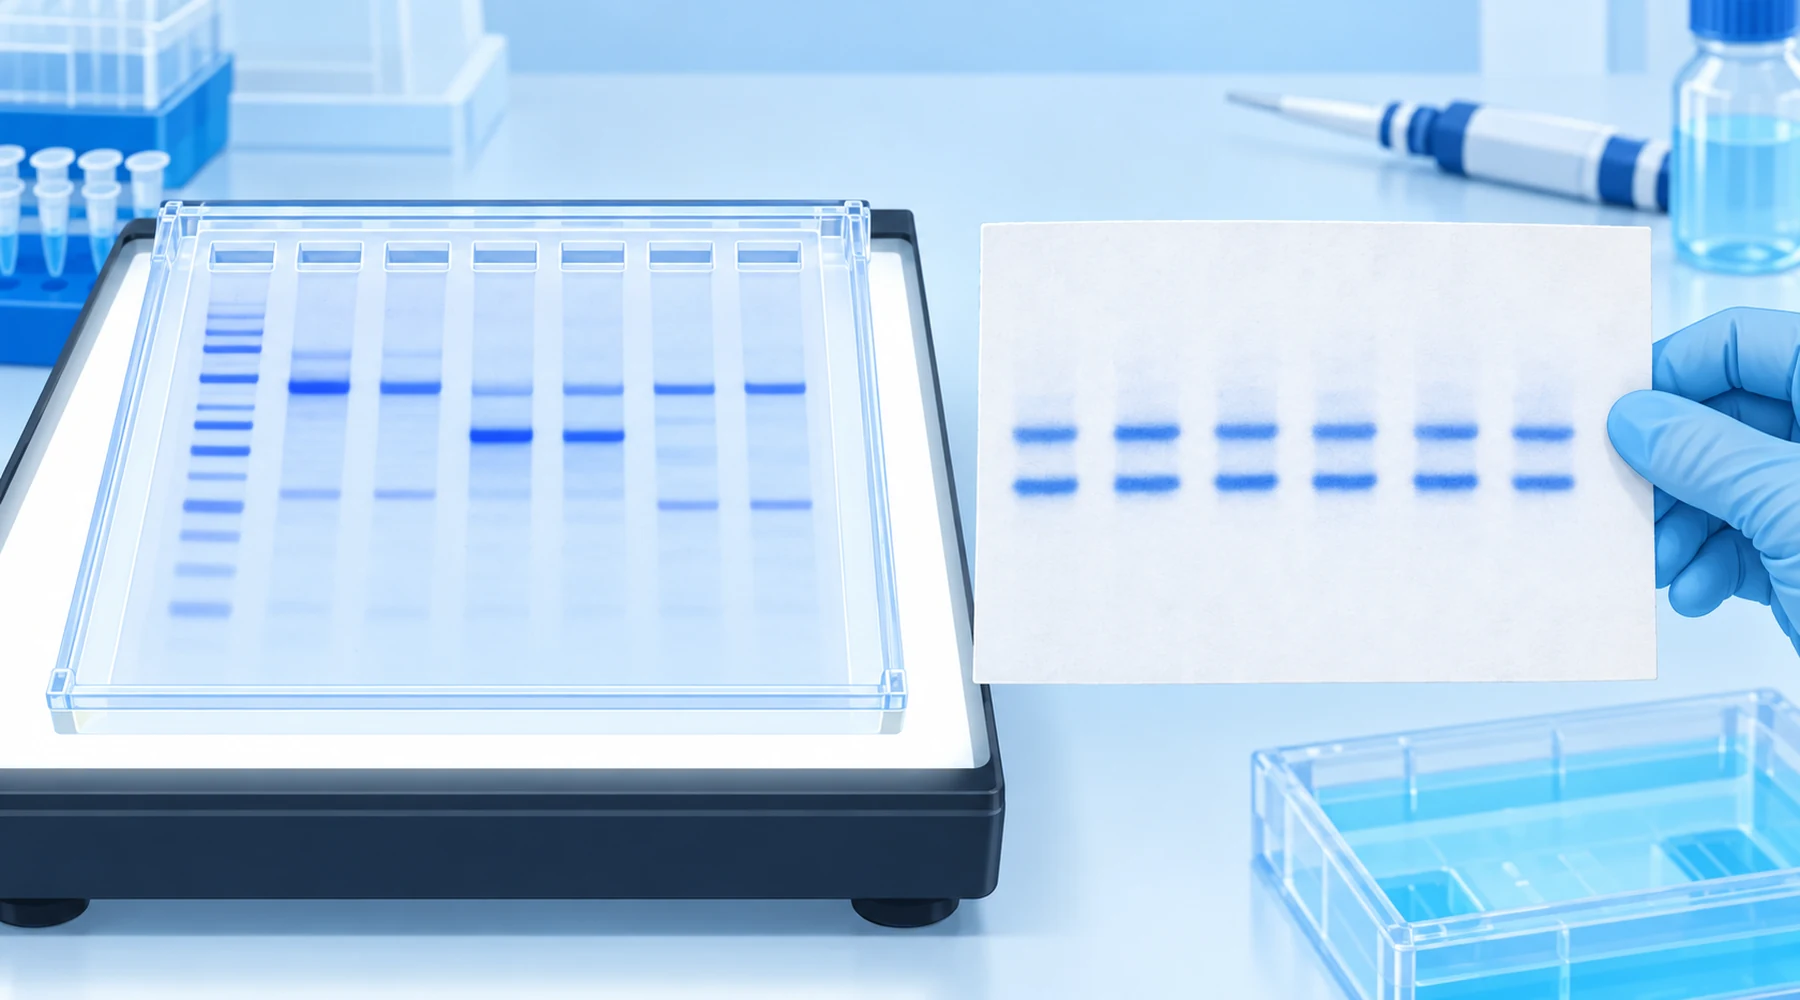
Student izvodi elektroforezu na agaroznom gelu, boji ga metilenskim plavim i ne vidi ništa tamo gde je očekivao jasno vidljivu traku. Za susednim radnim mestom, postdoktorand boji Northern membranu bojom iz iste plave bočice i za tri minuta dobija oštre ribozomske trake. Student zaključuje da gel nije uspeo. Gel nije podbacio. Zadaci su bili različiti, a ista boja u njima daje rezultate sa različitom osetljivošću, različitom pozadinom i različitim pravilima za naredne korake.
Bojenje DNK i bojenje RNK metilenskim plavim zasnivaju se na istoj hemiji, ali nemaju istu svrhu. U gelu, boja pokazuje koliko nukleinske kiseline ima unutar poroznog matriksa. Na membrani pokazuje da li je prenos uspeo i da li su u staze nanete ujednačene količine uzorka. Kada se ta razlika razjasni, protokoli, granice detekcije i ograničenja kompatibilnosti postaju razumljivi.
Kratak odgovor
Metilensko plavo je planarna katjonska boja koja se vezuje za nukleinske kiseline nekovalentno i reverzibilno, kombinacijom elektrostatičkog privlačenja prema fosfatima, interkalacije između baznih parova i vezivanja u malom žlebu. Upravo je ta reverzibilnost ključna. Trake se mogu obojiti i posmatrati pri vidljivoj svetlosti, dokumentovati, a zatim odbojiti ili prečistiti za kloniranje, hibridizaciju ili ponovno ispitivanje probom.
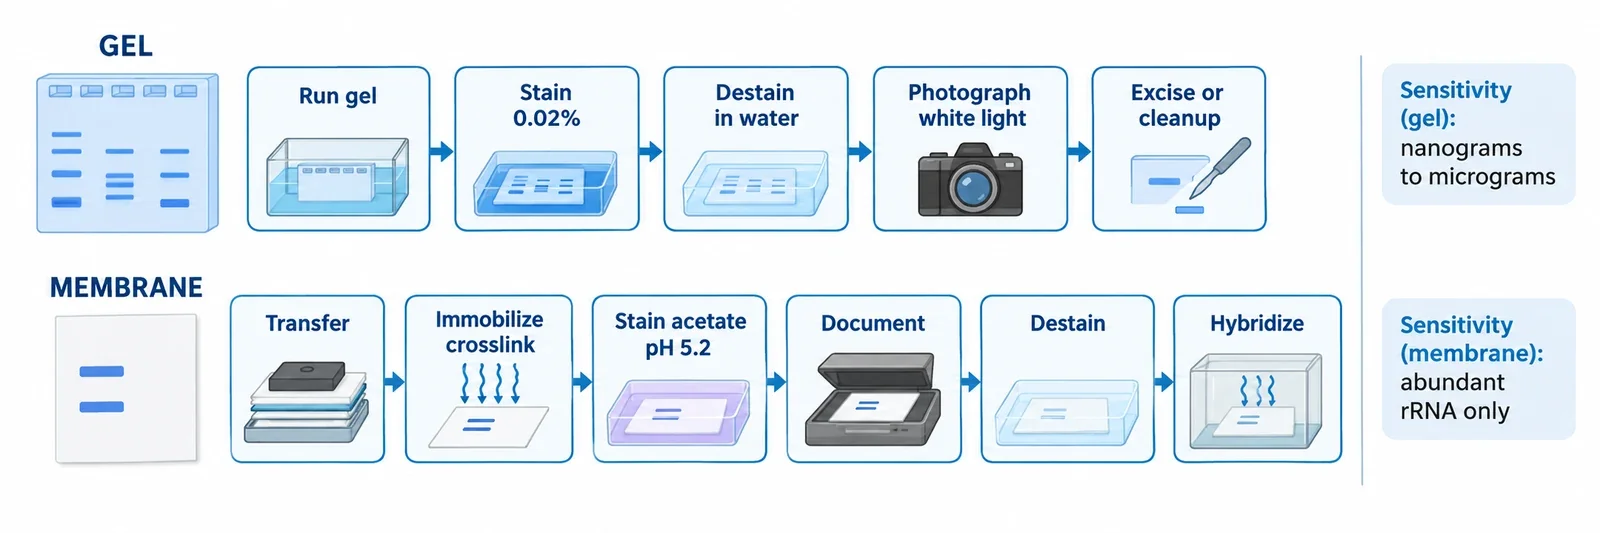
Za bojenje dvolančane DNK metilenskim plavim u agaroznom gelu, standardni brzi postupak koristi 0.02 procenata w/v (200 mikrograma po mL) u vodi, oko 15 minuta bojenja i oko 15 minuta odbojavanja vodom, uz posmatranje na iluminatoru sa belom svetlošću. Za membrane, klasični postupak za Northern blot koristi 0.02 do 0.04 procenata boje u natrijum-acetatu pri pH približno 5.2, nekoliko minuta bojenja nakon prenosa i imobilizacije, zatim ispiranje vodom i potpuno odbojavanje pre hibridizacije. Osetljivost je skromna: desetine do stotine nanograma po traci u gelu pod dobrim uslovima, dok konzervativni vodiči navode 0.5 do 1 mikrogram. To je za više redova veličine iznad granica detekcije etidijum-bromida i SYBR boja. Na membranama ne postoji korisna jedinstvena granica detekcije pojedinačnog transkripta jer boja uglavnom prikazuje obilnu ribozomsku RNK i ukupan naneti materijal. Ni u jednom postupku nemojte koristiti maloprodajni rastvor dodatka ishrani kao zamenu. Validirane metode podrazumevaju boju analitičke čistoće, definisane pufere i rukovanje bez RNaza kada se radi sa RNK.
Kako vezivanje funkcioniše i gde može da zavara
Koristan model ima tri dela. Prvo, pozitivno naelektrisan prstenasti sistem privlači negativno naelektrisana fosfatna okosnica. Spektroskopska istraživanja pokazuju da ova elektrostatička komponenta dominira pri niskim koncentracijama soli, dok modelovanje i molekulska dinamika ukazuju na interkalaciju i vezivanje u malom žlebu kao stabilne načine vezivanja za dvolančanu DNK, kako je sažeto u spektroskopskoj studiji vezivanja metilenskog plavog za DNK. Drugo, postoji izvesna sklonost ka GC sekvencama: modelovanje daje prednost koracima CpG i GpC, a eksperimenti pokazuju prvenstveno vezivanje za duplekse bogate GC parovima u radu o preferencijama interkalacije metilenskog plavog, ali se boja vezuje i za AT duplekse. Rutinsko bojenje nije specifično za sekvencu. Treće, jednolančana DNK i RNK vezuju boju uglavnom elektrostatičkim interakcijama i slaganjem sa dostupnim bazama i dvolančanim regionima, zbog čega intenzitet bojenja zavisi od dužine, sekvence i sekundarne strukture.
Iz toga slede dve posledice. Pošto je vezivanje nekovalentno, boja se ispira. Trake u poliakrilamidu brzo blede ako se namerno ne fiksiraju, a posebna varijanta trajne fiksacije postoji upravo zato što je normalno bojenje privremeno, kao što su opisali Soto i Draper za PAGE gelove. Pošto je boja fotosenzibilizator, dugo izlaganje obojene DNK jakoj svetlosti u prisustvu kiseonika može da oksiduje guanin i vremenom izazove prekide pojedinačnih lanaca, mehanizam detaljno opisan u radu o oksidaciji guanina posredovanoj metilenskim plavim kao fotosenzibilizatorom. Kratko posmatranje pri beloj svetlosti izbegava dobro poznato UV oštećenje iz klasičnih postupaka sa etidijum-bromidom, što predstavlja stvarnu prednost pri preparativnom izdvajanju. Vidljiva svetlost je blaža, ali nije bezopasna. Osvetljavanje neka bude kratko kada će se DNK koristiti za kloniranje. Za širu fotohemijsku osnovu tog upozorenja pogledajte dva puta u fotohemiji metilenskog plavog. Za redoks par i stanja naelektrisanja koja objašnjavaju zašto se oksidovani oblik vezuje, a redukovani ne, pogledajte hemiju strukture i svojstava metilenskog plavog.
Prvi zadatak: bojenje u gelovima
Bojenje gela odgovara na jedno pitanje: ima li u ovoj traci dovoljno nukleinske kiseline da bi se videla golim okom. Dvolančana DNK u agarozi je najbolje proučen slučaj. Originalna metoda bojenja gela metilenskim plavim koju su razvili Flores i saradnici validirala je brzi protokol sa 0.02 procenata boje na agarozi od 1 procenta i pokazala uspešno izdvajanje i naknadno kloniranje. Isti protokol dobavljača nalazi se na stranici proizvoda metilensko plavo kompanije IBI Scientific, gde su uporedo navedeni postupak za membrane sa 0.04 procenata boje i brza varijanta za gelove.
Praktičan postupak:
- Izvedite elektroforezu na gelu na uobičajen način. Bojite nakon elektroforeze, ne tokom nje, osim ako su prenos ili razdvajanje validirani za izmenjenu metodu.
- Potopite u metilensko plavo koncentracije 0.02 procenata w/v u destilovanoj vodi, uz blago mešanje, oko 15 minuta.
- Odbojavajte uz nekoliko promena vode, ukupno oko 15 minuta, dok se pozadina matriksa ne smanji i trake ne postanu uočljive.
- Odmah fotografišite na iluminatoru sa belom svetlošću.
Agaroza i poliakrilamid se ponašaju različito. Agaroza zadržava boju u matriksu, pa je odbojavanje sporiji korak. Tanki poliakrilamidni gelovi brzo se boje, ali i brzo gube boju, što olakšava preparativno isecanje, a otežava arhiviranje rezultata. Sintetički oligonukleotidi u poliakrilamidu mogu se locirati istim postupkom sa 0.02 procenata boje za 20 do 30 minuta, uz ponovljena ispiranja vodom, prema ustaljenim PAGE metodama tipa Current Protocols. Opisane su i veoma razblažene varijante, približno 0.0002 procenata u razblaženom TBE puferu, za preparativne oligonukleotide tokom nekoliko sati, ali je baza dokaza slabija.
Važno je da li je u pitanju DNK ili RNK. Dvolančana DNK daje najjače strukturno uslovljeno vezivanje. RNK i jednolančana DNK se boje, ali slabije i manje predvidljivo. Kod agaroznih gelova za RNK sa formaldehidom, većina laboratorija preskače bojenje metilenskim plavim u gelu i prvo prenosi RNK na membranu, pa je tamo boji. Time se slab signal u gelu zamenjuje oštrijim signalom na membrani, uz evidenciju nanetih količina.
Drugi zadatak: bojenje na membranama
Bojenje membrane odgovara na drugo pitanje: da li je prenos uspeo i da li su staze uporedive. Klasična primena je reverzibilno bojenje Northern blota po Herrinu i Schmidtu, prvobitno sa 0.04 procenata boje u 50 mM natrijum-acetatu pri pH 5.0 tokom 2 do 3 minuta, uz ispiranje vodom; boja se pre hibridizacije može ukloniti razblaženim SDS-om u SSPE puferu.
Široko korišćena savremena varijanta izgleda ovako:
- Prenesite RNK ili denaturisanu DNK na najlon ili nitrocelulozu, zatim je imobilizujte UV umrežavanjem ili zagrevanjem kako se uzorak ne bi izgubio tokom bojenja.
- Opciono, ali uobičajeno: navlažite membranu u sirćetnoj kiselini od 5 procenata tokom oko 15 minuta.
- Bojite 5 do 10 minuta u metilenskom plavom koncentracije 0.02 do 0.04 procenata u 0.3 do 0.5 M natrijum-acetatu pri pH približno 5.2.
- Isperite i odbojavajte u vodi 5 do 15 minuta, dokumentujte, a zatim uklonite preostalu boju pre hibridizacije.
Pozitivno naelektrisan najlon dominira u radu sa Northern blotom. Nitroceluloza takođe funkcioniše uz isti postupak sa sirćetnom kiselinom i acetatom. Snimak se koristi za potvrdu prenosa, poređenje traka 28S i 18S (ili 23S i 16S za bakterijsku RNK), označavanje lestvica i standarda i vođenje približne evidencije za normalizaciju ukupne RNK. Objavljene Northern metode kvantifikuju obojene ribozomske trake radi provere nanetih količina, uključujući istraživanje iz oblasti mlekarstva koje je koristilo ribozomske trake obojene metilenskim plavim za normalizaciju. Southern membrane mogu se vizualizovati na isti način, ali je boja mnogo bolje utvrđena kao sredstvo za proveru nanetih količina i prenosa u Northern postupcima, a DNK za Southern se denaturiše pre prenosa, pa se vrednosti osetljivosti za gelove ne mogu preneti na taj postupak.
Granice detekcije i pozadina: gde plava boja zaostaje
Poređenje u nastavku namerno je približno. Učinak boje zavisi od procenta gela, širine trake, optike i doslednog odbojavanja. Svaku vrednost posmatrajte kao red veličine, ne kao specifikaciju.
| Boja i format | Približna detekcija po traci | Tumačenje |
|---|---|---|
| Metilensko plavo, dsDNA u agarozi | 40 do 250 ng u optimizovanim uslovima; 0.5 do 1 mikrogram prema konzervativnoj proceni | Dovoljno dobro za preparativne količine i nastavne gelove. Slabo za trake sa tragovima materijala. |
| Metilensko plavo, kratka ssDNA ili RNK ili oligonukleotidi u PAGE | Približno 0.1 do 0.5 mikrograma | Zavisi od dužine i strukture. Nema univerzalne granice. |
| Etidijum-bromid, dsDNA u agarozi | Oko 1 do 10 ng | Približno četiri puta osetljiviji od optimizovanog bojenja metilenskim plavim u poređenju koje su sproveli Flores i saradnici. Zahteva UV. |
| SYBR Green I, dsDNA | Oko 60 pg | Potrebno je fluorescentno snimanje. |
| SYBR Gold, DNK i RNK | Oko 25 pg | Više od deset puta osetljiviji od etidijum-bromida u nekoliko formata. |
| Bojenje srebrom, nukleinske kiseline u PAGE | Oko 0.3 do 0.9 ng; prijavljeno je 100 pg RNK u optimizovanom postupku bojenja metilenskim plavim, pa srebrom | Veoma osetljivo, ali hemijski složeno i nepogodno za izdvajanje materijala. |
| Toluidinsko plavo, RNK i oligonukleotidi u PAGE | Radne količine od više stotina ng, dokumentovano oko 250 ng | Vidljiva svetlost kao kod metilenskog plavog, ali bez standardizovane granice uporedive sa SYBR specifikacijama. |
Kontrola pozadine određuje da li je skroman signal upotrebljiv. Slobodna boja je intenzivno obojena, pa kontrast nastaje uklanjanjem nevezane boje bez skidanja vezane boje. Koncentrovanija boja retko povećava osetljivost. Uglavnom produžava vreme odbojavanja. Ispitajte seriju razblaženja na tačno onom gelu, membrani i kameri koje koristite i upotrebljavajte samo opseg u kome integrisani intenzitet ostaje proporcionalan unetoj količini. Metilensko plavo omogućava semikvantitativnu normalizaciju nanetih količina. Ono nije kvantitativni test sa širokim dinamičkim opsegom jer se kapacitet membrane, efikasnost prenosa, zasićenje i odbojavanje razlikuju od staze do staze.
Ograničenja kompatibilnosti: šta ostaje upotrebljivo nakon bojenja
Kloniranje nakon bojenja metilenskim plavim je dokazano. Flores i saradnici isecali su obojene trake iz agaroze, izdvajali DNK, a zatim je ligirali i koristili za transformaciju, uz bolje rezultate kloniranja nego nakon etidijum-bromida i UV osvetljavanja. Verovatan razlog je manje fotooštećenje, a ne korist od same boje. Izlaganje beloj svetlosti neka bude kratko, a izdvojenu DNK prečistite uobičajenim postupkom ekstrakcije iz gela.
Za PCR i sekvenciranje dokazi su oskudniji. Preostala boja vezuje nukleinske kiseline, zato odbojite i prečistite materijal pre enzimskih koraka. Očekuje se da pravilno prečišćena DNK iz gela obojenog metilenskim plavim bude upotrebljiva, ali tolerancija na direktno prenetu boju nije dobro kvantifikovana za različite polimeraze i hemijske sisteme za sekvenciranje. Nemojte je podrazumevati.
Hibridizacija blota je kompatibilna kada se strogo poštuje redosled: prenos, imobilizacija, bojenje, dokumentovanje, odbojavanje, hibridizacija. Taj redosled je osnova postupka Herrina i Schmidta. Bojenje pre prenosa ili preskakanje odbojavanja predstavlja drugačiju metodu i zahteva sopstvenu validaciju. Nakon uklanjanja boje, standardno uklanjanje probe i ponovno ispitivanje probom odvijaju se uobičajeno. Za bojenje na nivou ćelije istom porodicom boja i objašnjenje zašto se logika fiksiranog preparata ne može preneti na metode sa živim ćelijama, pogledajte atlas bojenja za mikroskopiju.
Isecanje traka funkcioniše za preparativnu agarozu i za PAGE oligonukleotide locirane metilenskim plavim, pod uslovom da se izbegne varijanta trajne fiksacije. Elektroelucija nakon odbojavanja hemijski je moguća za boju koja se reverzibilno vezuje, ali su kontrolisani podaci o prinosu specifični za metilensko plavo oskudni. Nakon elucije uklonite soli ili precipitirajte materijal.
Problemi koji se ponavljaju
Slabo vidljive trake u gelu obično znače premalu masu za kolorimetrijsko bojenje, naročito kod kratkih jednolančanih molekula ili RNK. Nanesite više materijala, koristite svežu boju, produžite bojenje pre povećanja koncentracije i ranije prekinite odbojavanje. Potpuno plav gel bez kontrasta obično znači prekomerno bojenje ili premalo promena vode. Bleđenje traka u PAGE gelu očekivana je hemijska pojava, ne neuspešno bojenje. Fotografisanje obavite brzo. Neujednačena pozadina membrane ukazuje na nabore, mehuriće, otiske prstiju, neujednačeno mešanje ili mestimičan prenos. Nemojte to tumačiti kao nejednake nanete količine bez kontrole hibridizacijom. Razmazan i slab ribozomski obrazac može ukazivati na degradaciju, ali i na nepotpun prenos, premalo ukupne RNK (tipične staze sadrže nekoliko do više desetina mikrograma) ili prekomerno odbojavanje. Boja pokazuje obilnu ribozomsku RNK. Ne pokazuje određeni transkript. To je zadatak probe.
Bezbednost i rukovanje bez preteranih tvrdnji
Metilenskim plavim je jednostavnije rukovati nego etidijum-bromidom, ali nije bezopasno. Aktuelni bezbednosni list kompanije MilliporeSigma klasifikuje boju u kategoriju 4 akutne oralne toksičnosti, kao štetnu ako se proguta, uz odlaganje putem odobrenog sistema za otpad prema bezbednosnom listu za metilensko plavo kompanije Sigma-Aldrich. Etidijum-bromid nosi stroža upozorenja o genotoksičnosti, uključujući sumnju na dejstvo na germinativne ćelije u bezbednosnom listu za etidijum-bromid kompanije Sigma-Aldrich, a njegovi gelovi i rastvori obično se izdvajaju kao opasan hemijski otpad, kao što je navedeno u vodiču kompanije Thermo Fisher za boje za nukleinske kiseline. Za obe boje poštujte bezbednosne listove i pravila ustanove. Suvu boju čuvajte dobro zatvorenu i na suvom, radni rastvor ponovo koristite samo ako protokol to dopušta, obojene membrane čuvajte suve između listova filter-papira i fotografišite gelove pre nego što se trake razliju difuzijom.
Zapamtite pravilo za laboratorijski rad. Gelovi proveravaju vidljivost pri velikim nanetim količinama pod belom svetlošću. Membrane proveravaju prenos i nanete količine pre nego što proba obavi osetljivi deo detekcije. Jedna boja služi za oba zadatka, uz skromnu osetljivost, reverzibilno vezivanje i strog redosled koraka.