
Článok
Metylénová modrá a zápalová signalizácia: inflamazómy, IL-6 a STAT3
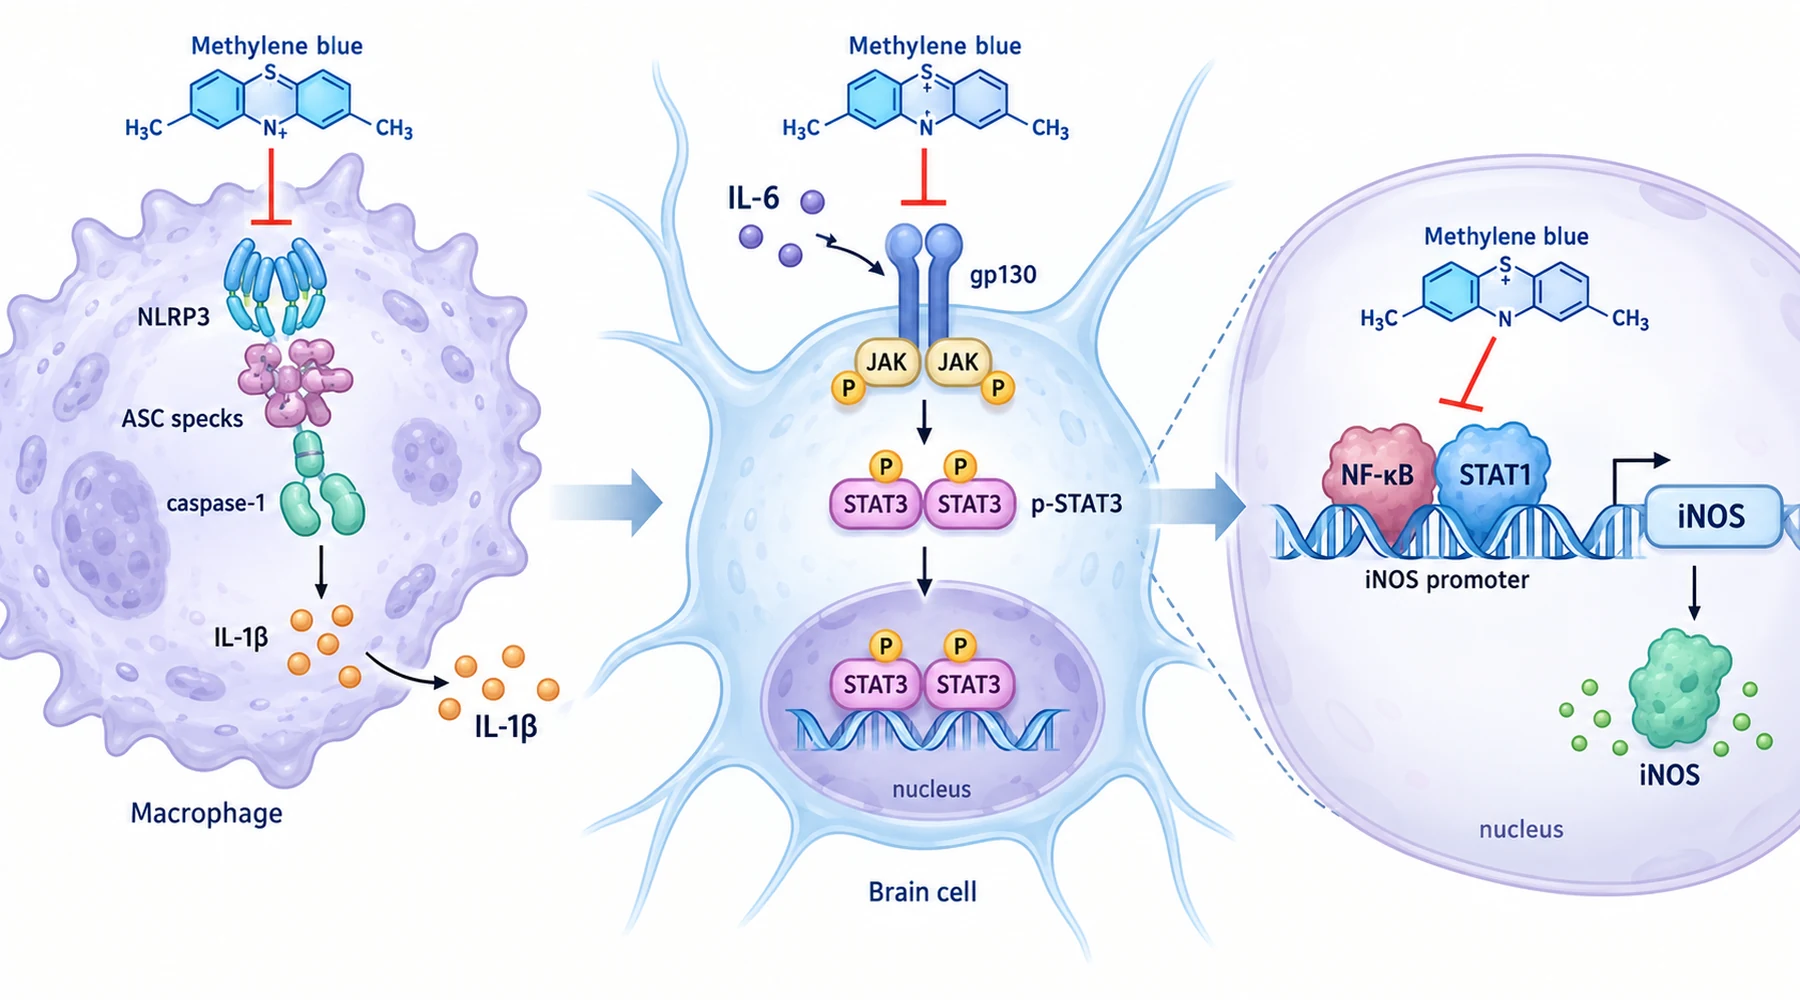
Predstavme si, že tri laboratóriá oznámia, že tá istá modrá zlúčenina pôsobí protizápalovo. Jedno preukáže menej IL-1beta z makrofágov. Druhé preukáže menej enzýmu iNOS v rovnakom type buniek. Tretie preukáže menej IL-6 v krvi a nižšiu aktivitu STAT3 v mozgu. Je lákavé spojiť tieto tri výsledky do jedného tvrdenia. Takéto spojenie však zastiera samotné zistenia.
Každý výsledok patrí k inému konceptu signalizácie s vlastným spúšťačom, krokom zostavovania a meraným ukazovateľom. Metylénová modrá zasahuje do každého z nich na inom mieste. Či niečo z toho zlepšuje zdravotné výsledky, je samostatná otázka, ktorej sa venujeme v našom prehľade metylénovej modrej a zápalu. Táto stránka sa sústreďuje na signálne dráhy.
Dráha 1: zostavovanie inflamazómu a kaspáza-1
Inflamazóm je proteínová platforma, ktorá sa podľa potreby zostavuje vo vnútri myeloidnej bunky. Jeho súčasťami sú senzor, adaptor nazývaný ASC a efektorový enzým nazývaný kaspáza-1. Po zostavení kaspáza-1 štiepi pro-IL-1beta a pro-IL-18 na ich vylučované formy a môže spustiť pyroptózu, zápalovú formu bunkovej smrti. Typ inflamazómu určuje senzor: NLRP3 reaguje na kryštály a toxíny tvoriace póry, ako sú nigericín a ATP, NLRC4 reaguje na bakteriálny flagelín, AIM2 reaguje na cytosolovú dvojvláknovú DNA a nekanonická dráha reaguje na vnútrobunkový lipopolysacharid.
Aktivácia vyžaduje dva signály. Prvým signálom je prípravná aktivácia: ligand receptora podobného Toll receptorom vyvoláva transkripciu NLRP3 a pro-IL-1beta závislú od NF-kB, aby boli potrebné súčasti k dispozícii. Druhým signálom je zostavovanie: druhý spúšťač spôsobí oligomerizáciu ASC do zhlukov, štiepenie kaspázy-1 na jej fragment p20 a uvoľnenie zrelého IL-1beta p17. Mitochondriálne reaktívne formy kyslíka a pohlcovanie kryštálov sú známe faktory, ktoré prispievajú k druhému signálu pri NLRP3.
Štúdia širokej inhibície inflamazómov v makrofágoch z roku 2017 testovala metylénovú modrú pri oboch signáloch. V makrofágoch z myšej kostnej drene pripravených lipopolysacharidom nigericín, ATP aj kryštály urátu sodného vyvolali uvoľnenie IL-1beta a kaspázy-1 spolu s tvorbou zhlukov ASC. Metylénová modrá pri koncentráciách 20 až 200 mikromolárnych znižovala všetky tri ukazovatele v závislosti od dávky bez toho, aby bunky usmrcovala. Flagelín a Salmonella pri NLRC4, dvojvláknová DNA a Listeria pri AIM2 a transfekovaný lipopolysacharid alebo živé E. coli pri nekanonickej dráhe vykazovali rovnaký vzorec. Samotná zlúčenina uvoľňovanie nespúšťala a kontrolné platne nepreukázali antibakteriálny účinok, takže výsledok sa týka odpovede hostiteľa.
V skorších krokoch dráhy sa merali tri zásahy. Mitochondriálny superoxid indukovaný rotenónom sa pri metylénovej modrej znížil a spolu s ním kleslo aj uvoľňovanie IL-1beta vyvolané rotenónom. Pohlcovanie fluorescenčných častíc sa znížilo, čo zodpovedá zníženej fagocytóze pred rozpoznaním kryštálov. Reportérový konštrukt riadený promótorom NLRP3 s dvoma väzbovými miestami pre NF-kB vykazoval pri metylénovej modrej nižšiu aktivitu, zatiaľ čo skrátený promótor bez týchto miest nereagoval. V skúmavke bez buniek metylénová modrá tiež priamo znižovala aktivitu rekombinantnej ľudskej kaspázy-1. Pridanie zlúčeniny iba počas prípravnej aktivácie alebo iba počas aktivácie stále znižovalo uvoľňovanie IL-1beta, IL-18 a kaspázy-1, takže sa na účinku podieľajú oba kroky.
Testy na myšiach zodpovedali tejto selektivite. Smrteľná dávka lipopolysacharidu usmrtila kontrolné zvieratá v priebehu niekoľkých hodín, zatiaľ čo metylénová modrá zlepšila prežívanie; IL-1beta v peritoneálnej tekutine klesol, ale IL-6 v tej istej tekutine nie. V modeli peritonitídy vyvolanej baktériou Listeria klesol peritoneálny IL-1beta, zatiaľ čo celkové počty buniek zostali nezmenené. Ľudské monocyty THP-1 sa pri všetkých štyroch typoch inflamazómov správali podobne ako myšie makrofágy. Výsledok týkajúci sa inflamazómu vysvetľuje dozrievanie IL-1beta a IL-18, nie každého cytokínu. Aj preto tvar imunitných buniek mozgu v experimentoch s mikrogliou a astrocytmi odpovedá na inú otázku než zostavovanie tejto platformy.
Dráha 2: transkripcia iNOS prostredníctvom väzby NF-kB a STAT1
Indukovateľná syntáza oxidu dusnatého, čiže iNOS, je v pokojovom stave prítomná len minimálne a jej transkripcia sa spúšťa podľa potreby. Lipopolysacharid ju vyvoláva najmä prostredníctvom degradácie IkB-alpha, po ktorej nasleduje fosforylácia NF-kB a jeho vstup do jadra. Interferón-gama ju vyvoláva najmä prostredníctvom fosforylácie STAT1 Janusovou kinázou, po ktorej nasleduje vstup STAT1 do jadra. Každý faktor sa potom naviaže na svoje miesto na promótore iNOS. Aktivita enzýmu a indukcia génu predstavujú samostatné regulačné body a liečivo môže pôsobiť na jeden z nich alebo na oba.
Štúdia indukcie iNOS v makrofágoch a u myší s endotoxémiou z roku 2015 lokalizovala účinok na úroveň mRNA. V bunkách RAW 264.7 a primárnych myších makrofágoch metylénová modrá v koncentrácii 1 mikromolárnej, podaná 30 minút pred lipopolysacharidom, interferónom-gama alebo oboma, znižovala množstvo proteínu iNOS aj mRNA v priebehu 8 až 24 hodín, pričom sa znížilo množstvo dusitanov v médiu bez poklesu životaschopnosti. U myší, ktoré dostali 25 mg na kg lipopolysacharidu, jednorazová dávka 5 mg na kg podaná o hodinu skôr znížila množstvo proteínu iNOS a mRNA v pľúcach, pečeni a srdci.
Osobitne dôležité je to, čo sa nezmenilo. Degradácia IkB-alpha, fosforylácia NF-kB, fosforylácia STAT1 aj hromadenie oboch faktorov v jadre zostali zachované. K narušeniu došlo o krok neskôr: jadrové extrakty ukázali slabšiu väzbu NF-kB na jeho sekvenciu DNA po pôsobení lipopolysacharidu a slabšiu väzbu STAT1 po pôsobení interferónu-gama. Chromatínová imunoprecipitácia potvrdila nižšie obsadenie promótora iNOS oboma faktormi vo vnútri buniek. Znížil sa aj tumor nekrotizujúci faktor alfa, ktorého promótor tiež využíva NF-kB. Faktory sa aktivovali a dorazili do jadra, ale na svoju cieľovú DNA sa viazali slabo.
Všimnite si rozdiel oproti dráhe 1. Tu ide o väzbu faktora na DNA, využíva sa STAT1 namiesto STAT3 a merajú sa mRNA, proteín a dusitany namiesto zhlukov ASC a fragmentov kaspázy-1. Naša mapa cieľov metylénovej modrej v bunkových modeloch oddeľuje túto transkripčnú úroveň od priamych meraní enzýmov a mitochondrií.
Dráha 3: sérový IL-6 a aktivácia STAT3 v tkanivách
IL-6 prenáša signál cez rodinu receptorov gp130 do kaskády Janusova kináza – STAT3. Fosforylovaný STAT3 dimerizuje, vstupuje do jadra a spúšťa zápalové programy, zatiaľ čo samotný IL-6 je cieľom NF-kB. Spoločne tak tvoria slučku spätnej väzby, často nazývanú os IL-6 – STAT3. Štandardnými meranými ukazovateľmi sú sérový IL-6 na začiatku dráhy, pomer fosforylovaného STAT3 k celkovému STAT3 a efektorové enzýmy, ako sú iNOS a COX2, v neskorších krokoch dráhy.
Štúdia IL-6 a STAT3 po podaní lipopolysacharidu u myší z roku 2023 merala túto os v rôznych kompartmentoch. Samce myší C57BL/6 dostávali 1 mg na kg lipopolysacharidu denne počas troch dní a 5 alebo 10 mg na kg metylénovej modrej 30 minút po každej dávke. Na tretí deň bol sérový IL-6 v oboch skupinách s metylénovou modrou nižší než pri samotnom lipopolysacharide, zatiaľ čo väčšina ostatných cytokínov v paneli sa pri podávaní nezmenila. Pomery fosforylovaného STAT3 k celkovému STAT3 boli nižšie v mozgovej kôre, hipokampe a koži ucha, spolu s nižšou intenzitou farbenia mikroglie na Iba-1, nižšími hladinami iNOS a COX2 a čiastočne zmierneným úbytkom hmotnosti.
Tu sú namieste dve upozornenia. Nižší sérový IL-6 spolu s nižšou fosforyláciou STAT3 v tkanivách zodpovedá modulácii osi, ale neidentifikuje hlavný bod zásahu. Nižšie množstvo cytokínu na začiatku dráhy, slabšia receptorová signalizácia alebo zmenená aktivita fosfatáz totiž môžu viesť k rovnakému pomeru. A hmotnosť počas troch dní akútnej záťaže je ukazovateľom na úrovni celého zvieraťa, nie skóre príznakov či remisie. Pridáva kontext nad rámec blotu, no nemení výsledok signalizácie na tvrdenie o liečbe. Samostatná chémia mitochondriálnych redoxných procesov prebieha súbežne s týmito cytokínovými dejmi a nemala by sa s nimi spájať.
Porovnanie dráh: miesta zásahu a merané ukazovatele

| Dráha | Spúšťač v týchto štúdiách | Kde pôsobí metylénová modrá | Ukazovateľ, ktorý sa zmenil |
|---|---|---|---|
| Zostavovanie inflamazómu | Nigericín, ATP, kryštály urátu, flagelín, DNA, cytosolový lipopolysacharid | Menej transkripcie pri prípravnej aktivácii, menej mitochondriálnych ROS, menej fagocytózy, menej zostavovania ASC, priama inhibícia kaspázy-1 | Menej kaspázy-1 p20, menej zrelého IL-1beta a IL-18, menej zhlukov ASC |
| Transkripcia iNOS | Lipopolysacharid cez NF-kB; interferón-gama cez STAT1 | Slabšia väzba NF-kB a STAT1 na DNA promótora napriek normálnej aktivácii a vstupu do jadra | Menej mRNA a proteínu iNOS, menej dusitanov |
| Os IL-6 – STAT3 | Trojdňové podávanie lipopolysacharidu myšiam | Nižší sérový IL-6 s nižšou fosforyláciou STAT3 v tkanivách | Nižší pomer pSTAT3 k STAT3 v mozgovej kôre, hipokampe a koži; nižšie hladiny iNOS, COX2, Iba-1 |
Tabuľka bráni trom neopodstatneným prenosom záverov. Výsledok týkajúci sa zhlukov ASC nedokazuje výsledok týkajúci sa STAT3. Výsledok týkajúci sa väzby STAT1 na promótor iNOS nedokazuje výsledok týkajúci sa STAT3, hoci oba proteíny patria do rodiny STAT. Výsledok týkajúci sa sérového IL-6 nedokazuje znížené zostavovanie inflamazómu: v peritoneálnom experimente IL-1beta klesol, zatiaľ čo IL-6 nie. Každý riadok potrebuje vlastný spúšťač a meraný ukazovateľ. Preto je pri čítaní bunkových, zvieracích a klinických štúdií metylénovej modrej nevyhnutné priradiť každé tvrdenie k úrovni, na ktorej sa meralo.
Nič z toho neurčuje dávkovanie, bezpečnosť ani prínos u ľudí. Modely s lipopolysacharidom používajú kontrolované spúšťače na testovanie mechanizmu, nie sú replikami chronického ochorenia. Podávanie spolu so spúšťačom navyše testuje prevenciu vyvolanej zmeny, nie zvrátenie už rozvinutého ochorenia. Tento opis mechanizmov oddeľujte od výsledkov u pacientov a každé zdravotné tvrdenie posudzujte podľa štúdie na pacientoch, ktorá ho podkladá.