
Článok
Metylénová modrá na farbenie DNA a RNA: použitie v géloch a na membránach
Študent vykoná elektroforézu v agarózovom géli, zafarbí ho metylénovou modrou a na mieste, kde očakával výrazný pruh, nevidí nič. Pri susednom pracovisku postdoktorand zafarbí membránu z Northern blotu obsahom tej istej modrej fľaše a za tri minúty získa ostré ribozomálne pruhy. Študent usúdi, že gél zlyhal. Gél však nezlyhal. Išlo o dve odlišné úlohy a to isté farbivo pri nich poskytuje výsledky s odlišnou citlivosťou, odlišným pozadím a odlišnými pravidlami pre ďalšie kroky.
Farbenie DNA a RNA metylénovou modrou má spoločný chemický základ, nie však účel. V géli farbivo ukazuje, koľko nukleovej kyseliny sa nachádza v poréznej matrici. Na membráne ukazuje, či sa prenos podaril a či bolo do dráh nanesené rovnaké množstvo vzorky. Keď je tento rozdiel jasný, protokoly, detekčné limity aj obmedzenia kompatibility začnú dávať zmysel.
Stručná odpoveď
Metylénová modrá je planárne katiónové farbivo, ktoré sa nekovalentne a reverzibilne viaže na nukleové kyseliny kombináciou elektrostatickej príťažlivosti k fosfátovým skupinám, interkalácie medzi páry báz a väzby v malom žliabku. Práve táto reverzibilita je podstatná. Pruhy možno zafarbiť, pozorovať vo viditeľnom svetle, zdokumentovať a potom odfarbiť alebo prečistiť na klonovanie, hybridizáciu či opätovnú hybridizáciu so sondou.
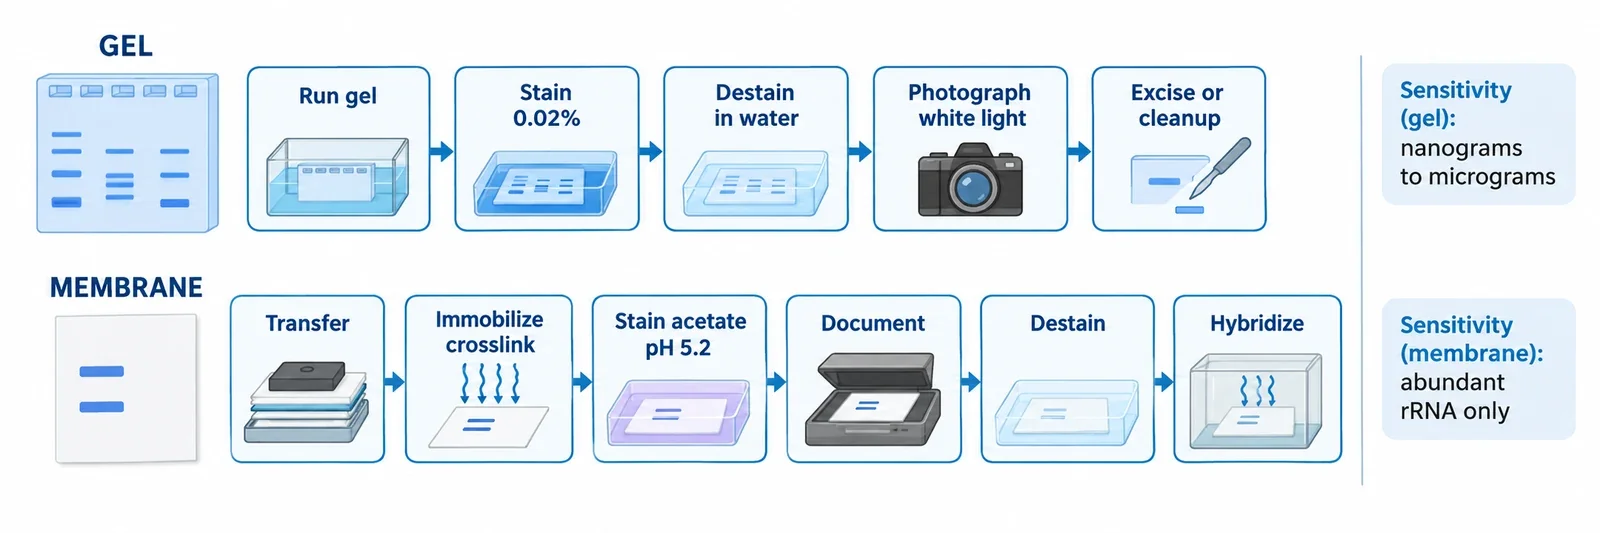
Pri farbení dvojvláknovej DNA metylénovou modrou v agarózovom géli sa pri štandardnom rýchlom postupe používa 0.02 percenta w/v (200 mikrogramov na mL) vo vode, približne 15 minút farbenia a približne 15 minút odfarbovania vodou. Gél sa pozoruje na presvetľovacom paneli s bielym svetlom. Pri membránach sa v klasickom postupe pre Northern blot používa 0.02 až 0.04 percenta farbiva v octane sodnom pri pH okolo 5.2, niekoľkominútové farbenie po prenose a imobilizácii, následné opláchnutie vodou a úplné odfarbenie pred hybridizáciou. Citlivosť je obmedzená: za dobrých podmienok ide o desiatky až stovky nanogramov na pruh v géli a konzervatívne príručky uvádzajú 0.5 až 1 mikrogram. To je o niekoľko rádov viac než pri etídiumbromide a farbivách SYBR. Pri membránach nemá zmysel uvádzať jediný detekčný limit pre jednotlivý transkript, pretože farbivo zobrazuje najmä hojne zastúpenú ribozomálnu RNA a celkový nanesený materiál. Ani v jednom postupe nenahrádzajte farbivo maloobchodným roztokom predávaným ako výživový doplnok. Validované metódy predpokladajú farbivo analytickej čistoty, presne definované pufre a pri práci s RNA manipuláciu bez kontaminácie RNázami.
Ako funguje väzba a kde môže zavádzať
Užitočný model má tri časti. Po prvé, kladne nabitý kruhový systém je priťahovaný záporne nabitou fosfátovou kostrou. Spektroskopické štúdie ukazujú, že pri nízkej koncentrácii solí dominuje tento elektrostatický príspevok, zatiaľ čo modelovanie a molekulová dynamika potvrdzujú interkaláciu a väzbu v malom žliabku ako stabilné spôsoby väzby na dvojvláknovú DNA, ako zhŕňa spektroskopická štúdia väzby metylénovej modrej na DNA. Po druhé, existuje určitá preferencia GC: modelovanie uprednostňuje kroky CpG a GpC a experimenty opisujú prednostnú asociáciu s duplexmi bohatými na GC v práci o preferenciách interkalácie metylénovej modrej, no viažu sa aj duplexy AT. Bežné farbenie nie je sekvenčne špecifické. Po tretie, jednovláknová DNA a RNA sa viažu najmä prostredníctvom elektrostatických interakcií a stohovania s prístupnými bázami a duplexnými oblasťami, preto intenzita farbenia závisí od dĺžky, sekvencie a sekundárnej štruktúry.
Z toho vyplývajú dva dôsledky. Keďže väzba je nekovalentná, farbivo sa vymýva. Pruhy v polyakrylamide rýchlo blednú, ak nie sú zámerne fixované. Osobitný variant s trvalou fixáciou existuje práve preto, že bežné farbenie je dočasné, ako opisujú Soto a Draper pri géloch PAGE. Keďže farbivo je fotosenzibilizátor, dlhé intenzívne osvetľovanie zafarbenej DNA v prítomnosti kyslíka môže oxidovať guanín a napokon spôsobiť jednovláknové zlomy, čo podrobne opisuje práca o oxidácii guanínu fotosenzibilizovanej metylénovou modrou. Krátke pozorovanie v bielom svetle predchádza dobre známemu poškodeniu UV žiarením pri klasických postupoch s etídiumbromidom a pri preparatívnom získavaní DNA je to skutočná výhoda. Viditeľné svetlo je šetrnejšie, nie však neškodné. Ak sa má DNA klonovať, čas osvetlenia obmedzte. Širšie fotochemické súvislosti tohto upozornenia nájdete v článku o dvoch dráhach fotochemických reakcií metylénovej modrej. Redoxný pár a nábojové stavy, ktoré vysvetľujú, prečo sa oxidovaná forma viaže a redukovaná nie, opisuje článok o chemickej štruktúre a vlastnostiach metylénovej modrej.
Prvá úloha: farbenie v géloch
Farbenie gélu odpovedá na jednu otázku: je v tomto pruhu dostatok nukleovej kyseliny, aby ju bolo možné vidieť voľným okom? Najlepšie preskúmaným prípadom je dvojvláknová DNA v agaróze. Pôvodná metóda farbenia gélov metylénovou modrou podľa Floresa a kolegov overila rýchly protokol s 0.02 percenta farbiva v 1-percentnom agarózovom géli a preukázala následné úspešné získanie DNA a jej klonovanie. Rovnaký protokol dodávateľa je uvedený na produktovej stránke metylénovej modrej spoločnosti IBI Scientific, ktorá vedľa seba uvádza postup s 0.04 percenta farbiva pre membrány aj rýchly variant pre gély.
Praktický postup:
- Elektroforézu vykonajte bežným spôsobom. Farbite až po elektroforéze, nie počas nej, pokiaľ nebol prenos alebo rozlíšenie validované pre upravenú metódu.
- Gél ponorte do 0.02-percentného roztoku metylénovej modrej w/v v destilovanej vode a jemne ním pohybujte približne 15 minút.
- Odfarbujte niekoľkonásobnou výmenou vody celkovo približne 15 minút, kým neklesne intenzita pozadia matrice a nevyniknú pruhy.
- Bezodkladne odfotografujte na presvetľovacom paneli s bielym svetlom.
Agaróza a polyakrylamid sa správajú odlišne. Agaróza zadržiava farbivo v matrici, preto je odfarbovanie pomalým krokom. Tenké polyakrylamidové gély sa rýchlo farbia, ale aj rýchlo strácajú farbivo, čo pomáha pri preparatívnom vyrezávaní pruhov, no sťažuje archiváciu záznamov. Syntetické oligonukleotidy v polyakrylamide možno lokalizovať rovnakým postupom s 0.02 percenta farbiva za 20 až 30 minút s opakovaným premývaním vodou podľa zavedených metód PAGE v štýle Current Protocols. Pri preparatívnych oligonukleotidoch boli opísané aj veľmi zriedené varianty s približne 0.0002 percenta farbiva v zriedenom TBE počas niekoľkých hodín, no dôkazová základňa je slabšia.
Rozdiel medzi DNA a RNA je dôležitý. Dvojvláknová DNA vykazuje najvýraznejšiu štruktúrne špecifickú väzbu. RNA a jednovláknová DNA sa farbia tiež, ale slabšie a menej predvídateľne. Pri agarózových géloch na RNA s formaldehydom väčšina laboratórií vynecháva farbenie modrým farbivom priamo v géli a najprv prenesie RNA na membránu, kde ju zafarbí. Tým sa slabý signál v géli nahradí ostrejším signálom na membráne a zároveň sa získa záznam o nanesení vzoriek.
Druhá úloha: farbenie na membránach
Farbenie membrány odpovedá na inú otázku: podaril sa prenos a sú dráhy porovnateľné? Klasickým použitím je reverzibilné farbenie Northern blotu podľa Herrina a Schmidta, pôvodne s 0.04 percenta farbiva v 50 mM octane sodnom pri pH 5.0 počas 2 až 3 minút s opláchnutím vodou. Pred hybridizáciou sa farbivo odstraňuje zriedeným SDS v SSPE.
Široko používaný moderný variant prebieha takto:
- Preneste RNA alebo denaturovanú DNA na nylon alebo nitrocelulózu a potom ju imobilizujte zosieťovaním pomocou UV žiarenia alebo tepelným spracovaním, aby sa vzorka počas farbenia nestratila.
- Voliteľný, ale bežný krok: membránu namočte približne na 15 minút do 5-percentnej kyseliny octovej.
- Farbite 5 až 10 minút v 0.02 až 0.04-percentnom roztoku metylénovej modrej v 0.3 až 0.5 M octane sodnom pri pH okolo 5.2.
- Opláchnite a odfarbujte vo vode 5 až 15 minút, zdokumentujte a pred hybridizáciou odstráňte zvyškové farbivo.
Pri Northern blote prevláda kladne nabitý nylon. Nitrocelulóza tiež funguje pri rovnakom postupe s kyselinou octovou a octanom. Snímka slúži na potvrdenie prenosu, porovnanie pruhov 28S a 18S (alebo 23S a 16S pri bakteriálnej RNA), označenie veľkostných markerov a štandardov a uchovanie orientačného záznamu na normalizáciu celkového množstva RNA. Publikované metódy Northern blotu kvantifikujú zafarbené ribozomálne pruhy na kontrolu naneseného množstva vrátane výskumu v oblasti mliečnej vedy, ktorý použil ribozomálne pruhy zafarbené metylénovou modrou na normalizáciu. Rovnakým spôsobom možno zviditeľniť aj membrány zo Southern blotu, no farbivo je omnoho lepšie zavedené na kontrolu naneseného množstva a prenosu pri Northern blote. DNA pre Southern blot sa navyše pred prenosom denaturuje, preto sa údaje o citlivosti v géloch nedajú preniesť na tento postup.
Detekčné limity a pozadie: kde modrá stráca
Nasledujúce porovnanie je zámerne približné. Výsledky farbenia závisia od percentuálneho zloženia gélu, šírky pruhu, optiky a dôslednosti odfarbovania. Každé číslo vnímajte ako rádový odhad, nie ako špecifikáciu.
| Farbivo a formát | Približná detekcia na pruh | Interpretácia |
|---|---|---|
| Metylénová modrá, dsDNA v agaróze | 40 až 250 ng pri optimalizácii; 0.5 až 1 mikrogram pri konzervatívnom odhade | Postačuje na preparatívne množstvá a výučbové gély. Slabá pri stopových pruhoch. |
| Metylénová modrá, krátka ssDNA alebo RNA či oligonukleotidy v PAGE | Približne 0.1 až 0.5 mikrogramu | Závisí od dĺžky a štruktúry. Univerzálny limit neexistuje. |
| Etídiumbromid, dsDNA v agaróze | Približne 1 až 10 ng | V porovnaní podľa Floresa približne štvornásobne citlivejší než optimalizované farbenie modrou. Vyžaduje UV. |
| SYBR Green I, dsDNA | Približne 60 pg | Vyžaduje fluorescenčné zobrazovanie. |
| SYBR Gold, DNA a RNA | Približne 25 pg | Vo viacerých formátoch viac než desaťnásobne citlivejší než etídiumbromid. |
| Farbenie striebrom, nukleové kyseliny v PAGE | Približne 0.3 až 0.9 ng; v optimalizovanom postupe s modrou a následne striebrom bolo uvedených 100 pg RNA | Veľmi citlivé, ale chemicky náročné a nevhodné na následné získanie materiálu. |
| Toluidínová modrá, RNA a oligonukleotidy v PAGE | Pracovné množstvá v stovkách ng, zdokumentovaných približne 250 ng | Viditeľné svetlo ako pri metylénovej modrej, no bez štandardizovaného limitu porovnateľného so špecifikáciami SYBR. |
Kontrola pozadia rozhoduje, či je obmedzený signál použiteľný. Voľné farbivo má intenzívnu farbu, takže kontrast vzniká odstránením nenaviazaného farbiva bez odstraňovania naviazaného farbiva. Koncentrovanejší roztok zriedkavo zvyšuje citlivosť. Najmä predlžuje čas odfarbovania. Na konkrétnom géli, membráne a s konkrétnym fotoaparátom vyhodnoťte sériu riedení a používajte iba rozsah, v ktorom integrovaná denzita zostáva úmerná vstupnému množstvu. Metylénová modrá umožňuje semikvantitatívnu normalizáciu naneseného množstva. Nejde o kvantitatívnu metódu so širokým dynamickým rozsahom, pretože kapacita membrány, účinnosť prenosu, saturácia a odfarbovanie sa medzi dráhami líšia.
Obmedzenia kompatibility: čo zostáva použiteľné po farbení
Klonovanie po farbení modrou bolo preukázané. Flores a kolegovia vyrezali zafarbené pruhy z agarózy, získali DNA a vykonali ligáciu a transformáciu. Uviedli lepšie výsledky klonovania než po farbení etídiumbromidom s UV žiarením. Pravdepodobnou príčinou je menšie fotopoškodenie, nie prospešný účinok samotného farbiva. Expozíciu bielemu svetlu obmedzte a získanú DNA prečistite bežným postupom extrakcie z gélu.
Pre PCR a sekvenovanie je dôkazov menej. Zvyškové farbivo sa viaže na nukleové kyseliny, preto pred enzymatickými krokmi materiál odfarbite a prečistite. Očakáva sa, že správne purifikovaná DNA z gélu zafarbeného modrou bude použiteľná, no tolerancia priameho prenosu zvyškov farbiva nie je pre rôzne polymerázy a sekvenačné chemické systémy dobre kvantifikovaná. Nepredpokladajte ju automaticky.
Hybridizácia na blote je kompatibilná pri dodržaní presného poradia: prenos, imobilizácia, farbenie, dokumentácia, odfarbovanie, hybridizácia. Toto poradie tvorí základ postupu Herrina a Schmidta. Farbenie pred prenosom alebo vynechanie odfarbovania predstavuje inú metódu, ktorá si vyžaduje vlastnú validáciu. Po odstránení farbiva prebieha štandardné odstránenie sondy a opätovná hybridizácia bežným spôsobom. Farbenie na bunkovej úrovni s rovnakou skupinou farbív a dôvody, prečo sa postupy pre fixované preparáty nedajú preniesť na metódy so živými bunkami, opisuje atlas mikroskopického farbenia.
Vyrezávanie pruhov funguje pri preparatívnej agaróze aj pri oligonukleotidoch v PAGE lokalizovaných modrou, pokiaľ sa nepoužije variant s trvalou fixáciou. Elektroelúcia po odfarbení je pri reverzibilne sa viažucej látke chemicky pravdepodobná, ale kontrolovaných údajov o výťažnosti konkrétne pre metylénovú modrú je málo. Po elúcii materiál odsoľte alebo vyzrážajte.
Opakujúce sa problémy
Slabé pruhy v géli zvyčajne znamenajú príliš malé množstvo materiálu na kolorimetrické farbenie, najmä pri krátkych jednovláknových cieľových molekulách alebo RNA. Naneste viac materiálu, použite čerstvé farbivo, pred zvýšením koncentrácie predĺžte farbenie a odfarbovanie ukončite skôr. Súvislo modrý gél bez kontrastu zvyčajne znamená nadmerné zafarbenie alebo príliš málo výmen vody. Blednutie pruhov v PAGE je očakávaným dôsledkom chemických vlastností, nie zlyhaním farbenia. Fotografujte rýchlo. Nerovnomerné pozadie membrány poukazuje na záhyby, bubliny, odtlačky prstov, nerovnomerný pohyb pri farbení alebo nerovnomerný prenos. Bez hybridizačnej kontroly to nepovažujte za dôkaz nerovnakého naneseného množstva. Rozmazaný a slabý obraz ribozomálnych pruhov môže znamenať degradáciu, ale aj neúplný prenos, príliš málo celkovej RNA (bežné dráhy obsahujú niekoľko až desiatky mikrogramov) alebo nadmerné odfarbovanie. Farbivo zobrazuje hojne zastúpenú ribozomálnu RNA. Nezobrazuje konkrétny transkript. To je úloha sondy.
Bezpečnosť a manipulácia bez prehnaných tvrdení
S metylénovou modrou sa manipuluje jednoduchšie než s etídiumbromidom, no nie je neškodná. Aktuálna karta bezpečnostných údajov spoločnosti MilliporeSigma klasifikuje farbivo ako látku s akútnou orálnou toxicitou kategórie 4, škodlivú po požití, s likvidáciou prostredníctvom schváleného systému nakladania s odpadom podľa karty bezpečnostných údajov metylénovej modrej od Sigma-Aldrich. Etídiumbromid má závažnejšie upozornenia na genotoxicitu vrátane podozrenia na účinky na zárodočné bunky vo svojej karte bezpečnostných údajov od Sigma-Aldrich a jeho gély a roztoky sa bežne zbierajú oddelene ako nebezpečný chemický odpad, ako uvádza príručka farbív na nukleové kyseliny od Thermo Fisher. Pri oboch látkach dodržiavajte kartu bezpečnostných údajov a pravidlá pracoviska. Suché farbivo uchovávajte tesne uzavreté a v suchu, pracovný farbiaci roztok používajte opakovane iba v rozsahu povolenom protokolom, zafarbené membrány skladujte suché medzi listami filtračného papiera a gély fotografujte skôr, než sa pruhy rozptýlia difúziou.
Zapamätajte si jednoduché pravidlo pre prácu v laboratóriu. Gély overujú viditeľnosť pri vysokom nanesenom množstve v bielom svetle. Membrány overujú prenos a nanesené množstvo predtým, než citlivú detekciu zabezpečí sonda. Jedno farbivo slúži na oboje, s obmedzenou citlivosťou, reverzibilnou väzbou a presne stanoveným poradím krokov.