
Статья
Как метиленовый синий проникает в клетки: восстановление, повторное окисление и распределение в мембране
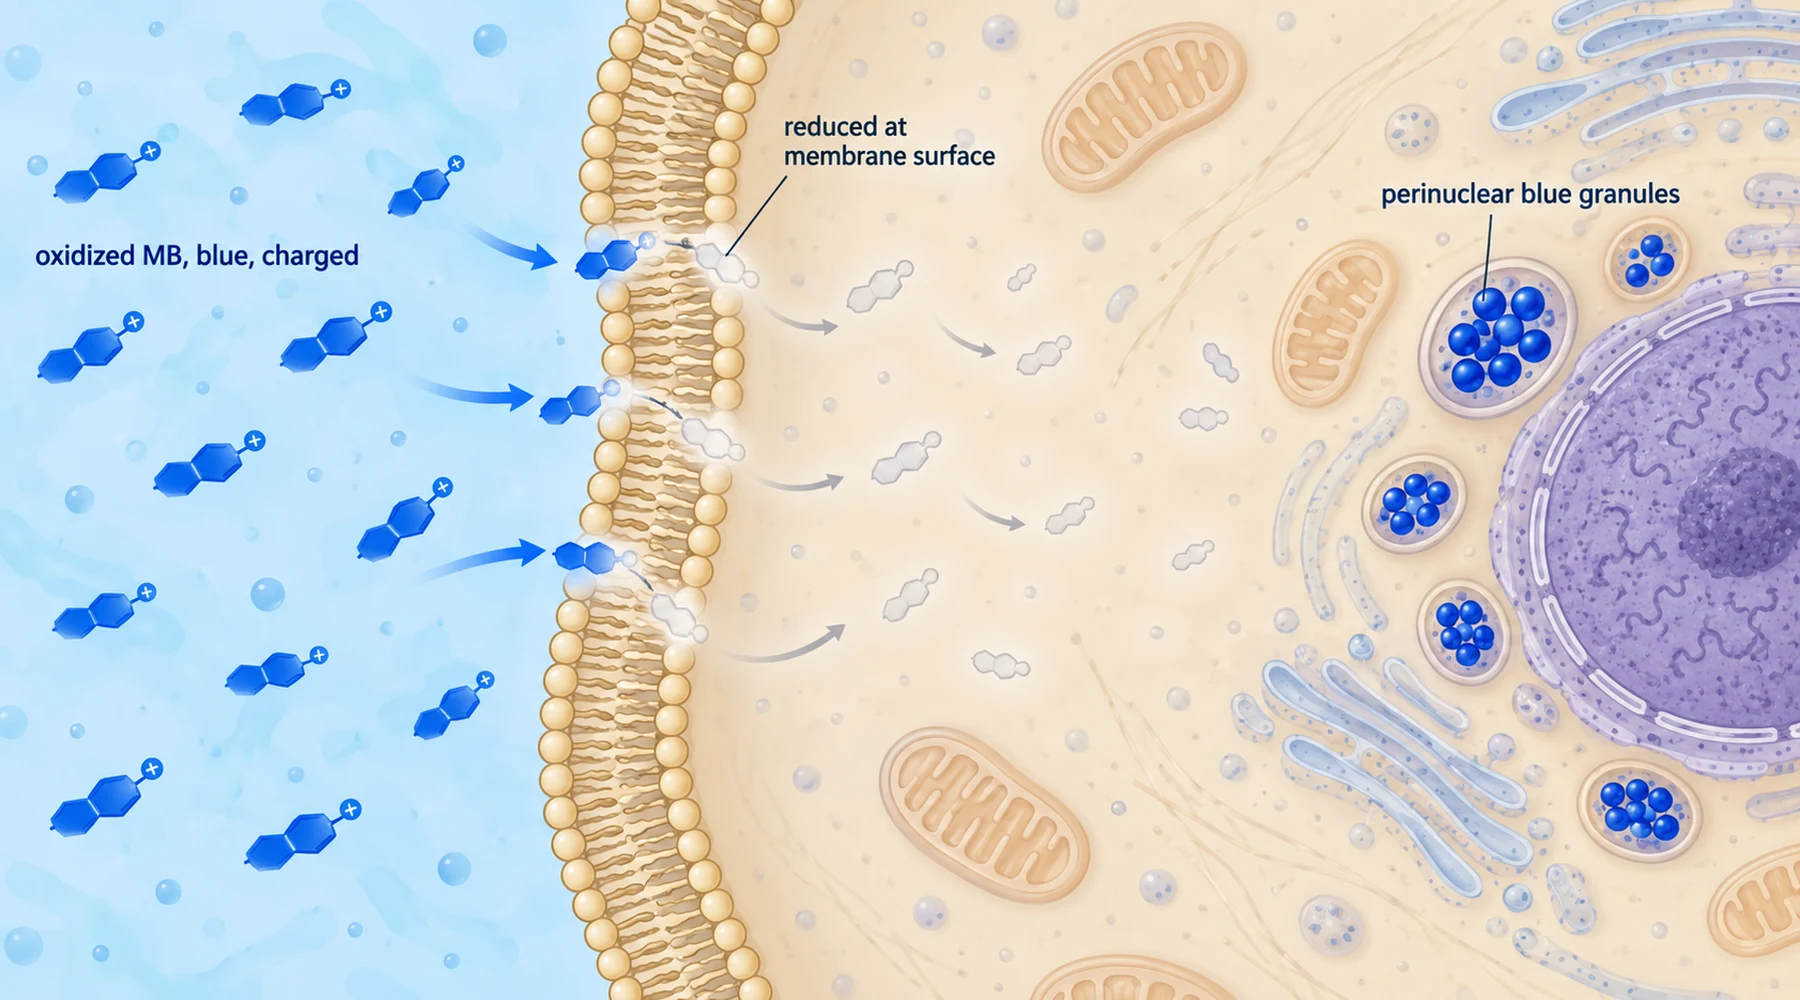
Если наблюдать за чашкой с эндотелиальными клетками, поглощающими метиленовый синий, очевидное объяснение одновременно является неверным. Среда теряет синий цвет, клетки приобретают синие гранулы, поэтому кажется, что краситель прошёл через мембрану в виде синей молекулы. Эксперименты показывают обратное. Синяя форма почти не пересекает мембрану. Через неё проходит бесцветная форма, а видимый внутри синий цвет создаётся уже внутри после проникновения.
Это изменение точки зрения важно, потому что оно определяет, что окрашивание может и не может показать. Синие гранулы отражают окисленный краситель, который был повторно окислен и задержан в органеллах. Они не показывают общее количество красителя в клетке, не отражают восстановленный пул и не измеряют биологический эффект. Чтобы понять почему, нужно пройти три этапа: восстановление на поверхности, диффузия восстановленной формы, повторное окисление и задерживание внутри.
Две формы ведут себя как разные молекулы
Окисленный метиленовый синий представляет собой плоскую положительно заряженную кольцевую систему. Он растворяется в воде, сильно поглощает свет примерно в диапазоне от 600 до 700 нанометров и выглядит синим. Именно заряд является ключевым фактором. Заряженная гидрофильная молекула не может легко пройти через липидную мембрану, поэтому точная формулировка в литературе — относительно непроницаемый для мембраны, а не непроницаемый.
Восстановленный метиленовый синий, называемый лейкометиленовым синим, бесцветен, не имеет заряда и растворяется в жирах. Удаление заряда превращает мембрану из барьера в проход. Восстановленная молекула легко диффундирует внутрь, и после попадания в более окисляющий компартмент она может снова потерять электроны и вернуться к синей, заряженной, задержанной форме. Таким образом, окислительно-восстановительная химия красителя является одновременно и механизмом его транспорта. Изменение количества электронов изменяет проницаемость.
Электроны для первого этапа поступают из самой клетки. Клетки млекопитающих осуществляют перенос электронов через плазматическую мембрану, перемещая восстановительные эквиваленты от внутриклеточных доноров наружу к акцепторам на поверхности. Эта трансмембранная активность является нормальной функцией клетки, встречается в большинстве типов клеток, и поверхностная редуктаза эндотелия, работающая с тиазиновыми красителями, ведёт себя подобно другим ферментам в одном важном отношении: она продолжает работать в присутствии цианида и азида в концентрациях, которые отключают более поздние этапы. Именно это разделение является основой всей истории.
Сначала было распределение, и оно почти объясняло поглощение
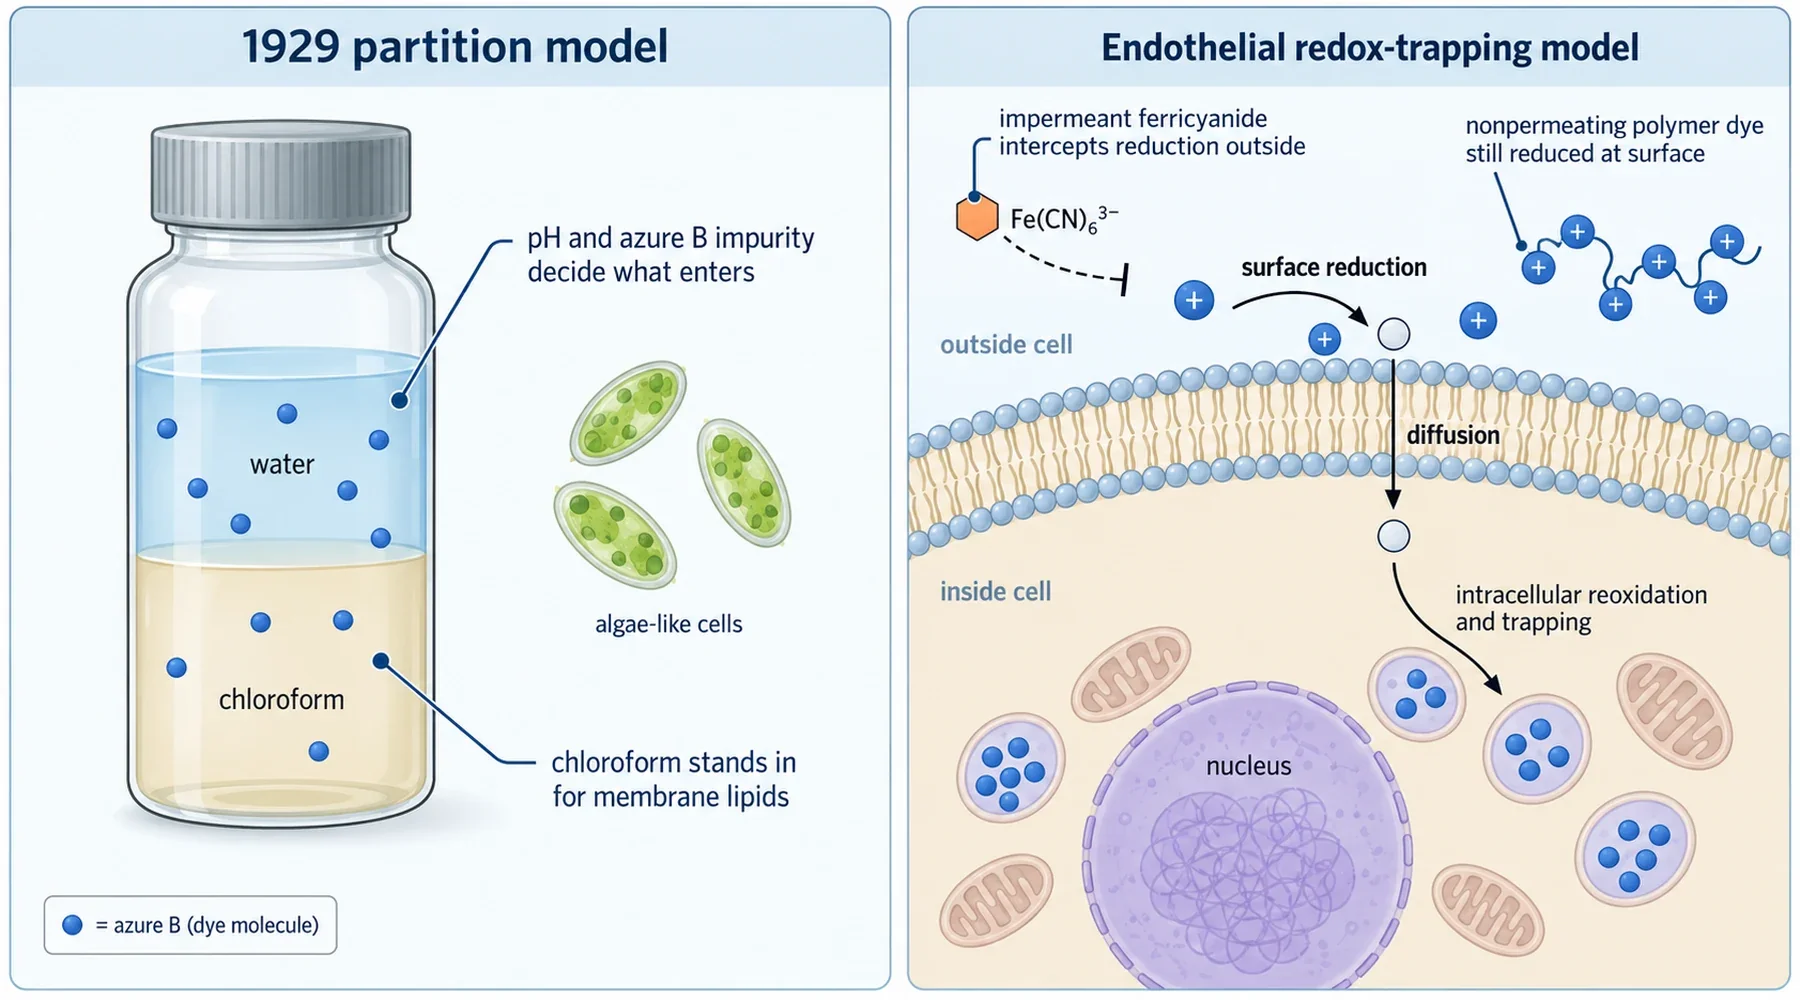
В 1929 году Мэриан Ирвин из Института Рокфеллера задала более простой вопрос. Возможно, проникновение красителя — это всего лишь распределение между водой и жировыми слоями клетки, и слой хлороформа может служить лабораторной моделью этих жировых слоёв. Её спектрофотометрические исследования проникновения встряхивали водные растворы красителей с хлороформом и сравнивали переход в органическую фазу с проникновением в живые клетки водорослей.
Два вывода из этой работы до сих пор заслуживают внимания. Во-первых, коммерческие растворы метиленового синего содержали триметилтионин, теперь называемый azure B, и эта примесь проникала быстрее, чем сам метиленовый синий, особенно при щелочном pH, где преобладает жирорастворимая форма свободного основания. Часть кажущегося проникновения метиленового синего на самом деле была селективным проникновением azure B. Во-вторых, pH определял результат, устанавливая состояние ионизации, а повреждённые клетки пропускали значительно больше красителя, чем неповреждённые. Коэффициенты распределения и зарядовое состояние определяли, что поглощали искусственная система и живая клетка, а сходство между ними поддерживало идею о неводных слоях клеточной границы.
Модель предвосхитила роль липидов и ионизации, но не могла отличить краситель, который распределяется в своей исходной форме, от красителя, который химически преобразуется на поверхности, пересекает мембрану в изменённом виде и превращается обратно внутри. Для этого потребовался другой эксперимент, и он появился семьдесят лет спустя в эндотелии лёгких.
Восстановление снаружи, задерживание внутри
Меркер и коллеги работали с культивируемыми эндотелиальными клетками лёгочной артерии крупного рогатого скота и предложили трёхэтапную последовательность: окисленный краситель восстанавливается на поверхности клетки до своей бесцветной липофильной формы, восстановленная форма диффундирует внутрь, а внутриклеточное повторное окисление восстанавливает непроницаемую для мембраны окисленную форму, которая накапливается. Затем их исследование поглощения тиазиновых красителей эндотелием проверило эту последовательность, пытаясь нарушить её отдельные этапы.
Первым инструментом был феррицианид — акцептор электронов, который не может проникнуть внутрь клетки. Когда поверхностные ферменты восстанавливают синий краситель до бесцветной формы вне клетки, феррицианид может забрать эти электроны обратно, восстанавливая синий краситель в среде до того, как он пересечёт мембрану. Пока феррицианид присутствовал в избытке (10 микромоляр красителя против 50–500 микромоляр феррицианида), поглощение красителя почти прекращалось, и только после расходования феррицианида поглощение возобновлялось с нормальной скоростью. Кинетика показывала ту же картину вторым способом. Феррицианид исчезал примерно с постоянной скоростью, что соответствовало постоянному потоку поверхностного восстановления, питающему перерабатываемый медиатор, тогда как внеклеточный краситель исчезал экспоненциально по мере уменьшения его пула. Постоянный поток плюс уменьшающийся пул означает, что сигнал феррицианида отражает непрерывное восстановление, а не молекулы красителя, покидающие раствор.
Второй инструмент полностью устранял этап проникновения. Группа присоединила толуидиновый синий O, близкий родственник тиазина, к большой полиакриламидной цепи, слишком крупной для проникновения в клетку в любой форме окисления. Клетки всё равно восстанавливали связанный краситель. Следовательно, восстановление не требует доступа внутрь клетки. Механизм находится на поверхности или электрически связан с ней.
Затем последовало разделение, давшее название статье. Цианид и азид в концентрации 2 миллимоляр сильно подавляли накопление красителя, и под микроскопом тёмно-синие и фиолетовые включения, которые обычно окружали ядро, почти исчезали. Однако ни один из ингибиторов не замедлял внеклеточное восстановление: цикл феррицианида продолжался без изменений, а непроникающий полимерный краситель всё ещё восстанавливался. Блок находился ниже по пути. Цианид и азид останавливали внутриклеточное повторное окисление и связывание, а не поверхностное восстановление. Контроль жизнеспособности подтверждал это толкование, поскольку клетки сохраняли свой цитозольный маркерный фермент лактатдегидрогеназу после этих обработок, поэтому потеря поглощения была не просто результатом токсического воздействия или разрушения мембраны.
Одно предостережение из этой работы остаётся актуальным. Синие включения располагались вокруг, но не внутри ядра, что соответствует окислению внутри субклеточных органелл, однако исследование не определило, какие именно это органеллы. Подобные структуры в других типах клеток называли лизосомальными на основании ограниченных данных. Считайте задерживание установленным фактом, а локализацию — предварительной. Читатели, изучающие дальнейшее движение электронов, могут продолжить с разделом о митохондриальном переносе электронов и работе с окислительно-восстановительными процессами и более широким обзором всасывания и распределения по пути введения.
Окрашивание не является показателем воздействия
Третье исследование показывает, что происходит, когда эта логика поглощения встречается с биологическим показателем. Скотт и коллеги обнаружили, что метил-бета-циклодекстрин, кольцеобразный сахарный тор, напрямую связывает метиленовый синий, с константой ассоциации около 310 на моль для комплекса включения по сравнению примерно с 5846 на моль для димеризации красителя. В фибробластах L929 это связывание блокировало как окрашивание клеток, так и стимуляцию поглощения глюкозы: предварительная инкубация с циклодекстрином предотвращала синее окрашивание, а его добавление после этого ускоряло обесцвечивание. По мере исчезновения оптического синего сигнала из клеток активированный транспорт глюкозы снижался практически параллельно.
Авторы интерпретировали эту корреляцию как подтверждение прямого взаимодействия между красителем и белком в пути активации транспортёра глюкозы, а не длительного механизма окислительного стресса. Этот вывод является обоснованным, но имеет ограничения. Эксперимент не определяет белок, не показывает связывание непосредственно с транспортёром, и корреляция между обесцвечиванием и потерей эффекта не исключает все пути, опосредованные окислительно-восстановительными процессами.
Основной вывод касается измерений. Оптическое окрашивание отражает видимый окисленный краситель, связанный с клеткой. Оно полностью не учитывает бесцветный восстановленный пул, поэтому бледная клетка всё ещё может содержать эквиваленты красителя, а интенсивно окрашенная клетка показывает задержанный окисленный краситель, а не общее воздействие на ткань или величину эффекта. То же предостережение распространяется шире: сравнение окрашивания между типами клеток или использование тёмного среза ткани как доказательства более высокого воздействия повторяет исходную ошибку чашки. Поглощение представляет собой цикл восстановления, диффузии и повторного окисления, и любой отдельный снимок синей формы показывает только одну его часть. Практические последствия для лабораторного окрашивания и работы с образцами и для интерпретации утверждений о дозе и воздействии следуют непосредственно из этого.