
Articol
Albastrul de metilen și NAD+/NADH: interpretarea echilibrului redox celular
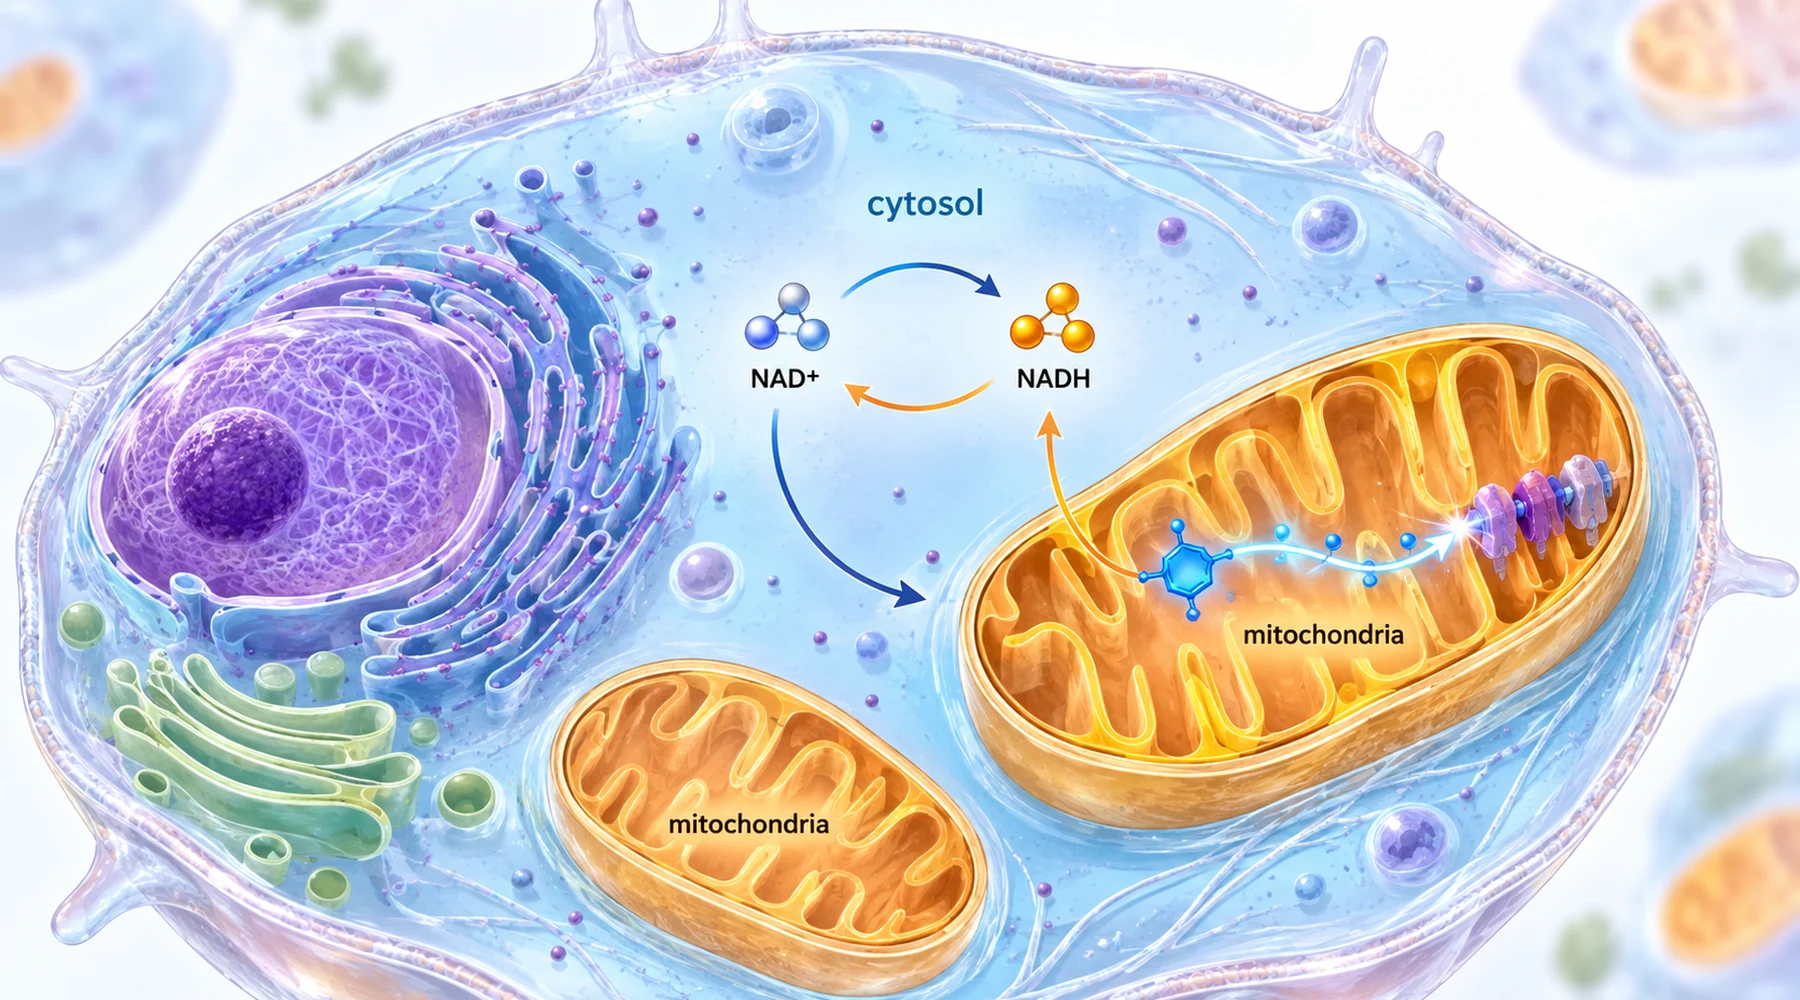
Relatările despre albastrul de metilen și NAD+ tind să contopească trei afirmații diferite într-una singură. Prima este că raportul dintre NAD+ și NADH s-a deplasat spre starea oxidată. A doua este că celula conține mai mult NAD în total. A treia este că producția de energie s-a refăcut. Acestea par să spună aceeași poveste despre restabilirea metabolismului. În experimente, ele se separă frecvent, iar rezultatele interesante sunt tocmai cazurile în care nu coincid.
Confuzia este de înțeles, deoarece cele trei mărimi folosesc același vocabular. NAD+ acceptă electroni în reacțiile metabolice și devine NADH, apoi mitocondriile oxidează NADH înapoi la NAD+ la nivelul complexului I și folosesc energia eliberată pentru sinteza ATP. O prezentare mai detaliată a acestui traseu al electronilor se găsește în explicația transportului mitocondrial de electroni, iar partea energetică este discutată în ATP și metabolismul energetic. Însă un raport și o rezervă sunt lucruri diferite. Raportul arată cum este distribuită flota existentă de molecule transportoare între stările încărcate și cele neîncărcate. Rezerva arată câte molecule transportoare există în total. Un raport mai bun cu aceeași rezervă înseamnă redistribuire, nu producție.
Două compartimente, două sisteme indicatoare
Există o a doua distincție care duce la interpretări greșite mai puțin evidente. Rezervele citosolice și mitocondriale de NAD sunt în mare parte separate de membrana mitocondrială internă, astfel încât fiecare compartiment poate avea, independent, o stare relativ oxidată sau redusă. O singură valoare pentru întreaga celulă ascunde acest lucru.

Cercetările pe ficat au făcut măsurabilă această separare între compartimente. Echilibrul dintre lactat și piruvat indică raportul citosolic dintre NAD+ și NADH, deoarece lactat-dehidrogenaza leagă aceste două perechi. Echilibrul dintre 3-hidroxibutirat și acetoacetat indică raportul mitocondrial printr-o cuplare similară. Când ambele perechi sunt măsurate în țesut congelat rapid prin clampare, ca în studiul administrării cronice de etanol în alimentația șobolanilor, rezultatul constă în două valori redox din același ficat, iar un compus poate modifica una mai mult decât pe cealaltă.
Albastrul de metilen acționează în acest sistem ca transportor de electroni, nu ca sursă de energie. Acceptă electroni de la NADH în apropierea complexului I, fiind redus, apoi îi transferă mai departe către transportori precum citocromul c. Efectul net este oxidarea NADH fără parcurgerea întregului traseu normal. Acest mecanism explică atât interesul pe care îl prezintă, cât și limita sa: poate atenua un blocaj reductiv, dar nu reconstruiește un complex deteriorat și nu sintetizează molecule noi de NAD.
Cinci studii, un tipar de rezultate divergente
Tabelul de mai jos compară cele cinci studii după țesut, parametrul redox, parametrul energetic și ceea ce s-a refăcut efectiv. Citiți ultimele două coloane împreună. Această asociere este esența articolului.
| Țesut și factor nociv | Parametru redox cu albastru de metilen | Parametru energetic și de semnalizare | Rezultat funcțional |
|---|---|---|---|
| Ficat de șobolan, dietă cu etanol administrată cronic | Rapoarte NAD+/NADH citosolice și mitocondriale în mare parte restabilite; glicerol 3-fosfat normalizat | ATP nemodificat de etanol sau tratament; ușoară scădere a ATP cu colorantul la momentul tardiv de evaluare | Infiltrare grasă nemodificată; lipidele și triacilglicerolul au rămas crescute |
| Hepatocite și ficat de șoarece cu dietă bogată în grăsimi | Raport NAD+/NADH și conținut de NAD+ crescute în celule și ficat | SIRT1 crescută, PGC-1alpha deacetilat, ADN mitocondrial și consum de oxigen crescute, activare AMPK dependentă de SIRT1 | Acumulare hepatică de grăsime și steatohepatită reduse |
| Inimă de șobolan diabetic | Raport NADH/NAD+ redus în timpul oxidării substraturilor în mitocondrii izolate | Activitate SIRT3 crescută; acetilarea lizinei redusă în 83 de situsuri de pe 34 de proteine | Volume cardiace și fracție de ejecție îmbunătățite; defectul complexului I în sine nu a fost corectat |
| Retină de șoarece cu deficit de AIF și celule fotoreceptoare tratate cu rotenonă | Raport NADH/NAD+ normalizat în celule; stres oxidativ redus | Deficit de ATP necorectat în celule; căi de răspuns la stresul mitocondrial atenuate | Grosime retiniană și markeri ai fotoreceptorilor păstrați; supraviețuire celulară îmbunătățită |
| Tendon ahilean uman și de șobolan, leziuni induse de oxidanți și colagenază | Echilibrul NAD+ și parametrii chimici ai NAD total readuși spre valorile martorului | ATP crescut și ROS reduse acolo unde s-a observat recuperare | Markeri ai matricei îmbunătățiți, cu excepția blocării directe a complexului I, când parametrii chimici s-au modificat, dar țesutul nu s-a refăcut |
Când corectarea redox nu a refăcut țesutul
Cel mai vechi studiu din acest grup rămâne cel mai clar avertisment. Șobolanii care primeau etanol reprezentând 36 la sută din aportul energetic au dezvoltat rapoarte NAD+/NADH citosolice și mitocondriale mai mici, măsurate prin ambele perechi indicatoare, iar albastrul de metilen administrat în dietă, la aproximativ 42 mg per kg pe zi, a prevenit în mare parte aceste modificări. Totuși, triacilglicerolul hepatic aproape s-a triplat până la momentul tardiv de evaluare, indiferent dacă era prezent sau nu colorantul, iar examenul histologic a arătat aceeași acumulare de grăsime centrilobulară. Autorii au formulat direct concluzia incomodă: modificarea redox care însoțește oxidarea etanolului nu este, în sine, cauza ficatului gras. Un cititor care echivalează un raport corectat cu un organ refăcut ar prezenta greșit această lucrare. Protocolul complet, inclusiv loturile martor cu aport alimentar egalizat și recoltarea probelor la miezul nopții, la vârful intoxicației, este descris în studiul hepatic cu etanol.
În contrast, în cercetarea hepatică privind dieta bogată în grăsimi, același tip de modificare a raportului a coincis cu o îmbunătățire reală a țesutului. În hepatocite și în ficatul șoarecilor după administrare orală, albastrul de metilen a crescut raportul NAD+/NADH, iar lanțul de semnalizare a fost urmărit pas cu pas: SIRT1 crescută, PGC-1alpha deacetilat, markeri ai biogenezei mitocondriale și consum de oxigen mai mari, apoi implicarea AMPK, CPT-1 și PPARalpha, demonstrându-se că activarea AMPK depinde de SIRT1. Șoarecii cu dietă bogată în grăsimi au acumulat mai puțină grăsime hepatică. Explicația propusă este că modificarea redox a deblocat aici o axă de reglare genică, în loc să reechilibreze doar parametrii chimici, după cum se detaliază în studiul hepatic privind SIRT1 și AMPK. Aceeași familie de măsurători ca în studiul cu etanol, dar un verdict opus la nivelul țesutului. Diferența ține de calea activată în aval, nu doar de raport.
Inima și retina: sirtuine, acetilare și recuperare fără refacerea ATP
Studiul pe inima diabetică leagă modificarea redox de acetilarea proteinelor printr-o altă sirtuină. Mitocondriile din contextul diabetului prezintă acetilare excesivă a lizinei pe enzimele metabolice, asociată cu inflexibilitatea utilizării substraturilor. Albastrul de metilen la 10 mg per kg pe zi a facilitat oxidarea NADH într-un mod dependent de doză, în intervalul de 6 până la 18 micromolar în mitocondrii izolate, a crescut activitatea SIRT3 și a redus acetilarea pe scară largă, în timp ce volumele cardiace și fracția de ejecție s-au îmbunătățit, deși afectarea de bază a complexului I a persistat. Lucrarea explică explicit comportamentul în funcție de doză descris în alte surse din literatură: concentrațiile mici favorizează rolul de transportor reductiv, în timp ce concentrațiile mai mari pot redirecționa electronii în mod neproductiv, astfel încât efectul este hormetic, nu monoton. Analiza proteomică și măsurătorile cardiace sunt prezentate în studiul acetilării în inima diabetică. Cadrul conceptual privind stresul oxidativ care stă la baza acestei explicații se regăsește în stresul oxidativ și controlul ROS.
Studiul retinei duce această separare cel mai departe. La șoarecii Harlequin cu deficit de AIF, un defect de asamblare a complexului I, albastrul de metilen a păstrat grosimea retinei, segmentele externe ale fotoreceptorilor și markerii pentru celulele cu bastonașe, cu conuri, Müller și ganglionare. În celulele fotoreceptoare 661W tratate cu rotenonă, colorantul a normalizat raportul dintre NADH și NAD+ și a redus speciile reactive de oxigen la 15 micromolar, însă ATP a rămas scăzut la concentrațiile care favorizau supraviețuirea. Structura și supraviețuirea au fost păstrate fără refacerea energetică, în paralel cu atenuarea răspunsului mitocondrial la proteine nepliate și a mitofagiei. Acest rezultat prezintă colorantul mai degrabă ca pe un factor care atenuează stresul reductiv și oxidativ decât ca pe unul care restabilește energia, după cum este documentat în studiul protecției fotoreceptorilor retinieni.
Tendonul: experimentul în care parametrii chimici s-au modificat, dar țesutul nu s-a refăcut
Cercetarea tendonului ahilean cuprinde ambele tipare într-o singură lucrare și merită citită cu atenție. Analiza completă a fiecărei ramuri experimentale se găsește în analiza din 2026 a tendinopatiei ahileene. Tendonul afectat prezenta epuizarea NAD+, un raport scăzut între NAD+ și NADH, markeri reduși ai complexului I, ATP scăzut și colagen dezorganizat. Albastrul de metilen a restabilit parametrii chimici ai NAD și ATP și a îmbunătățit markerii matricei în preparate de șobolan, explante umane și preparate celulare.
Au urmat apoi cele două perturbări. Când complexul I a fost blocat cu rotenonă, colorantul a protejat în continuare parametrii chimici ai NAD+ și valorile măsurate legate de ATP, dar nu a reușit să reducă încărcătura oxidantă, să restabilească echilibrul colagenului sau să păstreze viabilitatea. În condițiile reducerii expresiei AIF, când aparatul complexului I era insuficient format, nu blocat farmacologic, colorantul a produs o recuperare amplă: echilibrul NAD, stresul oxidativ, potențialul membranar și markerii colagenului. Lecția este precisă. O valoare mai bună a NAD poate fi menținută chiar și atunci când complexul I este blocat, dar recuperarea țesutului în acest preparat depindea de o cale funcțională a complexului I. Modificarea raportului este necesară în acest context, fără a fi suficientă, un aspect dezvoltat în studiul redox al tendonului.
Cum să interpretați următoarea afirmație despre redox
Trei verificări previn majoritatea interpretărilor greșite. Mai întâi, întrebați cărui compartiment îi aparține raportul și prin ce pereche indicatoare a fost obținut. Un rezultat citosolic privind raportul dintre lactat și piruvat nu spune nimic direct despre matricea mitocondrială. În al doilea rând, verificați dacă lucrarea raportează o modificare a raportului, o rezervă totală mai mare sau refacerea ATP și tratați fiecare aspect ca pe o constatare separată. În al treilea rând, întrebați ce a rămas afectat: acumularea de grăsime necorectată, un defect necorectat al complexului I sau un deficit necorectat de ATP apar toate în aceste lucrări alături de îmbunătățiri redox reale.
Nimic din toate acestea nu reprezintă un ghid de dozare. Toate cele cinci studii sunt cercetări pe animale, celule sau preparate tisulare, cu factori nocivi controlați: diete lichide cu etanol, diabet indus prin streptozotocină, defecte genetice ale complexului I, rotenonă, peroxid, colagenază. Concentrațiile din vasele de cultură nu se convertesc în doze orale prin simpla examinare, iar niciun om din aceste lucrări nu a luat albastru de metilen pentru echilibrul redox. Ideea centrală pentru farmacologia redox și dozare este mai restrânsă și mai utilă decât orice protocol: albastrul de metilen oxidează NADH și modifică raportul măsurat, sirtuinele transpun această modificare în deacetilare și reprogramare metabolică în unele țesuturi, iar răspunsul țesutului depinde de mecanisme pe care colorantul nu le poate înlocui.