
Artykuł
Błękit metylenowy jako antyoksydant i prooksydant: co zmienia wynik?
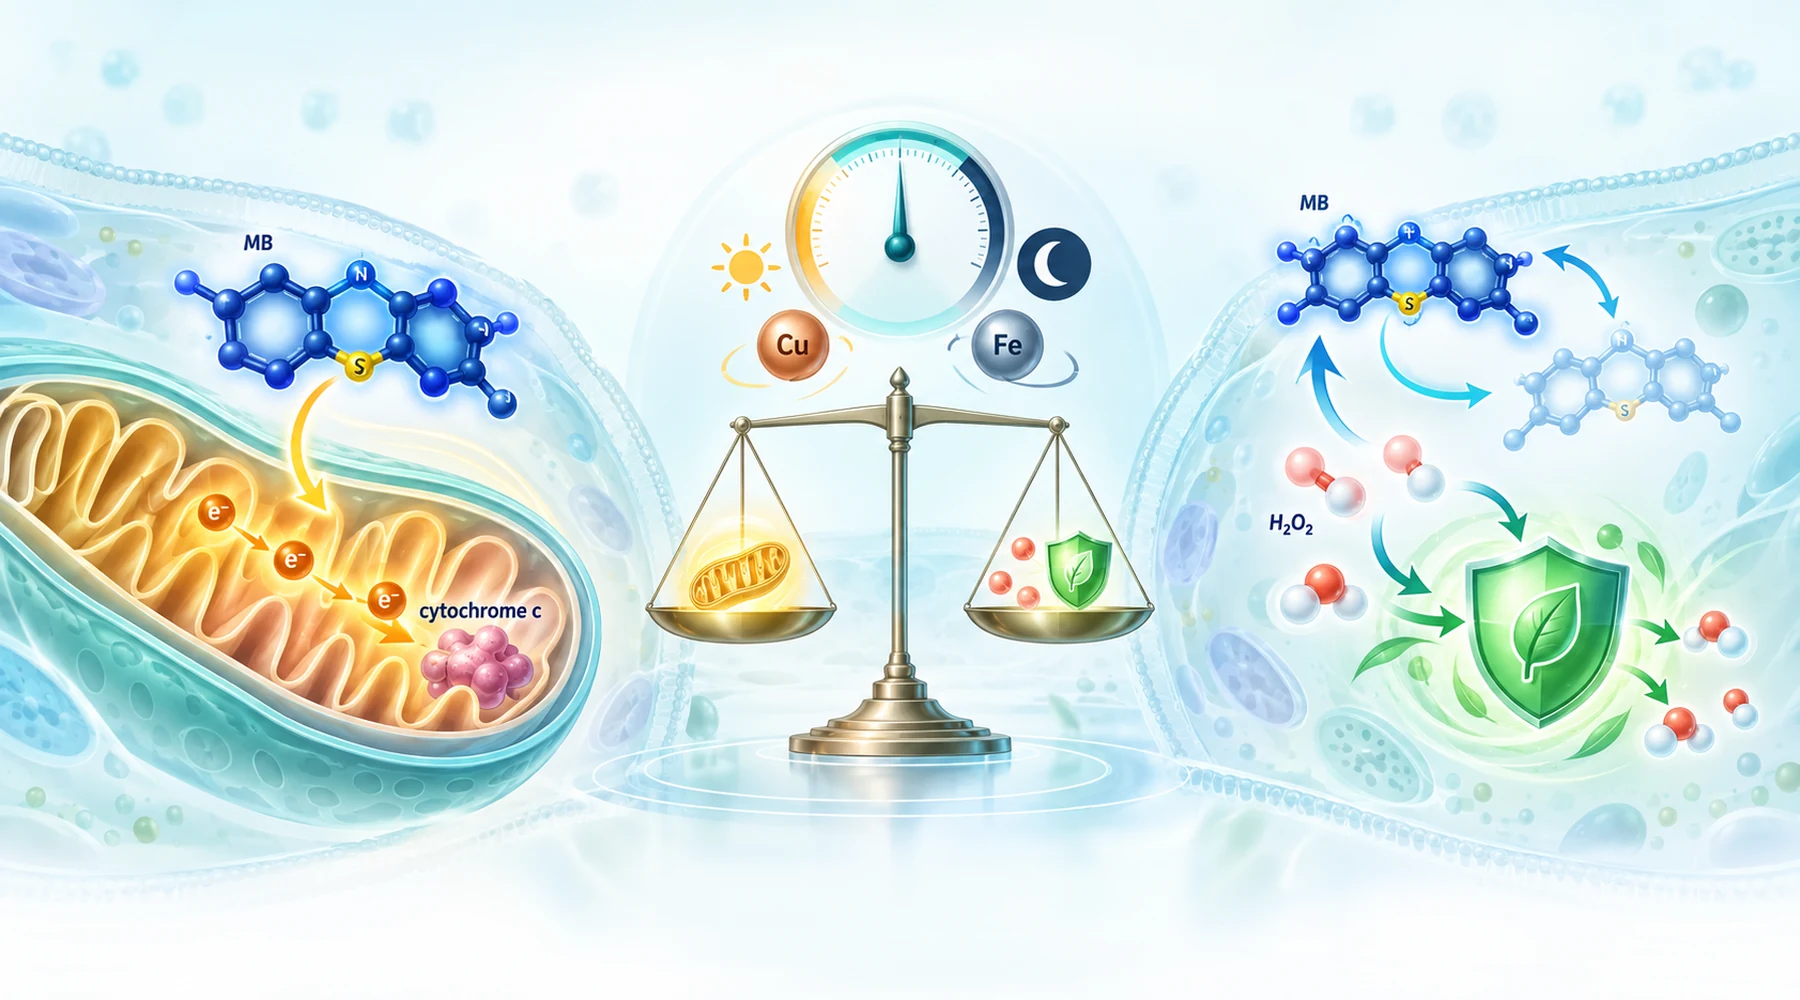
Załóżmy, że dwa laboratoria badają ten sam niebieski barwnik i uzyskują przeciwne wyniki. W pierwszym izolowane mitochondria mózgu sprawniej prowadzą oddychanie i wytwarzają więcej ATP. W drugim taki sam preparat uwalnia znacznie więcej nadtlenku wodoru. Oba doniesienia są poprawne. Opisują ten sam cykl widziany z dwóch stron, a nieporozumienie zaczyna się wtedy, gdy czytelnicy uznają jedną z nich za całą historię.
Błędem jest pytanie, jaka etykieta pasuje do tej cząsteczki. Błękit metylenowy jest przekaźnikiem elektronów, co w szerszym kontekście pokazuje mapa jego miejsc działania w biologii komórki. Utleniony barwnik przyjmuje elektrony i staje się bezbarwnym leucoMB. LeucoMB przekazuje te elektrony dalej i ponownie staje się niebieski. To, co obserwujemy, zależy od tego, kto oddaje elektrony, kto je odbiera i czy układ potrafi usuwać powstający po drodze nadtlenek wodoru. Warto pytać nie o to, czy barwnik jest antyoksydantem, lecz o to, co dane warunki pozwalają temu przekaźnikowi zrobić.
Cykl, który odpowiada za oba oblicza
W ciemności podstawowa pętla jest krótka. NADH, NADPH lub przenośniki w łańcuchu oddechowym redukują barwnik. Zredukowany barwnik ma następnie kilka konkurencyjnych dróg. Może przekazać elektrony cytochromowi c i wspierać przepływ z pominięciem uszkodzonego kompleksu, dlatego przy blokadzie kompleksu I lub III oddychanie i potencjał błonowy częściowo się przywracają. Może też przekazać elektrony bezpośrednio tlenowi, co odtwarza niebieską postać i wytwarza nadtlenek wodoru. Ponieważ barwnik się regeneruje, jego niewielka ilość może wielokrotnie powtarzać tę pętlę, stale zużywając równoważniki redukcyjne i stale wytwarzając nadtlenek.
Dwie kolejne drogi całkowicie zmieniają chemię tego procesu. Wolna miedź lub żelazo przekształcają ten zdolny do dyfuzji nadtlenek w znacznie bardziej niszczące lokalne utleniacze poprzez reakcje typu Fentona. Czerwone światło otwiera odrębną drogę fotochemiczną, w której wzbudzony barwnik przekazuje energię tlenowi i wytwarza tlen singletowy, formę opisaną szczegółowo w wyjaśnieniu fotochemii typu I i typu II. Cykl redoks w ciemności, uszkodzenia nasilane przez metale i uszkodzenia fotodynamiczne to trzy różne mechanizmy, które po prostu mają tę samą cząsteczkę wyjściową.
Macierz warunków i wyników
Poniższą tabelę warto zachować. Każdy wiersz przedstawia jedną zmienną, kierunek jej wpływu i eksperyment, na którym opiera się wniosek. Wynik korzystny oznacza ochronę lub poprawę mierzonego parametru. Niekorzystny oznacza więcej utleniaczy, większe wyczerpanie zasobów lub więcej uszkodzeń.
| Warunek | Kierunek wyniku | Co wykazał eksperyment |
|---|---|---|
| Niskie stężenie, 0.1 do 1 uM, izolowane mitochondria | Korzystna bioenergetyka i więcej nadtlenku | 0.1 uM poprawiało zużycie tlenu w mitochondriach serca szczurów zdrowych i z cukrzycą; 100 nM do 1 uM częściowo przywracało ATP, potencjał błonowy i wychwyt wapnia w mitochondriach mózgu z zablokowanym łańcuchem oddechowym, podczas gdy uwalnianie nadtlenku rosło we wszystkich warunkach |
| Wyższe stężenie, powyżej 5 uM, komórki pozbawione glukozy | Niekorzystny sygnał utleniaczy | Przy braku glukozy komórki śródbłonka utleniały nieswoistą sondę ROS i traciły zredukowany glutation powyżej 5 uM; dodanie glukozy zapobiegało obu zjawiskom |
| Substraty kompleksu I (glutaminian i jabłczan) | Więcej nadtlenku | Zarówno badania mitochondriów mózgu, jak i serca wykazały zwiększone uwalnianie nadtlenku przy substratach związanych z NADH |
| Bursztynian i rotenon, mitochondria serca, 0.1 uM | Mniej nadtlenku w tym protokole | Jedyny w tym zestawieniu jednoznacznie antyoksydacyjny wynik pomiaru nadtlenku; warto zauważyć, że protokół obejmował rotenon i inną tkankę, więc sam substrat nie wyjaśnia wyniku |
| Czerwone światło, 20 uM i 630 nm | Niekorzystne uszkodzenia DNA | Brak istotnych uszkodzeń mitochondrialnego DNA w ciemności przy 20 uM; to samo stężenie w połączeniu z czerwonym światłem uszkadzało każdy badany fragment |
| Bardzo wysokie stężenie w ciemności, 100 uM | Niekorzystne selektywne uszkodzenia DNA | Selektywne uszkodzenia mitochondrialnego DNA w sekwencjach bogatych w puryny, jakościowa zmiana względem sygnału nadtlenku przy stężeniach nanomolowych |
| Miedź lub żelazo i NADH, DNA w układzie bezkomórkowym | Niekorzystne uszkodzenia oksydacyjne | Miedź kierowała uszkodzenia do sekwencji p53 szczególnie podatnej na mutacje; żelazo z EDTA powodowało rozległe uszkodzenia; katalaza i chelatory metali blokowały odpowiednie szlaki; ilość utlenionej guaniny wzrastała |
| Obecna glukoza, nieuszkodzone komórki | Ochronne buforowanie mimo szybszego obiegu | Glukoza zwiększała redukcję barwnika, ale obniżała stres netto, co jest zgodne z dostarczaniem NADPH przez szlak pentozofosforanowy do regeneracji antyoksydantów |
| Komórki z nagromadzonym askorbinianem | Wynik mieszany: zużywanie askorbinianu, buforowanie sygnału sondy | Barwnik stopniowo utleniał wewnątrzkomórkowy askorbinian nawet przy obecności glukozy, jednocześnie częściowo hamując utlenianie sondy; koszt ponosiła pula obronna |
| Zwierzęta poddane wstępnemu działaniu rotenonu, barwnik podany najpierw | Korzystny wynik w tkance | Wcześniejsze podanie barwnika zmniejszało wywołane rotenonem uszkodzenia mitochondrialnego DNA w śródmózgowiu myszy, mimo że zwiększało ilość nadtlenku w izolowanych mitochondriach |
Najważniejszy jest wzorzec widoczny w całym zestawieniu. Wytwarzanie nadtlenku i ochrona biologiczna to odrębne osie. Ten sam zabieg może jednocześnie dawać niekorzystny wynik na pierwszej i korzystny na drugiej.
Dlaczego ta sama dawka daje różne odpowiedzi
Stężenie wyznacza zdolność przenoszenia elektronów, a nie ich los. Uwalnianie nadtlenku z mitochondriów mózgu wzrastało w sposób wykrywalny od 50 nM wzwyż w badaniu nieuszkodzonych mitochondriów mózgu, podczas gdy wyraźne uszkodzenia mitochondrialnego DNA w ciemności wymagały 100 uM. To w przybliżeniu dwa tysiące razy większe stężenie niż to, przy którym pojawiał się pierwszy sygnał, ale nie jest to margines bezpieczeństwa. Punkty końcowe, przedziały komórkowe i czasy ekspozycji są różne, więc te liczby wyznaczają odrębne zjawiska, a nie punkty na jednej krzywej. Omówienie zależności dawka–odpowiedź umieszcza tego rodzaju różnicę między sygnałem przy niskim stężeniu a uszkodzeniami przy wysokim stężeniu w szerszym kontekście hormezy.
Substrat decyduje o tym, skąd napływają elektrony. Substraty związane z NADH dostarczają barwnikowi obfitych równoważników redukcyjnych zarówno do użytecznego obejścia, jak i do nieproduktywnej reakcji z tlenem. Często przytaczane podsumowanie, że bursztynian czyni barwnik antyoksydantem, a glutaminian prooksydantem, wykracza poza dane. W badaniu serca warunki pomiaru nadtlenku z bursztynianem obejmowały również rotenon, a tkanka i dawka były inne niż w badaniu mózgu, które wykazało zwiększoną ilość nadtlenku przy każdym substracie i stanie oddychania.
Światło zmienia mechanizm, nie tylko skalę efektu. Najbardziej jednoznaczne porównanie w tym zestawie dotyczy 20 uM w ciemności, które nie powodowało wykrywalnych zmian we fragmentach mitochondrialnego DNA, oraz 20 uM w czerwonym świetle, które uszkadzało je wszystkie. Porównywanie eksperymentu prowadzonego w świetle z eksperymentem w ciemności oznacza porównywanie fotochemii z cyklem redoks.
Metale przekształcają utleniacz. Bez metali cykl barwnika w ciemności wytwarza nadtlenek, zdolną do dyfuzji cząsteczkę, której komórki używają także jako sygnału. W obecności dostępnej miedzi lub żelaza barwnik zredukowany przez NADH napędza redukcję metalu, a zredukowany metal aktywuje nadtlenek, tworząc przy DNA formy o charakterze rodnika hydroksylowego lub nadtlenkowe formy miedzi. W ten sposób badania bezkomórkowe z NADH i jonami metali uzyskały zarówno uszkodzenia DNA wybiórczo obejmujące miejsca szczególnie podatne na mutacje, jak i uszkodzenia rozległe, wychodząc od tego samego barwnika. O znaczeniu tej drogi decyduje sposób gospodarowania metalami w danym przedziale, a nie sam barwnik.
Dostępność paliwa decyduje o tym, czy komórka może pokryć koszt. W komórkach śródbłonka eksponowanych na barwnik w stężeniu 2 do 20 uM usunięcie glukozy ujawniało koszt oksydacyjny, a dostarczenie glukozy go znosiło, mimo że glukoza przyspieszała również redukcję barwnika. Szybszy obieg ze sprawnie zasilaną obroną wypada lepiej niż wolniejszy obieg z wyczerpanymi zasobami obronnymi. Każde twierdzenie o utleniaczach, które pomija dostępność glukozy lub NADPH, należy uznać za niepełne.
Tkanka określa dostępne wyposażenie. Komórki śródbłonka regenerują NADPH poprzez metabolizm glukozy i mają cytozolowe pule antyoksydantów. Izolowane mitochondria nie mają żadnego z tych zasobów. Oczyszczone DNA nie ma nawet mechanizmów naprawy. Wynik w jednym preparacie niewiele mówi o pozostałych, dlatego planowany artykuł o odpowiedziach swoistych dla tkanek będzie musiał wyraźnie rozdzielić te układy.
Bezpośredni pomiar to nie późniejsza odpowiedź obronna
W wielu tekstach zlewa się dwie warstwy, które eksperymenty rozdzielają. Jedna dotyczy tego, ile utleniacza się pojawiło. Druga — tego, jak odpowiedziała komórka.
Testy nadtlenku typu Amplex są najbliższe pierwszej warstwie, ale nawet one mierzą strumień netto, czyli produkcję pomniejszoną o rozkład i eksport. Badanie mitochondriów mózgu wykazało zmiany po obu stronach: powstawało więcej nadtlenku, a jednorazowo dodana porcja nadtlenku była usuwana wolniej. Dalej w łańcuchu zdarzeń znajdują się utlenianie glutationu, zużycie askorbinianu, utleniona guanina i uszkodzenia DNA blokujące polimerazę. Każdy etap wprowadza kolejne procesy biologiczne między utleniaczem a odczytem.
Enzymy antyoksydacyjne regulowane przez Nrf2 i biogeneza mitochondriów należą do drugiej warstwy. Są to programy adaptacyjne, które może uruchomić łagodny impuls nadtlenku, a autorzy badania ochrony mitochondriów mózgu proponują właśnie taki łagodny stres jako bodziec, zaznaczając, że łańcuch przyczynowy obejmujący Nrf2 opiera się na wcześniejszych pracach, a nie na ich własnym pełnym wykazaniu tego mechanizmu. Ochrona, która pojawia się kilka godzin później dzięki nowym białkom, nie oznacza, że początkowa reakcja chemiczna była antyoksydacyjna. Oznacza, że niewielkie zdarzenie prooksydacyjne zapewniło większą obronę. Zasady ostrożnej interpretacji takich twierdzeń, w tym ograniczenia metod pomiarowych i różnice między preparatami, są tematem przewodnika po czytaniu badań nad błękitem metylenowym.
Dlaczego wyniki różnych testów się nie zgadzają
Nieswoista sonda, taka jak dihydrofluoresceina, wskazuje ogólne utlenianie sondy, a nie stężenie nadtlenku. Zależy od chemii peroksydaz i hemu i może nie wykryć wzrostu ilości nadtlenku, który wychwyci skalibrowany test Amplex. W badaniu mitochondriów mózgu zaobserwowano znacznie więcej nadtlenku bez odpowiadającego temu sygnału anionorodnika ponadtlenkowego, co przestrzega przed przytaczaniem twierdzeń o działaniu antyoksydacyjnym opartych na pojedynczym pomiarze z użyciem barwnika. Nakładanie się widm optycznych jest uzasadnionym przedmiotem kontroli, ponieważ barwnik pochłania światło widzialne w pobliżu często stosowanych pasm wzbudzenia i emisji. Jednak w starannie przeprowadzonym badaniu skalibrowano pomiar względem znanych ilości nadtlenku, ograniczono ekspozycję na światło wzbudzające przy niewielkiej zmianie sygnału i potwierdzono wolniejsze usuwanie nadtlenku za pomocą osobnej elektrody. Interferencja wymaga kontroli, a nie automatycznego odrzucenia wyniku.
Wynik dotyczący wapnia pokazuje tę samą potrzebę precyzji. W badaniu serca barwnik podany doraźnie nie zmieniał całkowitej ilości wapnia zgromadzonej przed przejściem przepuszczalności, a jednak poprawiał tempo wychwytu wapnia w mitochondriach mózgu z zablokowanym łańcuchem oddechowym w ukierunkowanym na cukrzycę badaniu mitochondriów serca. Różne punkty końcowe, różne układy, żadnej sprzeczności.
Lista kontrolna przed uznaniem werdyktu
Każdy werdykt o działaniu antyoksydacyjnym lub prooksydacyjnym traktuj jako opis konkretnego układu i zadaj pięć pytań. W jakim stężeniu i w jakim przedziale? Z jakim donorem elektronów i jakim konkurencyjnym akceptorem? W świetle czy w ciemności, przy jakiej długości fali i dawce? Jakie metale były dostępne oraz jak zasilane były zasoby paliwa i pule antyoksydantów? I jaką metodą badano strumień utleniaczy, uszkodzenia lub odpowiedź adaptacyjną? Zmiana choćby jednej odpowiedzi może przesunąć tę samą cząsteczkę w macierzy z działania ochronnego do uszkadzającego, bez żadnego paradoksu.