
Raksts
Eksperimenti, kas saistīja metilēnzilo ar šūnu elpošanu
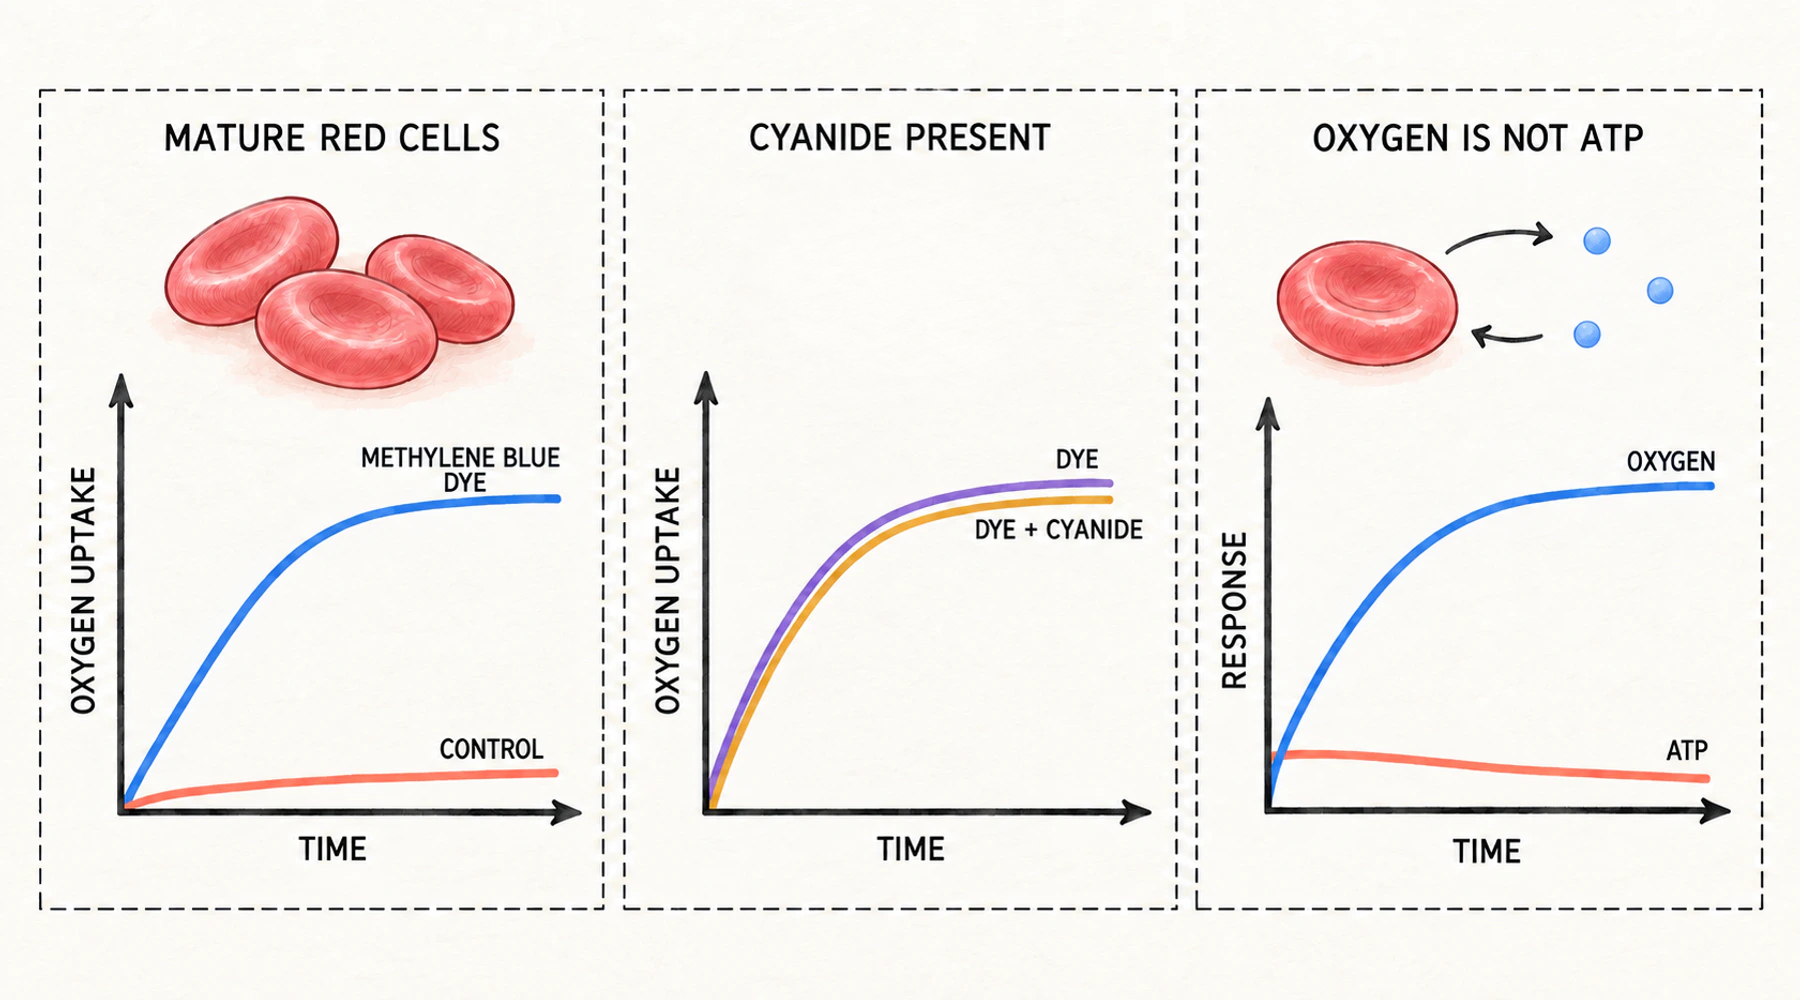
Defibrinētas cilvēka asinis, trīs stundas turētas 37 °C temperatūrā, patērē aptuveni divus procentus tajās esošā skābekļa. Ja pirms inkubācijas pievieno nelielu daudzumu metilēnzilā, tās pašas asinis patērē aptuveni sešdesmit piecus procentus. Šūnās nekas nebija mainījies. Mainījās tikai šķīdums.
Šis skaitlis nāk no 1928. gada publikācijas, kuras autori bija Džordžs Harops un E. S. Gusmans Barons no Džonsa Hopkinsa universitātes. Tā ir pamatā plaši atkārtotajam apgalvojumam, ka metilēnzilais uzlabo šūnu elpošanu. Šis apgalvojums nav nepatiess, taču tā nozīme ir šaurāka, nekā varētu šķist.
Ko patiesībā mēra tabulā norādītais skaitlis
Mērītais rādītājs bija skābekļa uzņemšana, ko noteica ar gāzu analīzi. Harops un Barons tikko paņemtas asinis 10 °C temperatūrā filtrēja caur vati, lai atdalītu leikocītus, piesātināja paraugu ar skābekli, sadalīja to, vienai daļai pievienoja krāsvielu un pēc inkubācijas analizēja abas daļas. Leikocītu skaits reti pārsniedza aptuveni tūkstoti kubikmilimetrā. Skābekļa patēriņu izteica kā izzudušā skābekļa daļu no tā sākotnējā daudzuma paraugā.
Viņi mērīja arī oglekļa dioksīdu, taču tur metode sagādāja grūtības. Pirmajā inkubācijas stundā defibrinētas asinis izdalīja līdz diviem milimoliem oglekļa dioksīda uz 100 mL tādu iemeslu dēļ, kas nebija saistīti ar pētāmo reakciju, tāpēc pilnasinīm iegūtie elpošanas koeficienti nebija izmantojami. Tikai mazgātas šūnas Loka šķīdumā deva interpretējamus rezultātus, un tie gan ar krāsvielu, gan bez tās bija robežās no 0.73 līdz 0.80.
Šī detaļa nav mazsvarīga. Šajās publikācijās ar “elpošanu” saprot gāzu apmaiņu slēgtā traukā. Atšķirība starp skābekļa patēriņu un lietderīgās enerģijas ieguvi ir atsevišķi aplūkota rakstā par to, ko skābekļa patēriņš pasaka un ko nepasaka par ATP.
Krāsviela visvairāk palielināja elpošanu tur, kur šūnas elpoja vismazāk
Nobriedušiem zīdītāju eritrocītiem gandrīz nav izmērāma skābekļa patēriņa. Putnu eritrocītiem, kuriem ir kodols, tas ir. Harops un Barons pētīja abus, un šī atšķirība ir viņu argumentācijas pamatā.
Zīdītāju paraugos krāsviela izraisīja divdesmit līdz piecdesmit reižu palielinājumu. Zoss asinīs, kuru šūnas jau elpoja, tā nekad nepalielināja ātrumu vairāk kā divas reizes. Jo lielāka bija sākotnējā elpošana, jo mazāku papildu pieaugumu varēja panākt ar krāsvielu.
Tāda pati sakarība redzama arī vienas sugas ietvaros. Asins paraugs no cilvēka ar īsto policitēmiju, kurā bija nenobriedušas šūnas, bez krāsvielas patērēja 11.3 procentus skābekļa, salīdzinot ar 2.8 procentiem mazgātās šūnās no vesela donora. Krāsviela šo rādītāju palielināja tikai līdz 63.4 procentiem — seškārtīgs paātrinājums, kamēr normālās šūnās tas bija gandrīz trīsdesmitkārtīgs. Krāsviela nobriedušo šūnu darbību tuvināja nenobriedušo šūnu darbībai, un tieši tā autori raksturoja tās iedarbību.
Cianīdam to vajadzēja apturēt
Bija zināms, ka cianīds aptur šūnu oksidēšanās procesus. Harops un Barons tomēr to pievienoja kopā ar krāsvielu.
Liellopu asiņu rezultāti ir raksturīgs piemērs. Bez piedevām skābekļa saturs trīs stundu laikā samazinājās no 22.61 līdz 22.03 tilpumprocentiem. Ar metilēnzilo tas samazinājās līdz 12.84. Ar metilēnzilo un kālija cianīdu koncentrācijā viena piectūkstošā daļa mola litrā tas samazinājās līdz 12.74. Krāsvielas iedarbība būtībā nemainījās.
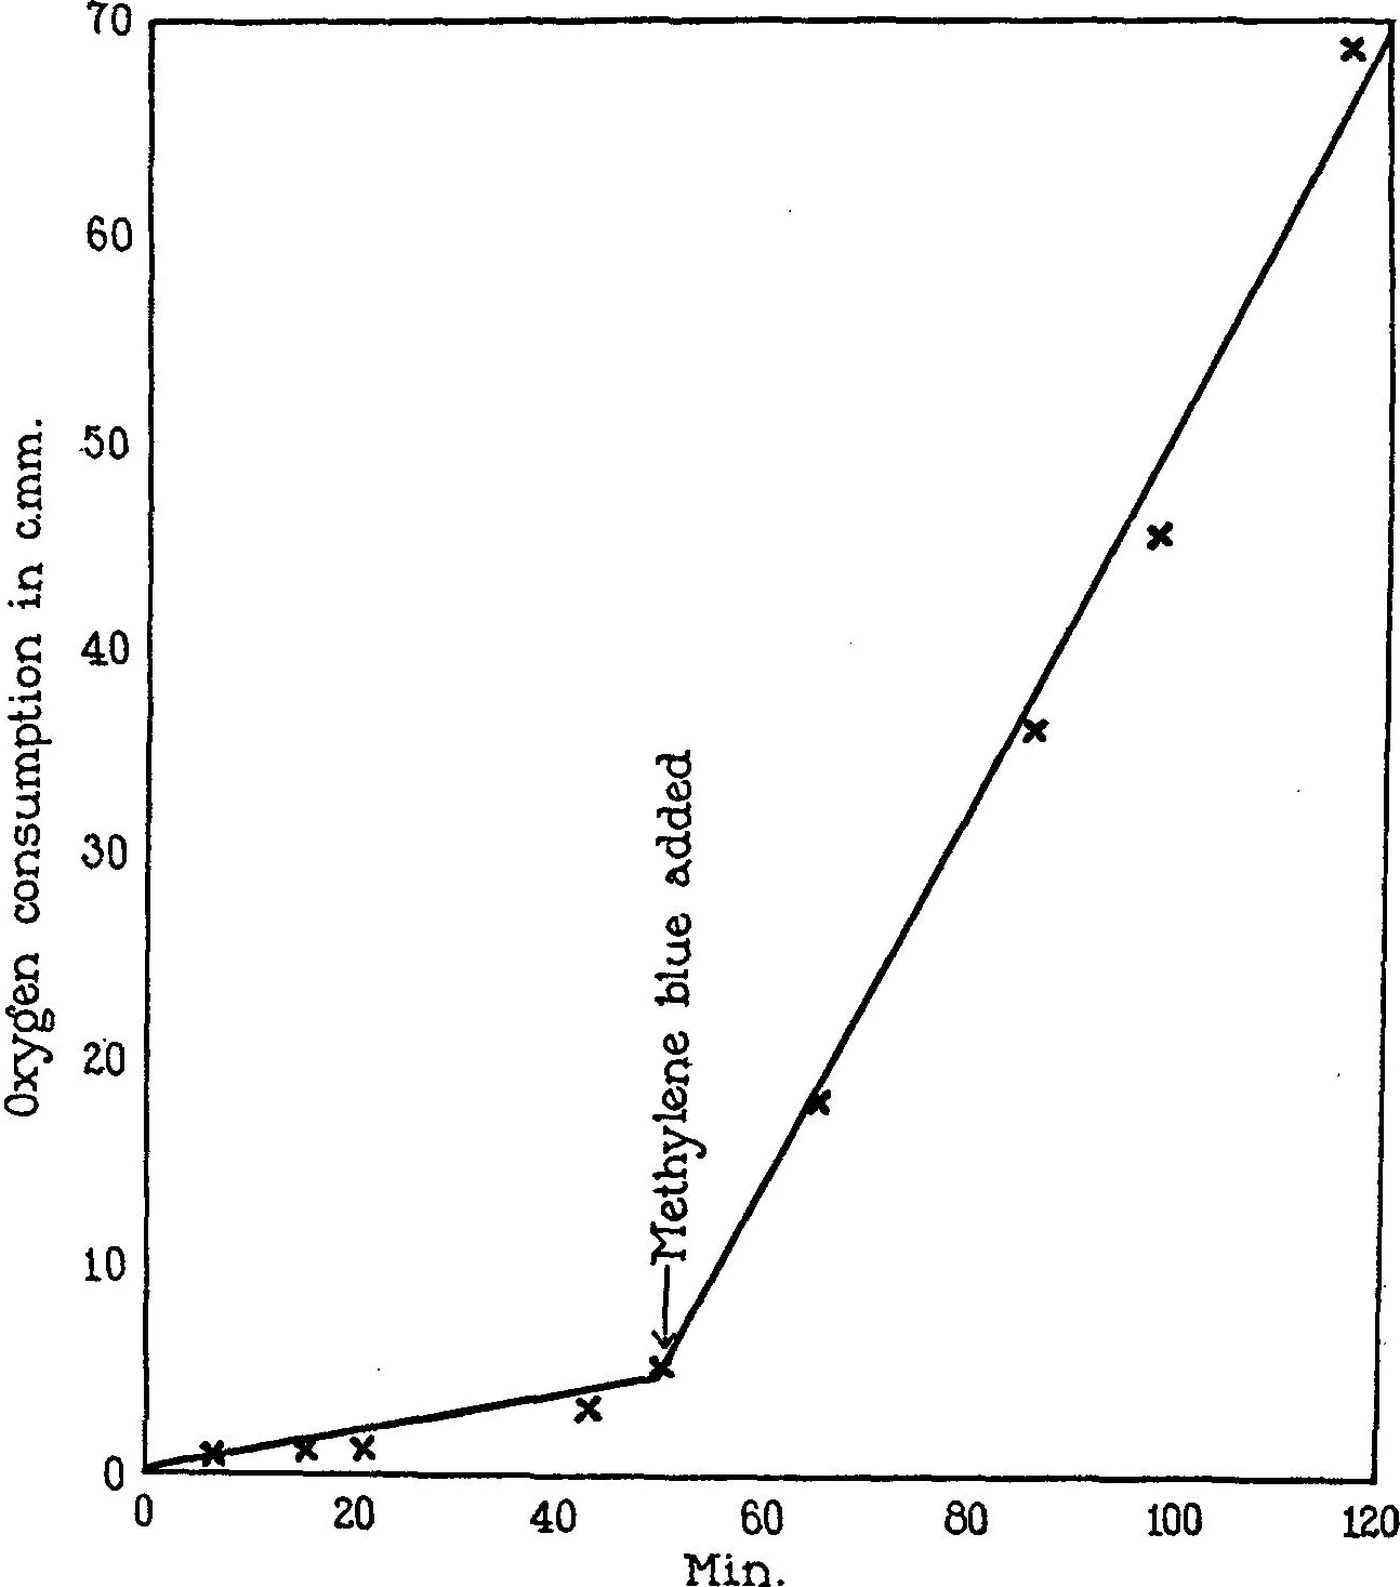
Attēls: nepārtraukts cilvēka eritrocītu mikrorespirometrijas ieraksts. Bulta norāda metilēnzilā pievienošanas brīdi. Pirms tā līkne ir gandrīz horizontāla; pēc tam tā vienmērīgi kāpj. Pārpublicēts no Haropa un Barona raksta, Journal of Experimental Medicine 48:207–223 (1928), PMID 19869478.
Viņu secinājums bija, ka krāsviela darbojas kā skābekļa pārnesējs, “nodrošinot vielu, kas ir izzudusi no pieaugušu zīdītāju bezkodola eritrocītiem”. Divus gadus vēlāk Mihaēliss un Salomons Rokfellera institūtā formulēja šo domstarpību tā, kā tā saglabājusies līdz mūsdienām. Krāsvielas iedarbība bija vai nu “nejauša krāsvielas īpašība”, vai arī krāsviela bija “modelis kādai nezināmai vielai organismos”. Izvēle starp šīm iespējām joprojām nav izdarīta. Mainījies ir tas, ka tagad šūnas var raksturot daudz precīzāk.
Aknu ekstrakts darīja to pašu
Mihaēliss un Salomons parādīja, ka ar aukstu ūdeni iegūti orgānu ekstrakti izraisa tādu pašu stimulāciju. Visstiprākā iedarbība bija žurkas aknu ekstraktam, kam sekoja nieru, liesas un sēklinieka ekstrakti. Smadzeņu, muskuļu un asins seruma iedarbība bija neliela vai tās nebija vispār.
Pēc tam viņi pārbaudīja ekstrakta iedarbību oglekļa monoksīda klātbūtnē. Gan ekstrakta, gan krāsvielas izraisītā elpošana nemainījās maisījumā, kas saturēja 98 procentus oglekļa monoksīda un 2 procentus skābekļa. Tas pats gāzu maisījums kavēja rauga un mājputnu kodolu saturošo eritrocītu elpošanu aptuveni par 60 līdz 80 procentiem, atbilstoši Vārburga aprakstam par elpošanas fermentu, kas ir jutīgs pret oglekļa monoksīdu. Tātad neidentificētā audu viela nebija Vārburga enzīms.
Pētījumu gaitā tika noraidītas vairākas iespējamās vielas. Reducēts glutations un cisteīns izraisīja tikai tādu skābekļa patēriņu, kāds nepieciešams to pašu oksidēšanai. Hārdena un Janga koenzīms tika izslēgts, jo visvairāk tā ir muskuļos, bet to ekstraktam bija gandrīz vismazākā iedarbība. Arī Keilina citohroms, kas savu nosaukumu bija ieguvis dažus gadus agrāk, saskārās ar to pašu pretrunu. Savu pieņēmumu, ka aktīvā viela nāk no šūnas kodola, autori nosauca tikai par pieņēmumu.
Iedarbībai bija savi nosacījumi
Šūnām bija jābūt neskartām. Hemolīze, ko izraisīja destilēts ūdens vai atkārtota sasaldēšana, likvidēja reakciju gan uz krāsvielu, gan uz ekstraktu, bet daļēja hemolīze to proporcionāli samazināja.
Bija vajadzīgs arī cukurs. Glikoze, fruktoze un saharoze nodrošināja krāsvielas izraisīto elpošanu; mannīts to nenodrošināja. Bez cukura elpošanas nebija vispār, un šķita, ka krāsviela šajā procesā bojā šūnas, tāpēc pēc vienas vai divām stundām pievienota glikoze elpošanu neatjaunoja. Autori pieļāva, ka krāsviela oksidē šūnai nepieciešamu strukturālu komponentu.
Apgaismojums ievērojami pastiprināja krāsvielas iedarbību, lai gan tā bija skaidri novērojama arī tumsā. Citas reducējamas krāsvielas uzvedās atšķirīgi: toluilēnzilā iedarbība bija tāda pati kā metilēnzilajam vai lielāka, savukārt indigo disulfonāts gandrīz neko neietekmēja. Skaidra saistība starp krāsvielas oksidēšanās–reducēšanās potenciālu un tās iedarbības lielumu neparādījās; autori to skaidroja ar membrānas caurlaidību un toksiskumu.
Iedarbība bija saistīta ar fermentāciju, nevis elpošanu
Barona 1930. gada pētījumā šūnu suspensijas nomainīja normālu žurku orgānu un transplantētu audzēju audu griezumi.
Audos bez aerobās glikolīzes metilēnzilais neko nemainīja vai nedaudz samazināja skābekļa patēriņu: nierēs aptuveni par 14 procentiem, aizkuņģa dziedzerī aptuveni par 14 procentiem, aknās aptuveni par 5 procentiem. Audos, kuros fermentācija norisinās skābekļa klātbūtnē, tas palielināja patēriņu: liesā aptuveni par 8 procentiem, smadzenēs aptuveni par 13 procentiem. Audzējos pieaugums bija no aptuveni 27 procentiem cilvēka krūts karcinomā līdz vairāk nekā 80 procentiem Rausa vistu sarkomā, aptuveni proporcionāli katru audu aerobajai glikolīzei.
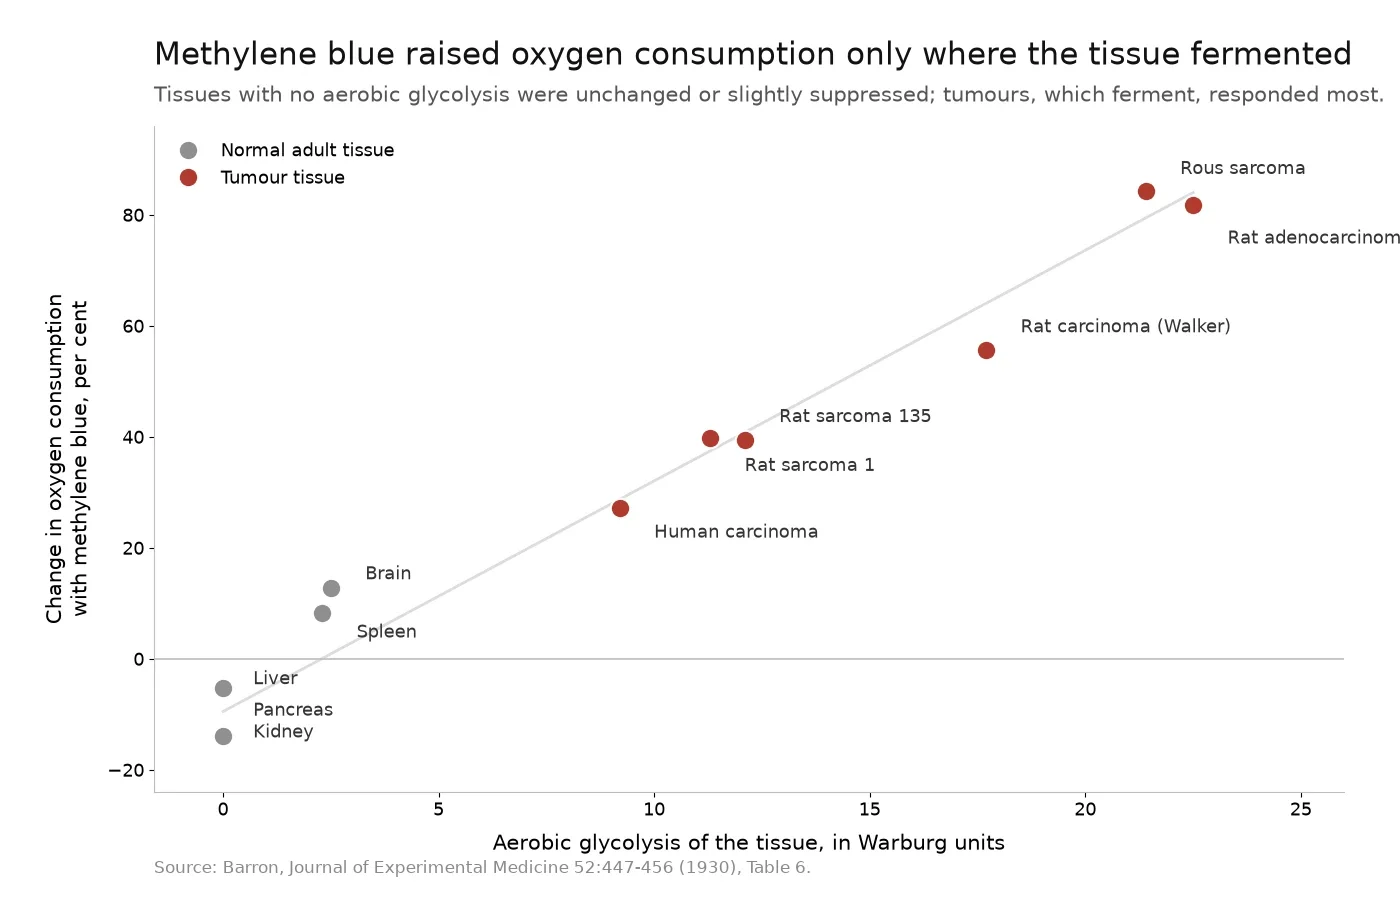
Attēls: katrs punkts apzīmē vienu audu veidu. Horizontālā ass rāda aerobo glikolīzi; vertikālā ass — skābekļa patēriņa izmaiņas pēc metilēnzilā pievienošanas. Dati no Barona raksta, Journal of Experimental Medicine 52:447–456 (1930), 6. tabula, PMID 19869777.
Pēc tam eksperiments ar cianīdu parādīja pretēju ainu. Kad šajos iepriekš nereaģējošajos audos elpošanu bloķēja ar cianīdu un izpaudās fermentācija, krāsviela atkal palielināja skābekļa patēriņu: nierēs aptuveni par 59 procentiem, aknās aptuveni par 19 procentiem, liesā aptuveni par 286 procentiem, sēkliniekā aptuveni par 200 procentiem.
Barons ierosināja, ka krāsviela varētu kalpot par šūnas vai audu fermentācijas spējas pārbaudes līdzekli, un noslēgumā izteica pieņēmumu: audzēja kultivēšana daudzās paaudzēs krāsvielu saturošā vidē kādu dienu varētu padarīt tā vielmaiņu pastāvīgi līdzīgu normālu audu vielmaiņai. Tas bija 1930. gadā formulēts pētniecības jautājums. Tas nav apgalvojums par ārstēšanu.
Ko šajos eksperimentos nevarēja mērīt
- un 1930. gadā “elpošana” nozīmēja skābekļa patēriņu. Par adenozīntrifosfātu pirmo reizi ziņoja 1929. gadā, bet pierādījums, ka izolēti mitohondriji elektronu pārneses laikā esterificē fosfātu, parādījās 1949. gadā. Nevienā no agrīnajiem metilēnzilā pētījumiem nevarēja būt mērīta enerģijas ražošana, un neviens no tiem to arī neapgalvoja.
Otrā problēma ir pašas šūnas. Nobrieduši zīdītāju eritrocīti nesatur mitohondrijus. Retikulocītu stadijā tie ar selektīvu autofāgiju atbrīvojas no mitohondrijiem un ribosomām, tāpēc nobriedis eritrocīts enerģiju iegūst glikolīzē un paļaujas uz pentožu fosfāta ceļu galvenokārt NADPH, nevis ATP iegūšanai. 1928. gada eksperimentos nebija elektronu transporta ķēdes, ko varētu atjaunot. Lai kas patērēja skābekli, tas darīja kaut ko citu.
Tagad šis cits process ir diezgan labi aprakstīts. Metilēnzilais pieņem elektronus no šūnas reducējošajiem ekvivalentiem un pārvēršas par leikometilēnzilo, kuru molekulārais skābeklis atkal oksidē, noslēdzot ciklu. Cilvēka eritrocītos reducēšanas posmu veic NADPH atkarīga flavīna reduktāze un radniecīgas disulfīdu reduktāzes. 1976. gada pētījumā, kurā izmantoja iezīmētu glikozi, konstatēja, ka krāsviela stimulē heksozes monofosfāta šuntu, ka iedarbība zemā koncentrācijā bija atkarīga no oksihemoglobīna un ka augstākā koncentrācijā, 0.1 mM, veidojās ūdeņraža peroksīds. Reducēta krāsviela, saskaroties ar skābekli, rada peroksīdu, nevis fosfātsaites.
Mitohondrijos aina ir strīdīgāka, nekā to atzīst populārie kopsavilkumi. Viens pētījumu virziens uzskata, ka krāsviela paņem elektronus no I kompleksa apvidus un nodod tos citohromam c. Citā pētījumā konstatēja, ka peļu smadzeņu mitohondrijos tā nevar atjaunot elpošanu pēc bloķēšanas ar antimicīnu, un elektronu pieņemšanas vietu tā vietā lokalizēja III kompleksa ubihinola saistīšanās vietā. Trešajā konstatēja, ka zema koncentrācija palielina skābekļa patēriņu miera stāvoklī, nemainot ADP stimulēto elpošanu. Vistiešāk šo domu izsaka secinājums, ka metilēnzilā izraisītais skābekļa patēriņš vispār nav atkarīgs no oksidatīvās fosforilēšanas: tas saglabājās, kad elpošanas ķēde bija inhibēta, kā arī preparātos, kuros tās nebija.
Pastāv arī tieši mērījumi, kas parāda atšķirību starp šiem diviem lielumiem. Izolētos žurku aknu mitohondrijos pieaugoša krāsvielas koncentrācija samazināja elpošanas kontroles koeficientus un izraisīja uzbriešanu, ko autori raksturoja kā oksidatīvās fosforilēšanas atjūgšanu. Perfuzētās žurku aknās metilēnzilais palielināja skābekļa patēriņu, kamēr ATP un ADP attiecība samazinājās.
Klīniskie dati rāda to pašu. Methemoglobinēmiju ārstē, intravenozi ievadot aptuveni vienu līdz divus miligramus metilēnzilā uz kilogramu, izmantojot NADPH atkarīgu reducēšanas ceļu, bet lielākas devas izraisa pašu ārstējamo stāvokli. Tajā pašā pārskatā norādīts, ka antidota iedarbība ir vislielākā neskartos eritrocītos un samazinās hemolīzes klātbūtnē — tātad 1930. gada atradne par hemolīzi pēc septiņdesmit trim gadiem atkārtojas slimnīcas kontekstā. Vielai, kuras lietderīgā un kaitīgā iedarbība atrodas pretējās pusēs devas slieksnim, devu nedrīkst izsecināt no skābekļa patēriņa mērījuma.
Kāpēc šajā apspriedē jāņem vērā arī partija
Harops un Barons pamanīja kaut ko, ko vērts izlasīt vēlreiz. Pats metilēnzilais spektroskopā rada joslu starp abām methemoglobīnam raksturīgajām joslām, “kas paviršā apskatē var viegli radīt sajukumu”. Krāsviela var atdarināt meklējamo vielu.
Tai pašai problēmai ir arī ķīmiska izpausme. Radniecīgam fenotiazīnam, kas sastāvā ir nelielā daudzumā, piemīt sava oksidēšanās–reducēšanās uzvedība, sava caurlaidība un savs toksiskums. Viens dokumentēts gadījums konkrēti parāda, kāpēc tas ir svarīgi: metilēnzilā jodēšanas pētījumā paraugi, kas saturēja aptuveni 7 līdz 8 procentus Azure B, radīja galvenokārt jodētu Azure B, tāpēc reakcijā dominēja piemaisījums, nevis metilēnzilais.
Ikviens, kas metilēnzilo izmanto kā reaģentu laboratorijā, preparātu krāsošanā vai akvārijā, strādā ar nenoteikta sastāva vielu, ja partija nav raksturota. Radniecīgās vielas, identitāte, elementu piemaisījumi, šķīdinātāju atliekas un atlikums pēc karsēšanas ir daļa no eksperimenta, nevis tikai ar to saistīti dokumenti. Blupreme iegūst metilēnzilo no farmācijas ražotāja un publicē pilnu analīzes sertifikātu, pārbaudot atbilstību visai USP specifikācijai, nevis tikai smago metālu saturu; ceļvedī par analīzes sertifikāta lasīšanu un rakstā par to, ko apliecina un ko neapliecina USP kvalitātes apzīmējums, skaidrots, kā pārbaudīt, vai dokuments pamato apgalvojumu.
Skaitlis bija pareizs
- un 1930. gada eksperimenti bija rūpīgi, un to galvenais novērojums joprojām ir spēkā: reducējama krāsviela var likt šūnai, kuras elpošana ir niecīga, patērēt skābekli daudzkārt ātrāk nekā miera stāvoklī, neiesaistot posmu, kuru bloķē cianīds.
Kļūda rodas vēlāk, kad “elpošanu” lasa tās mūsdienu nozīmē. Gāzu apmaiņas mērījums parāda, ka elektroni ir nonākuši līdz skābeklim. Tas neparāda, ka kāds no tiem būtu izmantots ATP veidošanai, un šūnā bez mitohondrijiem atšķirība starp šiem diviem apgalvojumiem ir maksimāli liela. Plašāks pārskats par to, ko metilēnzilais dara šūnās aplūko šo pašu atšķirību plašākā kontekstā, savukārt vielas vēsture no krāsvielas līdz zālēm skaidro, kā tekstila krāsviela vispār nonāca līdz šiem eksperimentiem.