
記事
メチレンブルーは抗酸化物質か酸化促進物質か?結果を変える要因とは
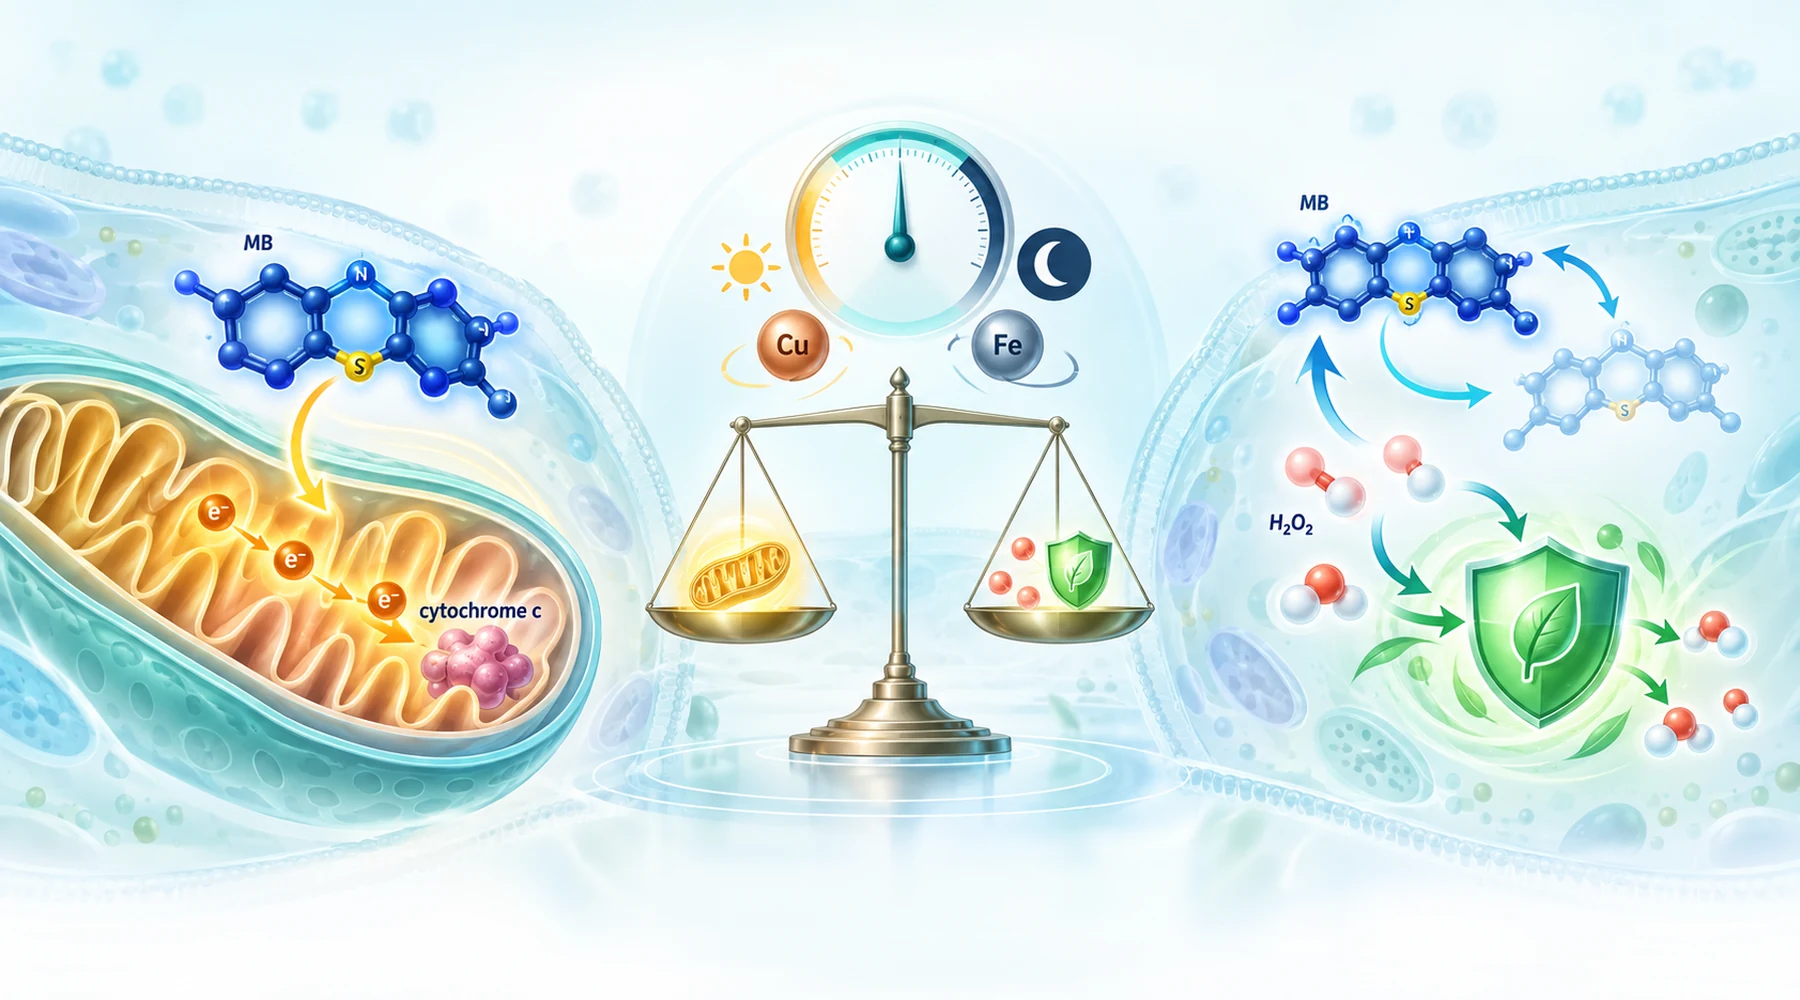
2つの研究室が同じ青色の色素を試験し、正反対の結果を報告したとします。最初の研究では、単離された脳ミトコンドリアの呼吸が改善され、ATP産生が増加しました。2つ目では、同じ調製物からはるかに多くの過酸化水素が放出されました。どちらの報告も正しいものです。両者は同じサイクルを異なる端から見て説明しており、混乱は片方の側面だけを全体像として扱うことから始まります。
問題は、その分子にどのラベルが当てはまるかを尋ねることです。メチレンブルーは電子の中継役であり、より広い文脈では細胞生物学的標的のマップに示されています。酸化型の色素は電子を受け取り、無色のロイコMBになります。ロイコMBはそれらの電子を次へ渡し、再び青色に戻ります。観察される結果は、誰が電子を供与し、誰が受け取り、そして途中で生成された過酸化水素をシステムが除去できるかによって変わります。重要なのは、色素が抗酸化物質かどうかではありません。条件によって、この中継反応がどのように働くかです。
両方の側面を生み出すサイクル
暗所では、中心となるループは短いものです。NADH、NADPH、または呼吸鎖の担体が色素を還元します。還元型の色素には複数の出口があります。シトクロムcへ電子を渡して損傷した複合体周辺の流れを支えることができ、これが複合体IまたはIIIの阻害下で呼吸と膜電位が部分的に回復する理由です。または、電子を直接酸素へ渡して青色型を再生し、その過程で過酸化水素を生成することもできます。色素は再生されるため、少量でもこのループを何度も繰り返し、還元当量を継続的に消費しながら過酸化物を作り続けます。
さらに2つの分岐が化学反応を完全に変化させます。遊離銅や鉄は、この拡散可能な過酸化物をフェントン型反応によって、はるかに破壊的な局所酸化物へ変換します。赤色光は別の光化学経路を開き、励起された色素が酸素へエネルギーを移して一重項酸素を生成します。この種についてはタイプIおよびタイプII光化学の解説で詳しく説明しています。暗所での酸化還元サイクル、金属によって増幅された損傷、光線力学的損傷は、同じ開始分子を共有する3つの異なるメカニズムです。
条件から結果へのマトリクス
以下の表が保持すべき資産です。各行は1つの変数、その変数が押し進める方向、そして実験結果を示します。Positiveは保護的または改善された指標を意味します。Adverseは酸化物増加、枯渇、または損傷増加を意味します。
| Condition | Outcome direction | What the experiment showed |
|---|---|---|
| Low concentration, 0.1 to 1 uM, isolated mitochondria | Positive bioenergetics plus higher peroxide | 0.1 uM improved oxygen consumption in healthy and diabetic rat heart mitochondria; 100 nM to 1 uM partly restored ATP, membrane potential, and calcium uptake in blocked brain mitochondria, while peroxide release rose in every condition |
| Higher concentration, above 5 uM, glucose deprived cells | Adverse oxidant signal | Endothelial cells oxidised a general ROS probe and lost reduced glutathione above 5 uM when glucose was absent; adding glucose prevented both |
| Complex I substrates (glutamate plus malate) | More peroxide | Both brain and heart mitochondrial work found raised peroxide release with NADH linked substrates |
| Succinate plus rotenone, heart mitochondria, 0.1 uM | Less peroxide in that protocol | The one clearly antioxidant peroxide readout in the set; note the protocol included rotenone and a different tissue, so substrate alone does not explain it |
| Red light, 20 uM plus 630 nm | Adverse DNA damage | No significant mitochondrial DNA lesions in the dark at 20 uM; the same concentration with red light damaged every tested fragment |
| Very high dark concentration, 100 uM | Adverse selective DNA damage | Selective mitochondrial DNA lesions at purine rich sequences, a step change from the nanomolar peroxide signal |
| Copper or iron plus NADH, cell free DNA | Adverse oxidative lesions | Copper directed damage to a p53 hotspot sequence; iron EDTA caused broad damage; catalase and metal chelators blocked the respective pathways; oxidised guanine increased |
| Glucose present, intact cells | Protective buffering despite faster cycling | Glucose increased dye reduction yet lowered net stress, consistent with pentose phosphate supply of NADPH for antioxidant recycling |
| Ascorbate loaded cells | Mixed: ascorbate consumed, probe signal buffered | Dye progressively oxidised intracellular ascorbate even with glucose present, while partly suppressing probe oxidation; the defense pool paid the bill |
| Rotenone pretreated animals, dye given first | Positive tissue outcome | Dye pretreatment reduced rotenone induced mitochondrial DNA lesions in mouse midbrain despite raising peroxide in isolated mitochondria |
各行に共通するパターンが重要です。過酸化物生成と生物学的保護は別々の軸です。同じ時点で、ある処置が前者では有害、後者では有益という評価になることがあります。
同じ用量で異なる答えになる理由
濃度はシャトル能力を決定しますが、運命そのものを決めるわけではありません。生きた脳ミトコンドリアに関する研究では、50 nM以上から過酸化物放出が検出可能なほど増加しました。一方、暗所で明確なミトコンドリアDNA損傷が必要になるのは100 uMでした。これは最初のシグナルと遺伝毒性の間におよそ2000倍の差があることを意味しますが、安全域を意味するものではありません。評価項目、区画、曝露時間が異なるため、これらの数値は1本の曲線上の点ではなく、異なる現象を示しています。用量反応の議論では、このような低シグナルと高損傷の差を、より広いホルミシスの文脈で説明しています。
基質は電子がどこから入るかを決定します。NADH関連の燃料は、有用なバイパス反応と無駄な酸素反応の両方に利用できる豊富な還元当量を色素に与えます。コハク酸は色素を抗酸化的にし、グルタミン酸は酸化促進的にするというよく引用される要約は、データを過度に単純化しています。心臓研究のコハク酸条件にはロテノンも含まれ、脳研究とは異なる組織と用量が使用されているためです。脳研究ではあらゆる基質および呼吸状態で過酸化物上昇が確認されています。
光は単なる強度ではなく、メカニズムを変えます。この一連の中で最も明確な対比は、暗所で20 uMがミトコンドリアDNA断片に検出可能な影響を与えなかったのに対し、赤色光下では同じ濃度がすべての断片を損傷させたことです。光照射実験と暗所実験を比較することは、光化学と酸化還元サイクルを比較することになります。
金属は酸化物を変換します。金属がなければ、色素の暗所サイクルは過酸化物を作ります。これは細胞がシグナルとしても利用する拡散可能な分子です。利用可能な銅または鉄がある場合、NADHで還元された色素が金属還元を促進し、還元金属が過酸化物を活性化して、DNAの近傍でヒドロキシル型または銅過酸化物種を生成します。そのため、NADHと金属イオンを用いた無細胞研究では、同じ開始色素からホットスポット選択的および広範なDNA損傷が生じました。この分岐が重要になるかどうかを決めるのは、色素単独ではなく区画の金属制御です。
燃料状態は、細胞が代償できるかを決めます。2〜20 uMの色素に曝露した内皮細胞では、グルコース除去によって酸化コストが現れましたが、グルコース供給によってそれは解消されました。グルコースは色素還元も促進しました。防御機構が資金供給された状態での高速サイクルは、防御機構が枯渇した状態での低速サイクルを上回ります。グルコースまたはNADPH状態を無視した酸化に関する主張は不完全として扱うべきです。
組織は装置そのものを決めます。内皮細胞はグルコース代謝によってNADPHを再生し、細胞質の抗酸化プールを持っています。単離ミトコンドリアにはそれらがありません。精製DNAには修復機構すらありません。ある調製系の結果から別の系をほとんど予測できないため、組織特異的応答を扱う予定の内容では、これらのシステムを分けて扱う必要があります。
直接測定は下流の防御ではない
多くの文章では、実験が分けて扱っている2つの層を一緒にしています。1つ目の層は、どれだけ酸化物が現れたかを問います。2つ目の層は、細胞がどのように応答したかを問います。
Amplex型過酸化物アッセイは最初の層に最も近いものですが、それでも正味フラックス、つまり生成量から分解量と輸送量を差し引いたものを報告します。脳ミトコンドリア研究では、両方の側面が変化しました。過酸化物生成は増加し、追加された過酸化物の除去速度は低下しました。その下流にはグルタチオン酸化、アスコルビン酸消費、酸化グアニン、ポリメラーゼ阻害性DNA損傷があります。それぞれの段階で、酸化物と測定結果の間に生物学的要素が追加されます。
Nrf2によって駆動される抗酸化酵素とミトコンドリア生合成は、2つ目の層に位置します。これらは弱い過酸化物パルスによって誘導される適応プログラムであり、脳ミトコンドリア保護研究の著者はまさにその軽度ストレス誘導を提案していますが、Nrf2を介した因果連鎖については、自身の完全な実証ではなく先行研究に基づくものだと述べています。数時間後に新しいタンパク質によって生じる保護は、開始時の化学反応が抗酸化的だったことを意味しません。それは、小さな酸化促進イベントがより大きな防御を獲得したことを意味します。このような主張を読む際の基準、アッセイの限界や調製系の違いを含む内容は、メチレンブルー研究を読むためのガイドで扱っています。
なぜアッセイ同士で結果が異なるのか
ジヒドロフルオレセインのような一般的プローブは、過酸化物濃度ではなく広範なプローブ酸化を測定します。これはペルオキシダーゼおよびヘム化学に依存し、校正されたAmplexアッセイが検出する過酸化物上昇を見逃す可能性があります。脳ミトコンドリア研究では、スーパーオキシドシグナルと一致しないほど大きな過酸化物上昇が確認されました。これは、単一の色素ベース抗酸化主張を引用することへの警告です。光学的重複は正当な制御項目であり、色素が一般的な励起・発光帯域付近の可視光を吸収するため確認が必要です。しかし、慎重な研究では既知の過酸化物で校正し、励起曝露を短縮してもシグナル変化がほとんどないことを確認し、さらに別の電極によって過酸化物除去速度の低下を確認しました。干渉は実施すべき制御であり、自動的な却下理由ではありません。
カルシウム結果も同じ精密さの必要性を示します。心臓研究では、急性の色素投与は透過性遷移前の総カルシウム負荷を変化させませんでしたが、糖尿病に焦点を当てた心臓ミトコンドリア研究では、阻害された脳ミトコンドリアでカルシウム取り込み速度を改善しました。異なる評価項目、異なるシステムであり、矛盾ではありません。
結論を信頼する前のチェックリスト
抗酸化または酸化促進という結論はすべて、あるシステムについての報告として扱い、5つの質問を確認してください。どの濃度で、どの区画で測定されたか。どの電子供与体と、どの競合する受容体が存在したか。光照射か暗所か、波長と用量はいくつか。利用可能な金属と、供給された燃料および抗酸化プールは何か。そしてどのアッセイで、酸化フラックス、損傷、または適応応答のどれを測定しているか。いずれか1つの答えを変えるだけで、同じ分子が矛盾なくマトリク