
Articolo
Misurare le specie reattive dell'ossigeno negli esperimenti con il blu di metilene
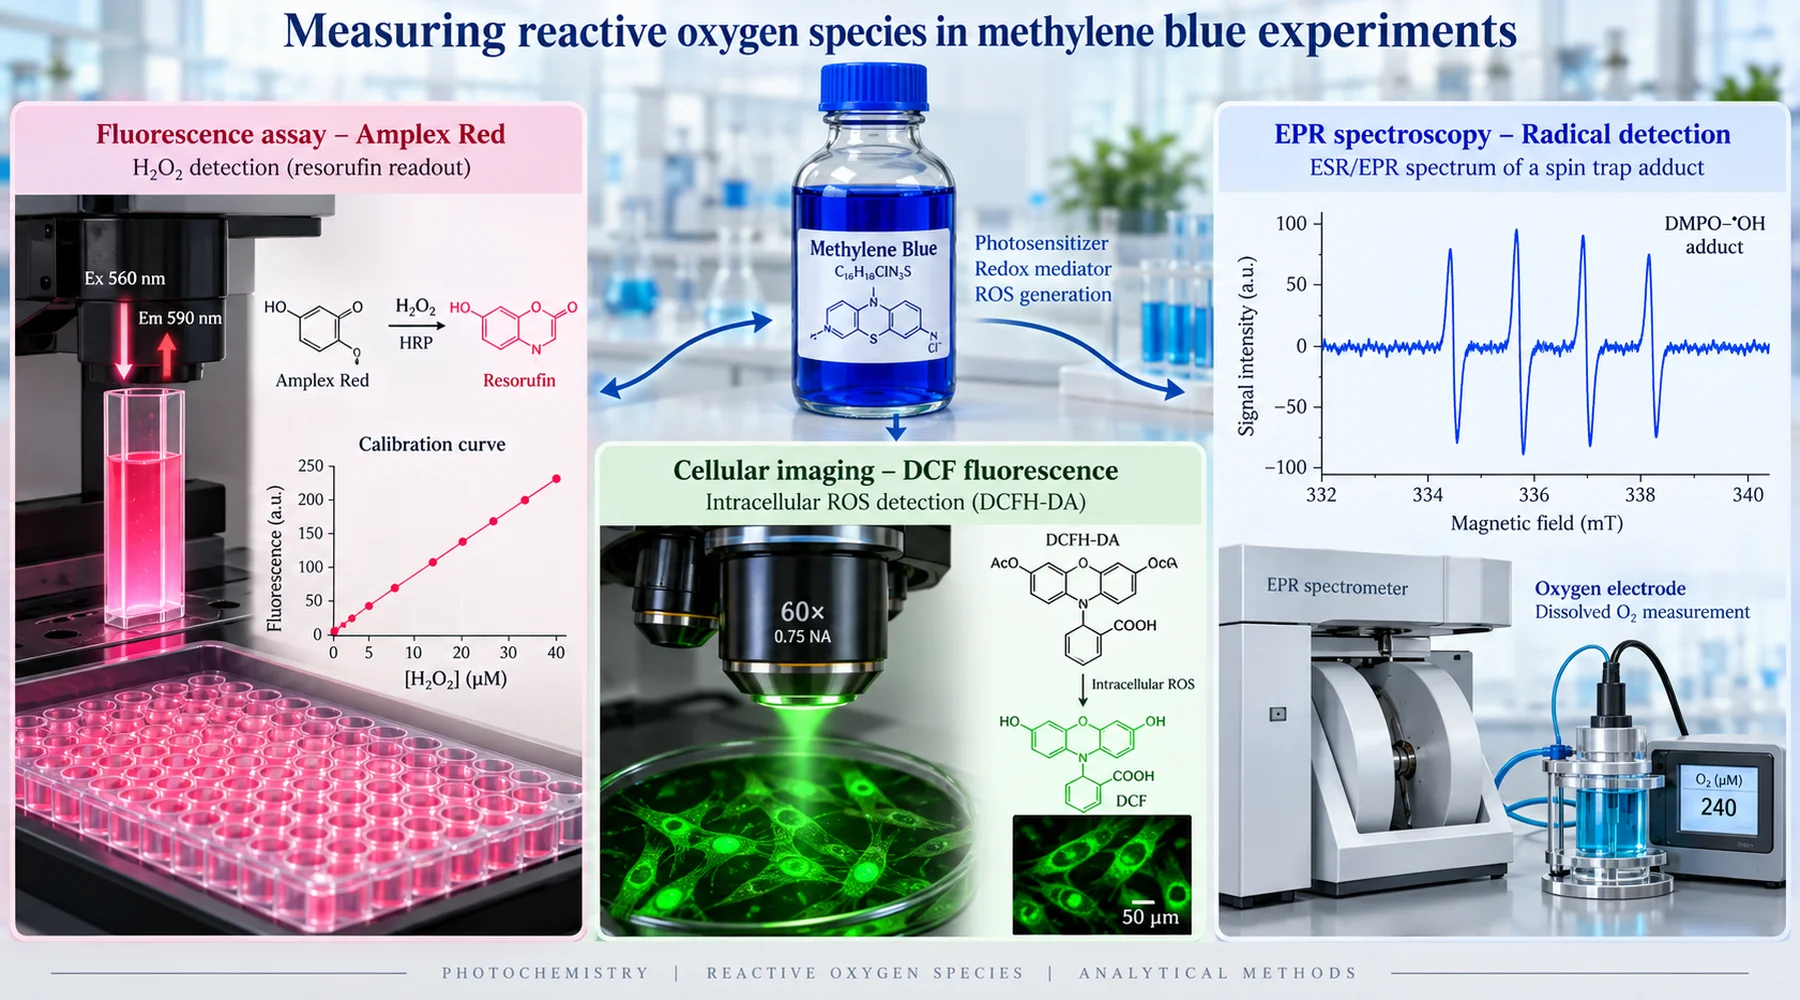
Due laboratori conducono quello che ciascuno definisce un esperimento sull'attività antiossidante del blu di metilene. Uno riferisce che il colorante sopprime le specie reattive dell'ossigeno. L'altro riferisce che le genera. Entrambi mostrano curve dose-risposta nette. Entrambi sono in buona fede. La differenza non è dovuta a frode o incompetenza. I due gruppi hanno misurato cose diverse in condizioni di illuminazione diverse, con sonde che rispondono a domande diverse, e poi hanno descritto entrambe le risposte con la stessa parola: ROS.
Il blu di metilene è una molecola difficile da misurare con precisione perché partecipa alla chimica che dovrebbe osservare. Al buio trasferisce elettroni tra donatori e accettori e torna alla forma iniziale, pronto a ripetere il ciclo. Sotto l'azione della luce diventa un fotosensibilizzante, raggiungendo uno stato eccitato di tripletto dal quale può cedere energia all'ossigeno per produrre ossigeno singoletto oppure trasferire elettroni per produrre radicali e perossido di idrogeno. Qualsiasi sonda introdotta in quel sistema può essere ossidata, ridotta, sbiadita o mascherata otticamente dal colorante stesso. Quindi la prima domanda da porsi davanti a qualsiasi lettura delle ROS non riguarda mai il valore numerico. Riguarda ciò che il saggio rileva effettivamente e ciò che il colorante fa al saggio.
Amplex Red: un saggio calibrato del perossido di idrogeno
La combinazione blu di metilene e Amplex Red è l'abbinamento più solido in questa letteratura, quando viene allestita correttamente. La chimica è specifica: la perossidasi di rafano usa il perossido di idrogeno per ossidare il substrato Amplex a un prodotto fluorescente, la resorufina, con una stechiometria approssimativamente uno a uno. Il perossido del campione diventa fluorescenza nel rivelatore. Nessun altro componente della famiglia canonica delle ROS promuove direttamente quella reazione.
Il vantaggio decisivo è la calibrazione. Un ricercatore scrupoloso analizza standard di perossido a concentrazione nota nello stesso tampone, con le stesse concentrazioni di perossidasi e substrato, lo stesso tempo di incubazione e le stesse impostazioni ottiche, poi legge i campioni rispetto a quella curva. Nello studio sui mitocondri cerebrali isolati su cui si basa questo metodo, gli autori hanno fatto esattamente questo, aggiungendo quantità note di perossido al termine di ogni prova; i valori sono riportati come velocità in picomoli al minuto per milligrammo di proteina, anziché come unità arbitrarie di fluorescenza. È questo che trasforma un bagliore in una misurazione.
Tre dettagli di quello studio meritano di essere replicati. Primo, gli autori hanno verificato il segnale con la catalasi, che degrada il perossido. L'aumento della fluorescenza indotto dal blu di metilene si è arrestato quando è stata aggiunta la catalasi, confermando che il segnale era dovuto al perossido e non a un artefatto ottico. Secondo, hanno valutato direttamente l'illuminazione usando un otturatore sul fascio di eccitazione, in modo che i campioni ricevessero un ottavo della normale dose luminosa, e il segnale è diminuito solo del nove percento. Più del novanta percento del perossido riportato era indipendente dalla luce usata per la misurazione. Terzo, hanno misurato separatamente l'eliminazione del perossido con un elettrodo e hanno riscontrato che il colorante ne aumentava la produzione e ne rallentava la rimozione. Una sonda che riportasse soltanto la fluorescenza netta avrebbe confuso questi due effetti.
Il saggio presenta comunque possibili criticità, e il blu di metilene ne mette in evidenza diverse. Il colorante assorbe ampiamente nella stessa regione del rosso in cui emette la resorufina, quindi, a concentrazioni elevate di colorante, il campione può mascherare il proprio segnale attraverso effetti di filtro interno. Gli standard dovrebbero pertanto contenere la stessa concentrazione di colorante dei campioni. Amplex Red può anche fotoossidarsi da solo, e il suo prodotto, la resorufina, può entrare in cicli fotoredox che generano superossido e perossido: un aspetto molto importante quando l'esperimento prevede anche l'illuminazione di un fotosensibilizzante. La soluzione pratica consiste nell'irradiare prima i campioni di blu di metilene e poi analizzarne aliquote con i reagenti Amplex al buio, anziché illuminare insieme colorante e sonda. Infine, la superossido dismutasi non si limita a sopprimere un segnale Amplex: convertendo il superossido in perossido può aumentarlo. Un controllo con SOD che aumenta la fluorescenza non è fallito. Ha identificato il superossido come specie a monte.
DCFDA: un indicatore di ossidazione non specifico
L'abbinamento blu di metilene e DCFDA è all'origine di gran parte della confusione. DCFH-DA è un precursore usato per il caricamento delle cellule. Le esterasi all'interno della cellula ne rimuovono i gruppi acetato, lasciando DCFH non fluorescente, e l'ossidazione di DCFH produce DCF fluorescente. L'elenco delle sostanze che lo ossidano è lungo: radicali idrossilici, intermedi della perossidasi e dell'eme, diossido di azoto, acido ipocloroso e radicali derivati dal perossinitrito. Il perossido di idrogeno da solo non lo ossida direttamente a una velocità utile; la fluorescenza dipendente dal perossido richiede generalmente la presenza di ferro, proteine contenenti eme o reazioni mediate da perossidasi.
La critica che ogni sezione sui metodi dovrebbe citare deriva dall'analisi di DCFH come sonda condotta da Kalyanaraman e colleghi, riassunta nello studio sui mitocondri cerebrali che ha escluso DCFDA per questo motivo: questi ricercatori hanno mostrato che il colorante reagisce lentamente, con stechiometria non caratterizzata, senza una calibrazione valida e anche con composti che non sono ROS. La sonda amplifica inoltre ciò che misura: l'ossidazione monoelettronica di DCFH produce un radicale DCF che reagisce con l'ossigeno formando superossido, il quale dismuta generando ulteriore perossido. La lettura produce in parte la chimica che riporta.
Nulla di tutto questo rende DCFDA inutile. Ne fa uno strumento di screening, non di identificazione. Un aumento della fluorescenza di DCF significa che è aumentata l'ossidazione della sonda dipendente dagli ossidanti. Non significa che sia aumentato il perossido, e certamente non significa che siano aumentate le ROS totali, una quantità che nessuna singola sonda misura. I primi lavori sul blu di metilene basati sull'ossidazione di DCF a concentrazioni superiori a un micromolare riportavano effetti proossidanti, mentre altri sistemi studiati nello stesso periodo mostravano protezione dalla morte cellulare indotta dal perossido. Entrambe le osservazioni possono essere vere per lo stesso colorante in contesti redox diversi, e il risultato di DCF da solo non può indicare quale ossidante abbia prodotto il segnale. L'importanza del precedente lavoro sui mitocondri cerebrali sta nell'aver sostituito questo screening con una misurazione calibrata del perossido, rilevandone direttamente il carico: persino cento nanomolare di colorante aumentavano di diverse volte il rilascio di perossido con ogni substrato e stato respiratorio esaminato.
DCFDA presenta un'ulteriore insidia specifica del blu di metilene. Il colorante è intensamente colorato e attivo dal punto di vista redox, quindi può attenuare la fluorescenza, smorzare l'emissione o ossidare la sonda indipendentemente dalle ROS cellulari. Un controllo senza cellule, con colorante e sonda, non è un dettaglio facoltativo. È l'esperimento che indica se il colorante interagisce con la sonda.
Intrappolamento di spin e consumo di ossigeno: identità e flusso
Mentre le sonde fluorescenti indicano la comparsa di qualcosa capace di ossidarle, la risonanza di spin elettronico con trappole di spin fornisce un'indicazione più vicina alla sua identità. Il classico studio sulla fotochimica del blu di metilene ha usato l'ESR per rilevare il radicale dell'ascorbato in presenza di colorante, ascorbato e luce, poi ha mostrato la formazione di perossido negli esperimenti sul consumo di ossigeno e la formazione di radicali idrossilici catalizzata dal ferro nelle prove di intrappolamento di spin. Ogni tecnica rispondeva alla domanda a cui le altre non potevano rispondere: l'ESR forniva l'identità dei radicali, il consumo di ossigeno forniva il flusso di reazione indipendentemente da qualsiasi sonda fluorescente, e la combinazione mostrava che nello stesso sistema illuminato operavano sia vie dell'ossigeno singoletto sia vie radicaliche.
Quel risultato del 1984 suona ancora come un'avvertenza. In presenza di illuminazione e di un agente riducente, il colorante generava perossido; in presenza di ferro, il sistema produceva il radicale idrossilico, la specie più reattiva del gruppo. Gli autori hanno collegato questo risultato all'ascorbato presente nell'occhio e hanno messo in discussione l'uso oftalmico disinvolto. I lettori di oggi dovrebbero prestare attenzione alle condizioni: luce più riducente più ferro. Eliminando anche uno solo di questi elementi, la via si indebolisce o scompare.
Gli elettrodi per l'ossigeno si guadagnano il loro posto in modo diverso. Un elettrodo di tipo Clark misura il consumo netto di ossigeno, dimostrando che la chimica redox promossa dal colorante consuma ossigeno molecolare e fornendo dati cinetici che nessun artefatto di fluorescenza può simulare. Non identifica il prodotto. La formazione di perossido, superossido e acqua, così come il decadimento dell'ossigeno singoletto, comportano tutti consumo di ossigeno. Il flusso senza identità è incompleto quanto l'identità senza flusso: per questo i lavori più solidi abbinano l'elettrodo a un saggio calibrato del perossido o a una trappola di spin.
Perché i risultati sull'attività antiossidante sono contrastanti
Affiancando le tre letture, le apparenti contraddizioni nella letteratura sul blu di metilene si riconducono a differenze metodologiche e a tre fatti biologici.
Primo, il colorante è sia un trasportatore di elettroni sia una fonte di perossido. Deviando gli elettroni dai siti respiratori in cui l'ossigeno diventerebbe altrimenti superossido, può ridurre una ROS mentre la sua forma ridotta riduce direttamente l'ossigeno a perossido, aumentandone un'altra. Un laboratorio che studia la chimica redox mitocondriale e il ruolo del blu di metilene come via alternativa dovrebbe quindi aspettarsi risposte dipendenti dalla sonda: nella stessa cuvetta, una lettura sensibile al superossido diminuisce mentre una lettura del perossido aumenta.
Secondo, il perossido a basse dosi è un segnale, non soltanto una fonte di danno. Lo studio sui mitocondri cerebrali di topo successivo al lavoro precedente ha riscontrato generazione di perossido già con cinquanta nanomolare di colorante, senza lesioni del DNA mitocondriale a livelli terapeutici, con protezione dalle lesioni indotte dal rotenone dopo il pretrattamento. Solo a cento micromolare, ben al di sopra dell'intervallo terapeutico, il colorante danneggiava specifici frammenti di DNA, mentre la luce rossa insieme a venti micromolare di colorante produceva ossigeno singoletto che danneggiava tutti i frammenti esaminati. Il meccanismo proposto è ormetico: una lieve produzione di perossido attiva le difese antiossidanti associate a Nrf2 e la biogenesi mitocondriale, quindi una lettura proossidante a breve termine precede un esito antiossidante a più lungo termine. Un saggio letto dopo un'ora e un saggio letto dopo un giorno possono dare risultati discordanti perché nel frattempo la biologia è cambiata.
Terzo, la luce determina persino quale molecola sia presente. L'illuminazione demetila il colorante formando Azure B e prodotti correlati, e la lampada del microscopio sopra una piastra è sufficiente a fotosensibilizzarlo. Gli esperimenti al buio e quelli sotto illuminazione sono esperimenti diversi, e la sezione sui controlli dell'illuminazione e della manipolazione del colorante di qualsiasi protocollo dovrebbe trattarli come tali.
Una serie minima di controlli e come interpretare qualsiasi affermazione
Il confronto seguente è il materiale di riferimento originale di questo articolo. Prima di accettare qualsiasi risultato sulle ROS ottenuto con il blu di metilene, controllate quali righe hanno compilato gli autori e quali hanno tralasciato.
| Controllo | Cosa esclude | Come eseguirlo |
|---|---|---|
| Buio rispetto a illuminazione definita | Confusione tra effetti redox dello stato fondamentale e fotochimica | Stesso colorante, stessa matrice, un gruppo al buio e uno sottoposto a una dose luminosa misurata |
| Sonda più luce, senza colorante | Fotochimica della sonda | Illuminare solo la sonda; qualsiasi segnale costituisce il livello di base dell'artefatto |
| Colorante più luce, senza cellule o substrato | Confusione tra ROS cellulari e ROS intrinseche del colorante | Matrice priva di cellule; stabilisce cosa genera il colorante da solo |
| Catalasi | Segnale non dovuto al perossido in una prova con Amplex | Il segnale dovrebbe diminuire; tenere presente che il colorante illuminato può danneggiare la catalasi stessa |
| SOD | Partecipazione del superossido | Un aumento del segnale Amplex indica il coinvolgimento del superossido a monte, non un malfunzionamento del saggio |
| Chelante del ferro, come la deferoxamina | Chimica dei radicali idrossilici di tipo Fenton | Verifica se il ferro attivo dal punto di vista redox contribuisce al segnale di DCFH o della trappola di spin |
| Standard di perossido nella matrice completa | Fluorescenza non calibrata | Aggiunte note di perossido con identica concentrazione di colorante e identiche condizioni ottiche |
Ne deriva una regola pratica di lettura. Amplex con perossidasi, calibrato e verificato con catalasi, fornisce evidenze sul perossido. DCFDA fornisce evidenze sull'ossidazione non specifica della sonda e nulla di più. L'intrappolamento di spin con controlli basati su scavenger fornisce evidenze sull'identità dei radicali. Il consumo di ossigeno fornisce evidenze sul flusso. Una frase che afferma più di quanto il suo saggio possa sostenere, per quanto sia scritta con sicurezza, è una frase sulla sonda, non sul colorante. Le discussioni correlate sulla dipendenza dalla dose e sull'intervallo ormetico, sul flusso elettronico mitocondriale, sulle interferenze nei saggi con campioni colorati e sugli artefatti dovuti all'illuminazione in microscopia approfondiscono ciascuno di questi punti, e ciascuna rimane valida una volta sostituito il relativo riferimento segnaposto.