
Artigo
Medición das especies reactivas do osíxeno en experimentos con azul de metileno
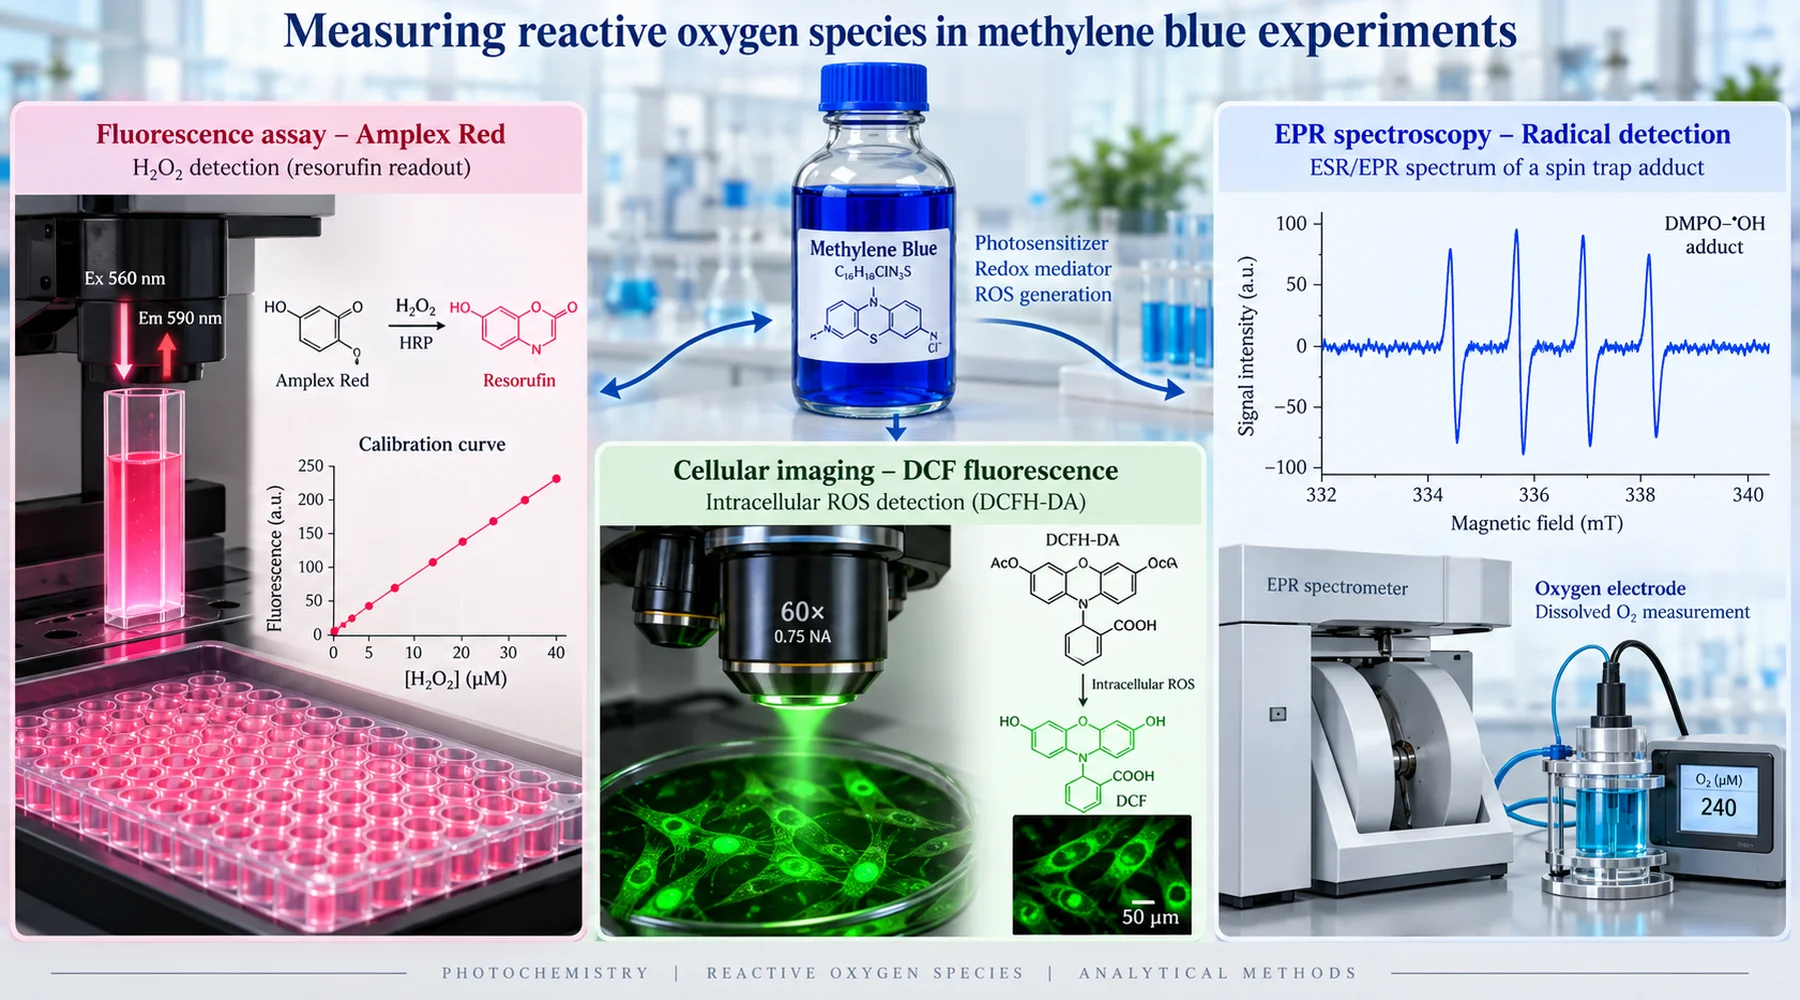
Dous laboratorios realizan o que cada un denomina un experimento antioxidante con azul de metileno. Un informa de que o colorante suprime as especies reactivas do osíxeno. O outro informa de que as xera. Ambos presentan curvas de dose-resposta claras. Ambos son sinceros. A diferenza non é fraude nin incompetencia. É que os dous grupos mediron cousas distintas baixo iluminación distinta, con sondas que responden a preguntas distintas, e despois describiron ambas as respostas coa mesma palabra: ROS.
O azul de metileno é unha molécula difícil de medir con precisión porque participa na química que se supón que debe observar. Na escuridade transporta electróns entre doadores e aceptores e volve á súa forma inicial, listo para repetir o ciclo. Baixo a luz convértese nun fotosensibilizador, alcanzando un estado triplete excitado desde o que pode transferir enerxía ao osíxeno para producir osíxeno singlete ou transferir electróns para producir radicais e peróxido de hidróxeno. Calquera sonda introducida nese sistema pode ser oxidada, reducida, decolorada ou enmascarada opticamente polo propio colorante. Por iso, a primeira pregunta ante calquera lectura de ROS nunca é cal é o valor. É que detecta realmente o ensaio e que lle fai o colorante ao ensaio.
Amplex Red: un ensaio calibrado de peróxido de hidróxeno
A combinación de azul de metileno e Amplex Red é a máis defendible nesta literatura, cando se prepara correctamente. A química é específica: a peroxidase de ravo picante utiliza peróxido de hidróxeno para oxidar o substrato Amplex e convertelo nun produto fluorescente, a resorufina, cunha estequiometría de aproximadamente un a un. O peróxido da mostra convértese en fluorescencia no detector. Ningún outro membro da familia clásica das ROS impulsa directamente esa reacción.
A vantaxe decisiva é a calibración. Un investigador coidadoso analiza patróns de peróxido coñecidos no mesmo tampón, coas mesmas concentracións de peroxidase e substrato, o mesmo tempo de incubación e a mesma configuración óptica, e despois compara as lecturas das mostras con esa curva. No estudo con mitocondrias cerebrais illadas que serve de base a este método, os autores fixeron exactamente iso: engadiron cantidades coñecidas de peróxido ao final de cada ensaio e expresaron os resultados como taxas en picomoles por minuto por miligramo de proteína, no canto de unidades arbitrarias de fluorescencia. Iso é o que converte un resplandor nunha medición.
Tres detalles dese estudo merecen ser imitados. Primeiro, os autores verificaron o sinal con catalase, que destrúe o peróxido. O aumento da fluorescencia inducido polo azul de metileno detívose ao engadir catalase, confirmando que o sinal correspondía ao peróxido e non a un artefacto óptico. Segundo, probaron directamente o efecto da iluminación obturando o feixe de excitación para que as mostras recibisen unha oitava parte da dose de luz normal, e o sinal só diminuíu un nove por cento. Máis do noventa por cento do peróxido que comunicaron era independente da luz de medición. Terceiro, mediron por separado a eliminación do peróxido cun eléctrodo e descubriron que o colorante aumentaba a produción e ralentizaba a eliminación. Unha sonda que só indicase a fluorescencia neta tería mesturado eses dous efectos.
O ensaio segue tendo puntos débiles, e o azul de metileno pon de manifesto varios deles. O colorante absorbe amplamente na mesma rexión vermella na que emite a resorufina, polo que, a concentracións elevadas de colorante, a mostra pode enmascarar o seu propio sinal mediante efectos de filtro interno. Por tanto, os patróns deben conter a mesma concentración de colorante que as mostras. Amplex Red tamén pode fotooxidarse por si só, e o seu produto, a resorufina, pode entrar en ciclos fotorredox que xeran superóxido e peróxido, algo especialmente importante cando o experimento tamén ilumina un fotosensibilizador. A solución práctica é irradiar primeiro as mostras de azul de metileno e analizar alícuotas con reactivos Amplex na escuridade, no canto de iluminar xuntos o colorante e a sonda. Por último, a superóxido dismutase non se limita a suprimir un sinal de Amplex: converter o superóxido en peróxido pode aumentalo. Un control con SOD que aumenta a fluorescencia non fallou. Identificou o superóxido como unha especie situada nunha etapa anterior da reacción.
DCFDA: un indicador inespecífico de oxidación
A combinación de azul de metileno e DCFDA é a orixe da maior parte da confusión. DCFH-DA é un precursor que se introduce nas células. As esterases do interior celular retiran os seus grupos acetato e deixan DCFH non fluorescente, cuxa oxidación produce DCF fluorescente. A lista de substancias que o oxidan é longa: radicais hidroxilo, intermediarios de peroxidase e hemo, dióxido de nitróxeno, ácido hipocloroso e radicais derivados do peroxinitrito. O peróxido de hidróxeno por si só non o oxida directamente a unha velocidade útil; a fluorescencia dependente do peróxido xeralmente require a participación de ferro, proteínas con hemo ou reaccións de peroxidase.
A crítica que toda sección de métodos debería citar procede da análise de DCFH como sonda realizada por Kalyanaraman e os seus colaboradores, resumida no estudo de mitocondrias cerebrais que rexeitou DCFDA por este motivo. Estes investigadores demostraron que o colorante reacciona lentamente, cunha estequiometría non caracterizada, sen unha calibración válida e con compostos que non son ROS. A sonda tamén amplifica o que mide: a oxidación de DCFH por perda dun electrón produce un radical DCF que reacciona co osíxeno para formar superóxido, que se dismuta e produce peróxido adicional. A lectura fabrica en parte a química da que informa.
Nada disto fai que DCFDA sexa inútil. Convérteo nunha ferramenta de cribado, non de identificación. Un aumento da fluorescencia de DCF significa que aumentou a oxidación da sonda dependente de oxidantes. Non significa que aumentase o peróxido, e desde logo non significa que aumentasen as ROS totais, unha cantidade que ningunha sonda individual mide. Traballos anteriores sobre o azul de metileno que se baseaban na oxidación de DCF por riba dun micromolar comunicaron efectos prooxidantes, mentres que outros sistemas da mesma época mostraron protección fronte á morte celular inducida polo peróxido. Ambas as observacións poden ser certas para o mesmo colorante en contextos redox distintos, e o resultado de DCF por si só non permite saber que oxidante produciu o sinal. A importancia do traballo anterior con mitocondrias cerebrais radica en que substituíu este cribado por unha medición calibrada do peróxido e constatou directamente a carga: mesmo cen nanomolar de colorante multiplicaron varias veces a liberación de peróxido en todos os substratos e estados respiratorios probados.
DCFDA presenta outra trampa específica do azul de metileno. O colorante ten unha cor intensa e é activo en reaccións redox, polo que pode reducir a fluorescencia por decoloración, atenuar a emisión ou oxidar os compoñentes químicos da sonda independentemente das ROS celulares. Un control sen células, con colorante e sonda, non é un adorno opcional. É o experimento que permite saber se o colorante interacciona coa sonda.
Atrapamento de espín e consumo de osíxeno: identidade e fluxo
Mentres as sondas fluorescentes indican que apareceu algo oxidable, a resonancia de espín electrónico con trampas de espín proporciona información máis próxima á súa identidade. O estudo clásico da fotoquímica do azul de metileno utilizou ESR para detectar o radical ascorbato a partir de colorante, ascorbato e luz, e despois demostrou a formación de peróxido en experimentos de consumo de osíxeno e a formación de radicais hidroxilo catalizada polo ferro en ensaios de atrapamento de espín. Cada técnica respondeu á pregunta que as outras non podían resolver: ESR proporcionou a identidade dos radicais, o consumo de osíxeno proporcionou o fluxo da reacción independentemente de calquera sonda fluorescente, e a combinación mostrou que tanto as vías do osíxeno singlete como as dos radicais funcionaban no mesmo sistema iluminado.
Aquel resultado de 1984 segue sendo unha advertencia. Con iluminación e un axente redutor presentes, o colorante xeraba peróxido e, en presenza de ferro, o sistema producía o radical hidroxilo, a especie máis reactiva do conxunto. Os autores relacionaron isto co ascorbato no ollo e cuestionaron o uso oftálmico indiscriminado. Os lectores actuais deben ter en conta as condicións: luz máis redutor máis ferro. Se se elimina calquera delas, a vía debilítase ou desaparece.
Os eléctrodos de osíxeno xustifican o seu uso doutro xeito. Un eléctrodo de tipo Clark mide o consumo neto de osíxeno, o que establece que a química redox impulsada polo colorante está a consumir osíxeno molecular e proporciona datos cinéticos que ningún artefacto de fluorescencia pode falsear. Non identifica o produto. A formación de peróxido, superóxido e auga, así como a desactivación do osíxeno singlete, consomen osíxeno. O fluxo sen identidade é tan incompleto como a identidade sen fluxo, polo que os traballos sólidos combinan o eléctrodo cun ensaio calibrado de peróxido ou cunha trampa.
Por que os resultados antioxidantes son contraditorios
Ao comparar as tres lecturas, as aparentes contradicións da literatura sobre o azul de metileno explícanse polas diferenzas entre métodos e por tres feitos biolóxicos.
Primeiro, o colorante é á vez un transportador de electróns e unha fonte de peróxido. Ao desviar os electróns dos sitios respiratorios nos que o osíxeno se convertería en superóxido, pode reducir unha ROS mentres a súa forma reducida reduce o osíxeno directamente a peróxido, aumentando outra. Por tanto, un laboratorio que estude a química redox mitocondrial e o seu papel como vía alternativa debería esperar respostas dependentes da sonda: unha lectura sensible ao superóxido diminúe mentres unha lectura de peróxido aumenta na mesma cubeta.
Segundo, o peróxido a doses baixas é un sinal, non só unha fonte de dano. O estudo con mitocondrias cerebrais de rato que seguiu ao traballo anterior atopou xeración de peróxido con tan só cincuenta nanomolar de colorante, sen lesións no ADN mitocondrial a niveis terapéuticos, con protección fronte ás lesións inducidas pola rotenona tras o pretratamento. Só a cen micromolar, moi por riba do intervalo terapéutico, o colorante danou determinados fragmentos de ADN, e a luz vermella xunto con vinte micromolar de colorante produciu osíxeno singlete que danou todos os fragmentos probados. O mecanismo proposto é hormético: unha produción moderada de peróxido activa as defensas antioxidantes vinculadas a Nrf2 e a bioxénese mitocondrial, de xeito que unha lectura prooxidante a curto prazo precede un resultado antioxidante a máis longo prazo. Un ensaio lido ao cabo dunha hora e outro lido ao cabo dun día poden discrepar porque a bioloxía cambiou entre ambos.
Terceiro, a luz determina incluso que molécula está presente. A iluminación desmetila o colorante e dá lugar a Azure B e produtos relacionados, e a lámpada do microscopio sobre unha placa é suficiente para fotosensibilizalo. Os experimentos na escuridade e con iluminación son experimentos distintos, e a sección de controis de iluminación e manipulación do colorante de calquera protocolo debería tratalos como tales.
Un conxunto mínimo de controis e como interpretar calquera afirmación
A comparación seguinte é o recurso de referencia orixinal deste artigo. Antes de aceptar calquera resultado de ROS con azul de metileno, comprobe que filas cubriron os autores e cales omitiron.
| Control | Que descarta | Como realizalo |
|---|---|---|
| Escuridade fronte a iluminación definida | Confusión entre os efectos redox no estado fundamental e a fotoquímica | Mesmo colorante, mesma matriz, un grupo na escuridade e outro baixo unha dose de luz medida |
| Sonda máis luz, sen colorante | Fotoquímica da sonda | Iluminar só a sonda; calquera sinal é o nivel basal do artefacto |
| Colorante máis luz, sen células nin substrato | Confusión entre ROS celulares e ROS intrínsecas do colorante | Matriz sen células; establece o que xera o colorante por si só |
| Catalase | Sinal non atribuíble ao peróxido nun ensaio con Amplex | O sinal debe diminuír; teña en conta que o colorante iluminado pode danar a propia catalase |
| SOD | Participación do superóxido | Un aumento do sinal de Amplex implica a presenza de superóxido nunha etapa anterior da reacción, non un fallo do ensaio |
| Quelante de ferro, como a deferoxamina | Química do hidroxilo de tipo Fenton | Comproba se o ferro activo en reaccións redox é responsable do sinal de DCFH ou da trampa |
| Patróns de peróxido na matriz completa | Fluorescencia sen calibrar | Adicións coñecidas de peróxido cunha concentración de colorante e unha configuración óptica idénticas |
Disto despréndese unha regra práctica de interpretación. Amplex con peroxidase, calibrado e cunha comprobación mediante catalase, proporciona evidencias sobre o peróxido. DCFDA proporciona evidencias sobre a oxidación inespecífica da sonda e nada máis. O atrapamento de espín con controis de captadores proporciona evidencias sobre a identidade dos radicais. O consumo de osíxeno proporciona evidencias sobre o fluxo. Unha frase que afirma máis do que o seu ensaio pode sustentar, por moi segura que pareza, é unha frase sobre a sonda, non sobre o colorante. As discusións relacionadas sobre a dependencia da dose e o intervalo hormético, o fluxo de electróns mitocondrial, a interferencia nos ensaios con mostras tinguidas e os artefactos de iluminación en microscopía amplían cada un destes puntos, e cada un segue sendo válido unha vez substituída a súa referencia provisional.