
Article
Mesurer les espèces réactives de l’oxygène dans les expériences au bleu de méthylène
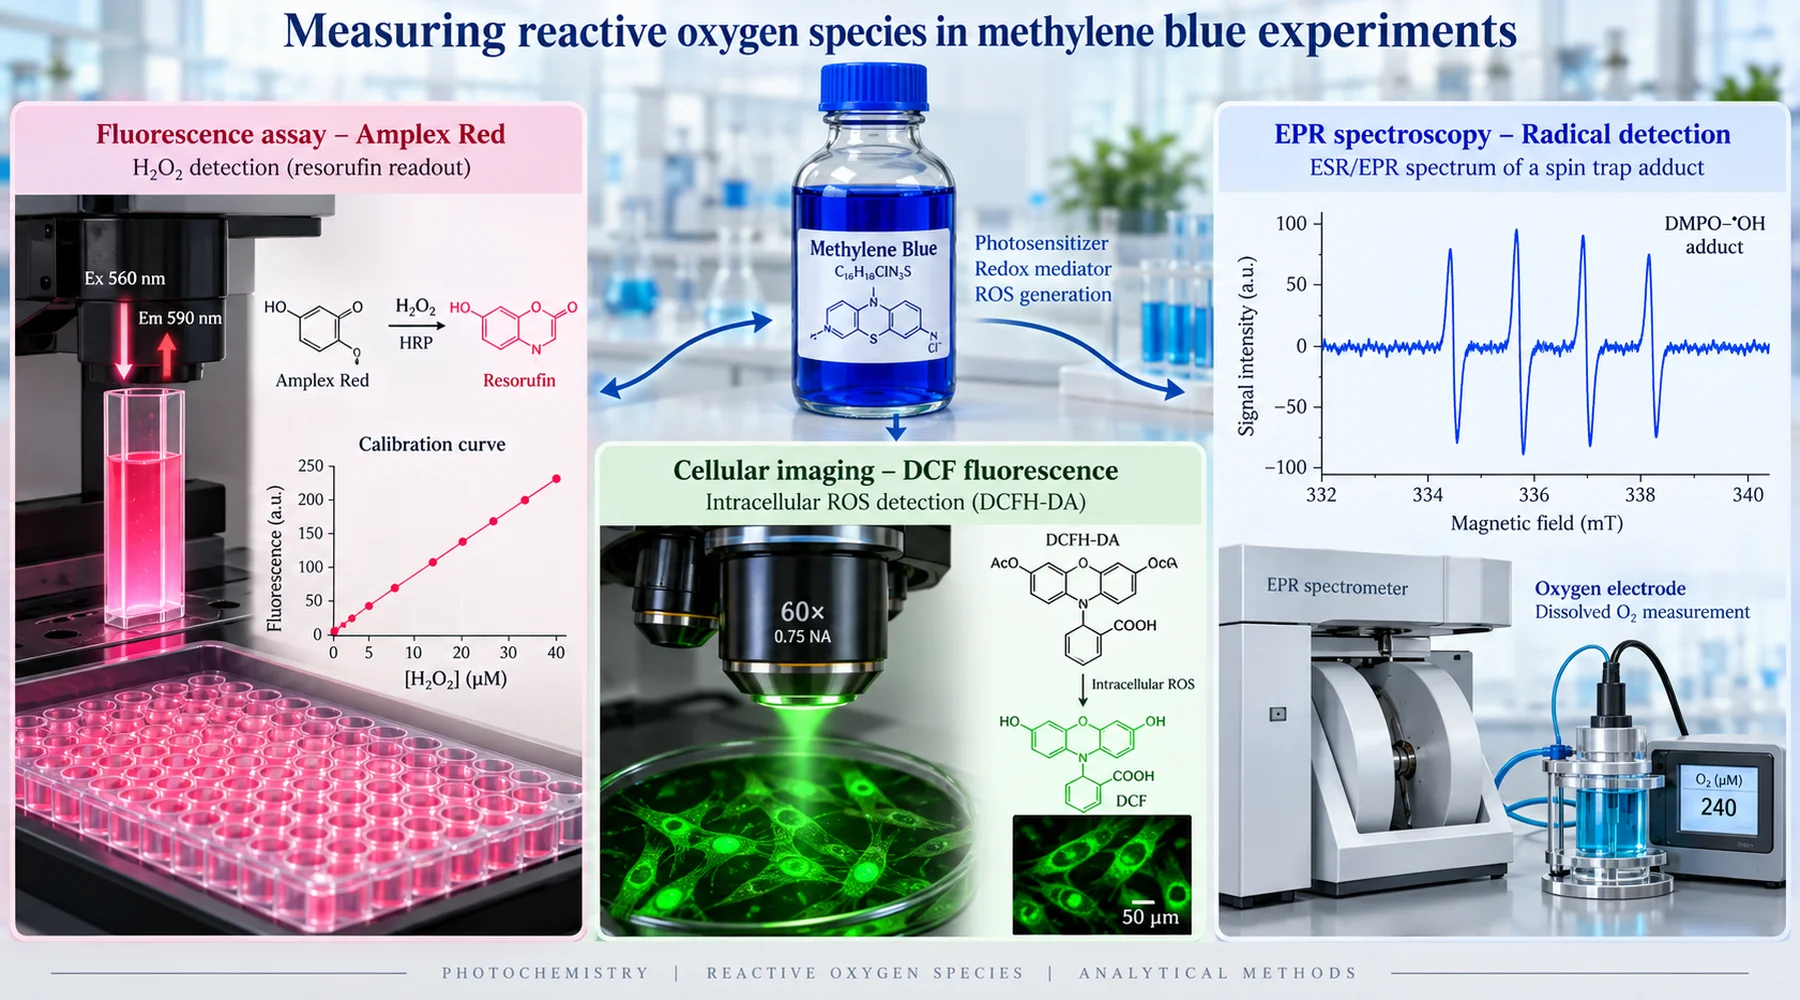
Deux laboratoires réalisent chacun ce qu’ils appellent une expérience sur l’effet antioxydant du bleu de méthylène. L’un rapporte que le colorant réduit les espèces réactives de l’oxygène. L’autre rapporte qu’il en génère. Tous deux présentent des courbes dose-réponse nettes. Tous deux sont de bonne foi. La différence ne tient ni à la fraude ni à l’incompétence. Elle vient du fait que les deux groupes ont mesuré des phénomènes différents sous des conditions d’éclairage différentes, avec des sondes répondant à des questions différentes, puis ont décrit les deux résultats avec le même terme : ROS.
Le bleu de méthylène est une molécule difficile à mesurer avec précision parce qu’il participe à la chimie qu’il est censé permettre d’observer. Dans l’obscurité, il transfère des électrons entre donneurs et accepteurs puis revient à sa forme initiale, prêt à recommencer le cycle. Sous illumination, il devient un photosensibilisateur et atteint un état triplet excité à partir duquel il peut transférer de l’énergie à l’oxygène pour produire de l’oxygène singulet, ou transférer des électrons pour produire des radicaux et du peroxyde d’hydrogène. Toute sonde introduite dans ce système peut être oxydée, réduite, photoblanchie ou masquée optiquement par le colorant lui-même. La première question posée devant toute mesure des ROS n’est donc jamais de savoir quelle est la valeur obtenue. Il faut d’abord savoir ce que le test détecte réellement et ce que le colorant fait au test.
Amplex Red : un test étalonné du peroxyde d’hydrogène
L’association bleu de méthylène et Amplex Red est la plus défendable dans cette littérature lorsqu’elle est correctement mise en œuvre. La chimie est spécifique : la peroxydase de raifort utilise le peroxyde d’hydrogène pour oxyder le substrat Amplex en un produit fluorescent, la résorufine, selon une stœchiométrie approximativement un pour un. Le peroxyde présent dans l’échantillon devient ainsi un signal fluorescent dans le détecteur. Aucun autre membre de la famille canonique des ROS ne provoque directement cette réaction.
L’avantage décisif est l’étalonnage. Un expérimentateur rigoureux analyse des étalons contenant des concentrations connues de peroxyde dans le même tampon, avec les mêmes concentrations de peroxydase et de substrat, le même temps d’incubation et les mêmes réglages optiques, puis interprète les échantillons à partir de cette courbe. Dans l’étude sur des mitochondries cérébrales isolées qui constitue la référence pour cette méthode, les auteurs ont procédé exactement ainsi, en ajoutant des quantités connues de peroxyde à la fin de chaque essai, et les résultats sont exprimés sous forme de vitesses en picomoles par minute par milligramme de protéine plutôt qu’en unités arbitraires de fluorescence. C’est ce qui transforme une simple émission lumineuse en mesure.
Trois éléments de cette étude méritent d’être reproduits. Premièrement, les auteurs ont vérifié le signal avec de la catalase, qui détruit le peroxyde. L’augmentation de fluorescence induite par le bleu de méthylène s’est arrêtée lors de l’ajout de catalase, confirmant que le signal provenait du peroxyde plutôt que d’un artefact optique. Deuxièmement, ils ont directement testé l’effet de l’illumination en obturant le faisceau d’excitation afin que les échantillons ne reçoivent qu’un huitième de la dose lumineuse normale ; le signal n’a diminué que de neuf pour cent. Plus de quatre-vingt-dix pour cent du peroxyde rapporté était donc indépendant de la lumière utilisée pour la mesure. Troisièmement, ils ont mesuré séparément l’élimination du peroxyde à l’aide d’une électrode et constaté que le colorant augmentait à la fois sa production et ralentissait son élimination. Une sonde ne mesurant que la fluorescence nette aurait confondu ces deux effets.
Le test présente néanmoins des modes de défaillance, et le bleu de méthylène en révèle plusieurs. Le colorant absorbe largement dans la même région rouge où la résorufine émet ; à forte concentration de colorant, l’échantillon peut donc masquer son propre signal par des effets de filtre interne. Les étalons doivent par conséquent contenir la même concentration de colorant que les échantillons. Amplex Red peut également se photo-oxyder spontanément, et son produit, la résorufine, peut entrer dans un cycle photorédox générant du superoxyde et du peroxyde, ce qui devient particulièrement important lorsque l’expérience illumine également un photosensibilisateur. La solution pratique consiste à irradier d’abord les échantillons de bleu de méthylène, puis à analyser des aliquotes avec les réactifs Amplex dans l’obscurité, plutôt que d’éclairer simultanément le colorant et la sonde. Enfin, la superoxyde dismutase ne réduit pas nécessairement un signal Amplex : la conversion du superoxyde en peroxyde peut au contraire l’augmenter. Un contrôle SOD qui accroît la fluorescence n’a pas échoué. Il a identifié le superoxyde comme une espèce située en amont.
DCFDA : un indicateur non spécifique de l’oxydation
L’association bleu de méthylène et DCFDA est à l’origine de la majeure partie de la confusion. Le DCFH-DA est un précurseur destiné au chargement cellulaire. À l’intérieur de la cellule, des estérases retirent ses groupes acétate pour former le DCFH non fluorescent, et l’oxydation du DCFH produit le DCF fluorescent. La liste des espèces capables de l’oxyder est longue : radicaux hydroxyle, intermédiaires de peroxydases et de l’hème, dioxyde d’azote, acide hypochloreux et radicaux dérivés du peroxynitrite. Le peroxyde d’hydrogène seul ne l’oxyde pas directement à une vitesse utile ; une fluorescence dépendante du peroxyde nécessite généralement la présence de fer, de protéines héminiques ou d’une chimie faisant intervenir une peroxydase.
La critique que toute section méthodologique devrait citer provient de l’analyse du DCFH comme sonde par Kalyanaraman et ses collègues, telle qu’elle est résumée dans l’étude sur les mitochondries cérébrales qui a écarté le DCFDA pour cette raison. Ils ont montré que le colorant réagit lentement, avec une stœchiométrie non caractérisée, sans étalonnage valide et avec des composés qui ne sont pas des ROS. La sonde amplifie également ce qu’elle mesure : l’oxydation du DCFH par transfert d’un électron produit un radical DCF qui réagit avec l’oxygène pour former du superoxyde, lequel se dismute ensuite en peroxyde supplémentaire. La mesure contribue donc en partie à produire la chimie qu’elle rapporte.
Cela ne rend pas le DCFDA inutile. Cela en fait un outil de dépistage, et non d’identification. Une augmentation de la fluorescence du DCF signifie que l’oxydation de la sonde dépendante d’oxydants a augmenté. Elle ne signifie pas que le peroxyde a augmenté, et encore moins que l’ensemble des ROS a augmenté, quantité qu’aucune sonde unique ne mesure. Des travaux antérieurs sur le bleu de méthylène reposant sur l’oxydation du DCF au-dessus d’un micromolaire ont rapporté des effets pro-oxydants, tandis que d’autres systèmes étudiés à la même époque ont rapporté une protection contre la mort cellulaire induite par le peroxyde. Ces deux observations peuvent être vraies pour le même colorant dans des contextes rédox différents, et le résultat obtenu avec le DCF ne permet pas à lui seul de déterminer quel oxydant a produit le signal. L’intérêt des travaux antérieurs sur les mitochondries cérébrales est qu’ils ont remplacé ce dépistage par une mesure étalonnée du peroxyde et ont mesuré directement la charge : même cent nanomolaires de colorant augmentaient de plusieurs fois la libération de peroxyde pour tous les substrats et tous les états respiratoires testés.
Le DCFDA présente un autre piège spécifique au bleu de méthylène. Le colorant est fortement coloré et rédox-actif ; il peut donc photoblanchir la fluorescence, inhiber l’émission ou oxyder la chimie de la sonde indépendamment des ROS cellulaires. Un contrôle acellulaire contenant le colorant et la sonde, sans cellules, n’est pas un élément décoratif facultatif. C’est l’expérience qui permet de savoir si le colorant interagit directement avec la sonde.
Piégeage de spin et consommation d’oxygène : identité et flux
Alors que les sondes fluorescentes indiquent qu’une espèce oxydable est apparue, la résonance de spin électronique associée à des pièges à spin fournit une information plus proche de son identité. L’étude classique sur la photochimie du bleu de méthylène a utilisé l’ESR pour détecter le radical ascorbate produit à partir du colorant, de l’ascorbate et de la lumière, puis a démontré la formation de peroxyde dans des expériences de consommation d’oxygène et la formation de radicaux hydroxyle catalysée par le fer lors d’essais de piégeage de spin. Chaque technique répondait à une question à laquelle les autres ne pouvaient répondre : l’ESR indiquait l’identité du radical, la consommation d’oxygène mesurait le flux réactionnel indépendamment de toute sonde fluorescente, et leur combinaison montrait que les voies faisant intervenir l’oxygène singulet et les radicaux fonctionnaient simultanément dans le même système illuminé.
Ce résultat de 1984 constitue toujours un avertissement. En présence d’une illumination et d’un agent réducteur, le colorant générait du peroxyde et, en présence de fer, le système produisait le radical hydroxyle, l’espèce la plus réactive de cet ensemble. Les auteurs ont relié ce phénomène à la présence d’ascorbate dans l’œil et remis en question un usage ophtalmique sans précaution. Les lecteurs actuels doivent tenir compte des conditions : lumière plus réducteur plus fer. Supprimez l’un de ces éléments et la voie s’affaiblit ou disparaît.
Les électrodes à oxygène ont une utilité différente. Une électrode de type Clark mesure la consommation nette d’oxygène, ce qui établit que la chimie rédox entraînée par le colorant consomme de l’oxygène moléculaire et fournit une cinétique qu’aucun artefact de fluorescence ne peut imiter. Elle n’identifie cependant pas le produit. Le peroxyde, le superoxyde, l’eau et la désactivation de l’oxygène singulet impliquent tous une consommation d’oxygène. Un flux sans identité est aussi incomplet qu’une identité sans flux, raison pour laquelle les études les plus solides associent l’électrode à un test étalonné du peroxyde ou à un piège.
Pourquoi les résultats antioxydants sont contradictoires
Placez les trois types de mesures côte à côte et les contradictions apparentes de la littérature sur le bleu de méthylène se résolvent en différences méthodologiques auxquelles s’ajoutent trois faits biologiques.
Premièrement, le colorant est à la fois une navette d’électrons et une source de peroxyde. En détournant les électrons des sites respiratoires où l’oxygène serait autrement converti en superoxyde, il peut réduire un type de ROS, tandis que sa forme réduite réduit directement l’oxygène en peroxyde et en augmente un autre. Un laboratoire étudiant la chimie rédox mitochondriale et son rôle de voie de contournement doit donc s’attendre à des réponses dépendant de la sonde : une mesure sensible au superoxyde diminue tandis qu’une mesure du peroxyde augmente dans la même cuvette.
Deuxièmement, à faible dose, le peroxyde constitue un signal et pas seulement une source de dommages. L’étude sur les mitochondries cérébrales de souris qui a suivi les travaux précédents a observé une production de peroxyde à partir de seulement cinquante nanomolaires de colorant sans lésions de l’ADN mitochondrial aux niveaux thérapeutiques, ainsi qu’une protection contre les lésions induites par la roténone après prétraitement. Ce n’est qu’à cent micromolaires, bien au-dessus de la plage thérapeutique, que le colorant a endommagé certains fragments d’ADN, tandis que la lumière rouge associée à vingt micromolaires de colorant a produit de l’oxygène singulet qui a endommagé tous les fragments testés. Le mécanisme proposé est hormétique : une production modérée de peroxyde déclenche des défenses antioxydantes liées à Nrf2 et la biogenèse mitochondriale, de sorte qu’une mesure pro-oxydante à court terme précède un résultat antioxydant à plus long terme. Un test effectué après une heure et un autre effectué après une journée peuvent donner des résultats divergents parce que la biologie a changé entre les deux mesures.
Troisièmement, la lumière détermine quelle molécule est effectivement présente. L’illumination déméthyle le colorant vers Azure B et des produits apparentés, et la lampe d’un microscope dirigée sur une boîte de culture suffit à le photosensibiliser. Les expériences réalisées dans l’obscurité et sous illumination sont des expériences différentes, et la section consacrée aux contrôles de l’illumination et de la manipulation du colorant dans tout protocole doit les traiter comme telles.
Ensemble minimal de contrôles et méthode de lecture de toute affirmation
La comparaison ci-dessous constitue la ressource de référence originale de cet article. Avant d’accepter un résultat concernant les ROS et le bleu de méthylène, vérifiez quelles lignes les auteurs ont renseignées et lesquelles ils ont omises.
| Contrôle | Ce qu’il permet d’exclure | Comment le réaliser |
|---|---|---|
| Obscurité versus illumination définie | Confusion entre les effets rédox à l’état fondamental et la photochimie | Même colorant, même matrice, un bras dans l’obscurité, l’autre sous une dose lumineuse mesurée |
| Sonde plus lumière, sans colorant | Photochimie de la sonde | Illuminer la sonde seule ; tout signal constitue la ligne de base des artefacts |
| Colorant plus lumière, sans cellules ni substrat | ROS cellulaires versus intrinsèques au colorant | Matrice acellulaire ; établit ce que le colorant génère à lui seul |
| Catalase | Signal non lié au peroxyde dans un test Amplex | Le signal doit diminuer ; noter que le colorant illuminé peut lui-même endommager la catalase |
| SOD | Participation du superoxyde | Une augmentation du signal Amplex implique du superoxyde en amont, et non un échec du test |
| Chélateur du fer tel que la déféroxamine | Chimie hydroxyle de type Fenton | Teste si le fer rédox-actif est à l’origine du signal DCFH ou du piège |
| Étalons de peroxyde dans la matrice complète | Fluorescence non étalonnée | Ajouts connus de peroxyde avec une concentration de colorant et des conditions optiques identiques |
Une règle pratique de lecture en découle. Amplex avec peroxydase, étalonné et vérifié avec de la catalase, fournit des données sur le peroxyde. Le DCFDA renseigne sur une oxydation non spécifique de la sonde, rien de plus. Le piégeage de spin avec des contrôles utilisant des piégeurs fournit des données sur l’identité des radicaux. La consommation d’oxygène renseigne sur le flux. Une phrase qui affirme davantage que ce que son test permet d’établir, quelle que soit l’assurance avec laquelle elle est formulée, décrit la sonde et non le colorant. Les discussions connexes sur la dépendance à la dose et la plage hormétique, le flux d’électrons mitochondrial, les interférences des tests dans les échantillons colorés et les artefacts liés à l’illumination en microscopie approfondissent chacun de ces points, lesquels restent valides une fois leur référence provisoire remplacée.