
Article
Mesurer les effets mitochondriaux du bleu de méthylène : oxygène, ATP et potentiel membranaire
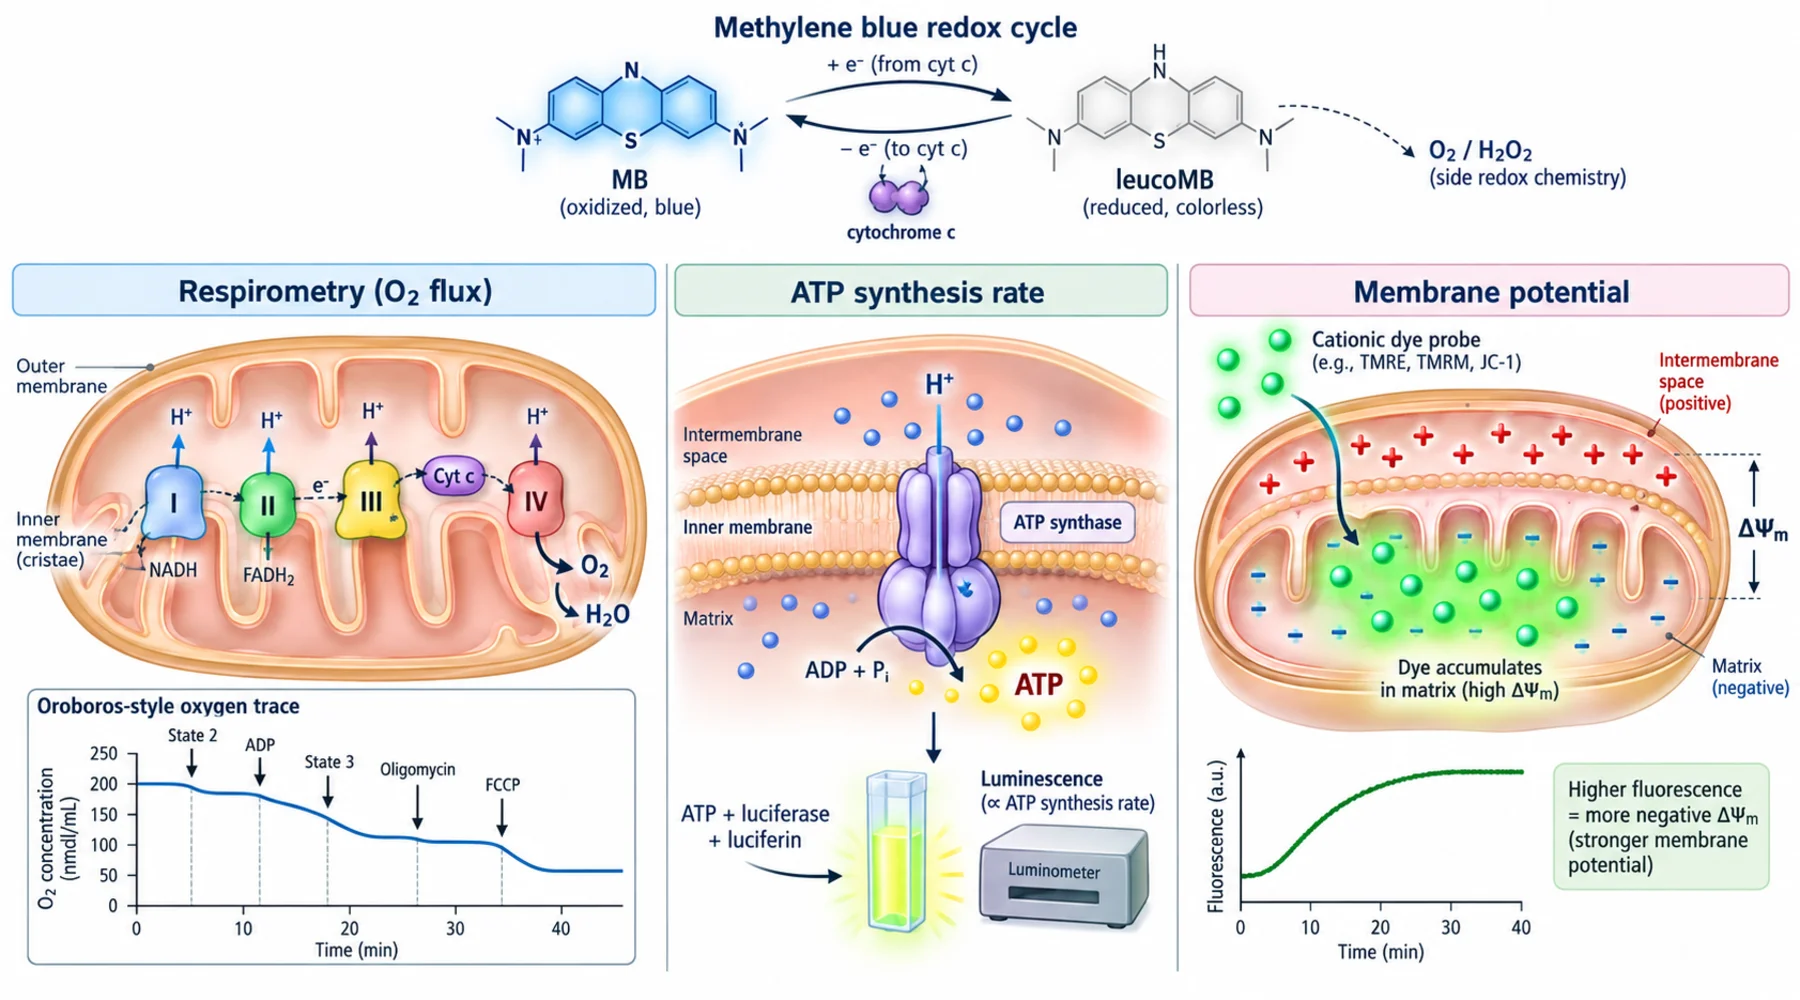
Supposons qu’un laboratoire ajoute du bleu de méthylène à des mitochondries dont la respiration est altérée et observe une augmentation de la consommation d’oxygène. La formulation naturelle serait d’écrire que le colorant a restauré la fonction mitochondriale. Cette formulation peut être erronée. Le flux d’oxygène, la synthèse d’ATP et le potentiel membranaire sont trois concepts distincts. Ils partagent le même organite comme la sauvegarde, la synchronisation et le partage partagent le même dossier cloud : ils sont liés, mais régis par des règles différentes. Confondre l’un avec l’autre invalide l’interprétation, même lorsque chaque mesure est techniquement correcte.
Le bleu de méthylène favorise cette confusion parce qu’il participe au système qu’il mesure. C’est un cycleur redox qui accepte des électrons en amont et les cède en aval, un cation lipophile qui s’accumule dans les mitochondries énergisées et un composé fortement bleu qui absorbe et émet de la lumière dans les mêmes bandes que des sondes courantes. Une seule mesure ne peut pas porter toute cette charge interprétative. L’approche fiable, mise en évidence dans les études mitochondriales de Budapest, consiste à mesurer le flux d’oxygène, le taux de synthèse d’ATP, le potentiel membranaire et la libération de peroxyde d’hydrogène, avec des contrôles spécifiques au colorant à chaque étape.
La respirométrie mesure le flux d’oxygène, pas la production d’énergie
La respirométrie à haute résolution, qu’elle soit réalisée avec un Oroboros Oxygraph ou un analyseur de flux extracellulaire Seahorse, rapporte une seule chose : la vitesse à laquelle l’oxygène est réduit. Elle n’indique pas combien de protons ont été pompés par électron, quelle part du gradient a été conservée ni si l’ATP synthase l’a utilisé.
Le vocabulaire compte. Dans des mitochondries isolées, un substrat sans ADP donne la respiration de fuite, un substrat avec de l’ADP saturant donne la capacité de phosphorylation oxydative et une titration par découplant donne la capacité maximale de transfert d’électrons. Dans les cellules intactes, les équivalents Seahorse sont la respiration basale, la respiration liée à l’ATP sensible à l’oligomycine, la fuite de protons, la respiration maximale définie par FCCP et la consommation d’oxygène non mitochondriale résistante à la roténone plus l’antimycine. Qualifier les résultats Seahorse de State 3 et State 4 leur attribue une précision que cette préparation ne permet pas, comme le montre clairement le cadre Agilent Mito Stress Test.
Le bleu de méthylène rompt le lien intuitif entre davantage d’oxygène et davantage d’énergie. Dans des mitochondries cérébrales isolées de cobaye, 100 nM to 1 uM de colorant ont augmenté la consommation d’oxygène au repos avec les substrats glutamate plus malate, succinate et alpha-glycerophosphate, avec une hausse d’environ 64 percent sous alpha-glycerophosphate, tandis que la respiration stimulée par l’ADP dans les mitochondries saines est restée essentiellement inchangée, selon l’étude sur les mitochondries cérébrales isolées. Comme la fuite a augmenté alors que le flux stimulé par l’ADP est resté stable, le rapport de contrôle respiratoire calculé diminue. Cette baisse ne signifie pas que le colorant a endommagé les mitochondries. Elle signifie que le colorant a ajouté un cycle redox consommateur d’oxygène à la respiration normale. Un test de consommation d’oxygène au bleu de méthylène qui ne rapporte que cette augmentation a mesuré une chimie réelle sans rien dire sur la conservation de l’énergie.
Les expériences de restauration montrent le même écart à plus grande échelle. Lorsque le Complex I était bloqué, le flux d’oxygène a été restauré d’environ trois fois tandis que la synthèse d’ATP ne l’a été que d’environ 1.5-fold. Davantage d’oxygène a atteint l’électrode. Une plus faible part a servi à produire de l’ATP. Toute affirmation d’une amélioration de la phosphorylation oxydative nécessite le volet ATP du bilan, idéalement exprimé sous forme de rapport ATP par oxygène avec la convention du dénominateur explicitée.
Les dosages d’ATP mesurent le taux de synthèse, que la teneur ne peut pas remplacer
Un dosage d’ATP répond à une autre question : quelle quantité d’ATP est générée par unité de temps. Une mesure cinétique, qu’il s’agisse de la luminescence de luciférase de luciole suivie pendant plusieurs minutes ou d’un dosage couplé hexokinase plus glucose-6-phosphate déshydrogénase lu à 340 nm, fournit un taux. Une mesure unique en point final de l’ATP total fournit une teneur, qui reflète la synthèse moins la consommation et renseigne peu, à elle seule, sur la phosphorylation oxydative.
Le groupe de Budapest a utilisé la méthode enzymatique couplée avec suppression de l’adénylate kinase et a constaté que le bleu de méthylène à 1 to 2 uM augmentait modestement mais significativement la production d’ATP dans les mitochondries traitées à la roténone et à l’antimycine. Il s’agit d’une restauration réelle, mais partielle. L’étude sur la toxicité du TEGDMA a obtenu un résultat de même nature dans un autre modèle : 5 mM du monomère dentaire TEGDMA a fait chuter la respiration liée au Complex I d’environ 286 à 28 unités de flux, et 2 uM de colorant l’a restaurée à environ 86.
Deux contrôles sont non négociables avec un composé redox coloré. Premièrement, utilisez de l’oligomycine pour déterminer quelle part de la synthèse d’ATP mesurée dépend de l’ATP synthase. Deuxièmement, réalisez une récupération après ajout dans un système sans cellules avec une quantité connue d’ATP, le réactif complet et les concentrations exactes de colorant utilisées, au minimum 0, 100 nM, 300 nM, 1 uM, and 2 uM. Le colorant peut absorber la lumière émise, inhiber l’enzyme rapporteur ou modifier la chimie redox du réactif, et les recommandations générales pour les dosages à la luciférase préconisent des contre-tests biochimiques précisément pour cette classe d’interférences. Ne supposez pas que 1 uM est exempt d’artefact sous prétexte que l’extinction est généralement plus importante à des concentrations supérieures.
Les sondes de potentiel membranaire mesurent la distribution du colorant, pas le flux
Safranine O, TMRM et TMRE, rhodamine 123 et JC-1 sont tous des cations perméables aux membranes. Ils s’accumulent dans la matrice chargée négativement conformément à l’équilibre électrochimique, de sorte que la fluorescence globale indique indirectement le potentiel selon la localisation de la sonde. Aucun d’eux ne mesure l’ATP ni le flux d’électrons.
Chaque sonde convient mieux à un type de préparation. Safranine O convient aux mitochondries isolées et aux cellules perméabilisées, généralement près de 2 uM avec une excitation proche de 495 nm et une émission proche de 585 nm, dans un régime d’extinction où l’absorption de la sonde modifie la fluorescence globale. TMRM et TMRE conviennent aux cellules intactes avec un chargement à faible concentration nanomolaire en mode sans extinction, où la dépolarisation libère le colorant et fait diminuer la fluorescence mitochondriale ; avec un chargement élevé, le sens du signal peut s’inverser par auto-extinction. JC-1 fournit un rapport vert sur rouge pratique, mais dépend du chargement et de la masse mitochondriale, ce qui le rend moins adapté aux travaux quantitatifs qu’un TMRM soigneusement contrôlé. Ces compromis sont résumés dans une revue largement utilisée sur les sondes du potentiel membranaire mitochondrial.
Le bleu de méthylène provoque des interférences optiques précisément aux concentrations de travail. Ses bandes d’absorption proches de 600 to 665 nm chevauchent l’émission des sondes rouges, de sorte que les effets de filtre interne, l’extinction et l’absorption de la lumière d’excitation sont tous plausibles. Le colorant est aussi un second cation lipophile dont la propre distribution varie avec le potentiel mesuré. La stratégie de défense repose sur la redondance et les blancs : sonde seule, colorant seul, sonde plus chaque concentration de colorant, dépolarisation complète avec FCCP comme référence zéro et, idéalement, une seconde sonde optiquement distincte. L’étude sur le contournement du Complex III a établi ce précédent en répétant la restauration du potentiel membranaire avec Safranine O et TMRM après inhibition par l’antimycine et le myxothiazol, avec la même récupération qualitative. Un seul rapporteur optique constitue un indice. Deux rapporteurs indépendants constituent des éléments probants.
Trois préparations, trois questions différentes
Les mitochondries isolées, les cellules perméabilisées et les cellules intactes ne sont pas des réglages de sensibilité interchangeables d’un même test. Ce sont des concepts différents reposant sur des principes opératoires différents.
Les mitochondries isolées préservent la chaîne de transport d’électrons, la membrane interne et la machinerie matricielle tout en supprimant la membrane plasmique, le cytosol et l’architecture du réseau. Cette suppression est précisément l’objectif : les substrats, l’ADP, les inhibiteurs et les concentrations de colorant sont définis exactement, ce qui permet d’attribuer une voie. Le prix à payer est la perte de l’apport natif en substrats, de la signalisation et de la demande.
Les cellules perméabilisées conservent les mitochondries dans une grande partie de leur architecture cellulaire tout en laissant passer les substrats exogènes et l’ADP à travers la membrane plasmique ouverte. Elles constituent l’outil adapté pour attribuer un défaut à une voie de substrat dans un contexte cellulaire. Une perméabilisation excessive endommage la membrane externe et la régulation cytosolique est éliminée.
Les cellules intactes préservent tout : barrière de la membrane plasmique, réducteurs cytosoliques, transport endogène des substrats, réseau mitochondrial et demande en ATP. Elles sont les plus proches de la physiologie et les plus éloignées du mécanisme, car l’absorption, la réduction et la séquestration du colorant façonnent toutes l’exposition mitochondriale effective.
L’étude TEGDMA a utilisé délibérément les trois niveaux : des mitochondries cérébrales isolées pour étudier la restauration par le colorant de l’oxydation et du potentiel, des cellules souches de pulpe dentaire perméabilisées principalement pour localiser la lésion au niveau de l’oxydation des substrats liée au Complex I, et des cellules souches intactes pour mesurer l’effet physiologique net de 2 uM de colorant sur la consommation d’oxygène réduite. Pour les lecteurs qui comparent les mesures mitochondriales entre différentes préparations, l’article complémentaire expliquant comment le bleu de méthylène déplace les électrons dans la chaîne respiratoire fournit le contexte relatif aux voies, et le guide de lecture des études de respiration avec le bleu de méthylène couvre la logique des doses et des inhibiteurs.
Contrôles exigés par un colorant redox-actif
Un cycleur redox exige une liste de contrôles plus longue qu’un inhibiteur ordinaire, car la chimie du colorant seul peut imiter un phénomène biologique.
Pour la respirométrie, utilisez une chambre contenant uniquement le tampon pour mesurer la dérive, une chambre avec tampon plus colorant sans matériel biologique, le colorant plus tout réducteur extracellulaire présent dans le test, ainsi qu’un traitement terminal par roténone plus antimycine afin de définir la consommation d’oxygène non mitochondriale dans les cellules intactes. Notez que le colorant réduit se réoxyde en transférant des électrons à l’oxygène pour former du peroxyde d’hydrogène ; un blanc contenant uniquement le colorant, sans donneur d’électrons, sous-estime donc le puits d’oxygène acellulaire qui apparaît dès que NADH ou NADPH est disponible.
Pour le peroxyde d’hydrogène, préférez Amplex UltraRed calibré plus peroxydase de raifort aux colorants DCFDA non sélectifs, vérifiez avec de la catalase et testez la dépendance à l’éclairage, puisque le colorant est un photosensibilisateur. L’étude sur les mitochondries cérébrales a constaté que la charge en peroxyde augmentait de plus de quatre fois avec seulement 100 nM de colorant tandis que son élimination ralentissait, le peroxyde étant formé directement par le colorant réduit sans intermédiaire superoxyde. Les détails relatifs au choix des sondes et aux contrôles lumineux figurent dans l’article complémentaire sur la mesure des espèces réactives de l’oxygène dans les expériences avec des colorants, tandis que la question plus générale du moment où le peroxyde agit comme signal plutôt que comme charge est traitée avec l’article sur l’équilibre redox cellulaire et les allégations relatives aux antioxydants.
Pour les affirmations relatives aux voies, testez les deux sites inhibiteurs du Complex III : l’antimycine A au site Qi et le myxothiazol au site Qo, ainsi qu’un point final du Complex IV avec du cyanure. Une étude antérieure sur le cerveau de souris a rapporté une restauration par le colorant de la respiration bloquée par la roténone mais pas de celle bloquée par l’antimycine, tandis que l’étude ultérieure menée sur trois espèces a observé une restauration partielle avec les deux inhibiteurs et des éléments indiquant une réduction directe du cytochrome c. Considérez le contournement comme compatible avec les données les plus récentes plutôt que comme définitivement établi, car la concentration du colorant, le site de l’inhibiteur, l’état du substrat et la distribution du colorant modifient tous la voie observée.
Matrice de sélection des tests
Utilisez ce tableau pour choisir la mesure à partir de la question, et non l’inverse.
| Question biologique | Meilleur test | Préparation | Contrôle clé | Facteur de confusion fréquent |
|---|---|---|---|---|
| Le colorant restaure-t-il le flux d’électrons ? | Consommation d’oxygène par Oroboros ou Seahorse avec protocole défini de substrats et d’inhibiteurs | Mitochondries isolées pour cartographier les voies ; cellules intactes pour l’effet net | Blanc d’oxygène avec colorant seul ; roténone terminale plus antimycine | Le cycle redox consomme de l’oxygène sans produire d’ATP |
| Le colorant restaure-t-il la synthèse d’ATP ? | Taux cinétique de synthèse d’ATP, dosage à la luciférase ou dosage enzymatique couplé | Mitochondries isolées ou cellules perméabilisées contrôlées | Oligomycine ; récupération après ajout d’une quantité connue d’ATP plus colorant | Inhibition du rapporteur et atténuation optique ; teneur confondue avec taux |
| La restauration est-elle énergétiquement efficace ? | Flux d’oxygène parallèle plus taux d’ATP ; rapporter l’ATP par oxygène | Mitochondries isolées ou cellules perméabilisées | Mêmes substrats et même ADP pour les deux mesures | Le flux colorant vers oxygène vers peroxyde gonfle le dénominateur |
| Le colorant restaure-t-il le potentiel membranaire ? | Safranine O dans les mitochondries isolées ; TMRM à faible chargement dans les cellules ; seconde sonde si possible | Adapter la sonde à la préparation | Dépolarisation complète avec FCCP ; balayage spectral avec colorant seul | Absorption et extinction près de 600 to 665 nm ; modification de la distribution du colorant |
| Le défaut se situe-t-il au niveau du Complex I ? | Respirométrie avec glutamate plus malate ou pyruvate plus malate comparée au succinate | Mitochondries isolées ou cellules perméabilisées | Référence roténone ; comparaison avec succinate | Le colorant fournit une voie alternative, de sorte que l’activité du Complex I peut sembler restaurée alors qu’elle a été contournée |
| Le défaut se situe-t-il au niveau du Complex III ? | Respirométrie avec antimycine A et myxothiazol séparément, avec potentiel mesuré en parallèle | Mitochondries isolées | Inhibiteurs des sites Qi et Qo ; point final du Complex IV | L’état redox et la distribution compartimentale du colorant déterminent la voie |
| Le colorant augmente-t-il la charge en peroxyde ? | Amplex UltraRed plus peroxydase, calibré ; capteur orthogonal dans les cellules | Adapter à la question posée | Catalase ; sans peroxydase ; contrôle obscurité versus lumière | Le colorant lui-même effectue un cycle redox et photosensibilise la formation de peroxyde |
L’affirmation minimale convaincante consiste à soumettre les mêmes concentrations de colorant, 100 nM, 300 nM, 1 uM, and 2 uM, à des mesures du flux d’oxygène dans des conditions de fuite, d’ADP, d’oligomycine et de découplant, du taux de synthèse d’ATP, du potentiel membranaire avec de préférence deux sondes, ainsi que de la libération calibrée de peroxyde avec catalase et contrôles sans cellules. Rapportez l’ensemble lié : flux d’oxygène plus taux d’ATP plus ATP par oxygène plus potentiel plus peroxyde. Pris isolément, chacun de ces nombres n’est qu’une mesure à la recherche d’une signification. :::