
Article
Comment le bleu de méthylène diffère des antioxydants conventionnels
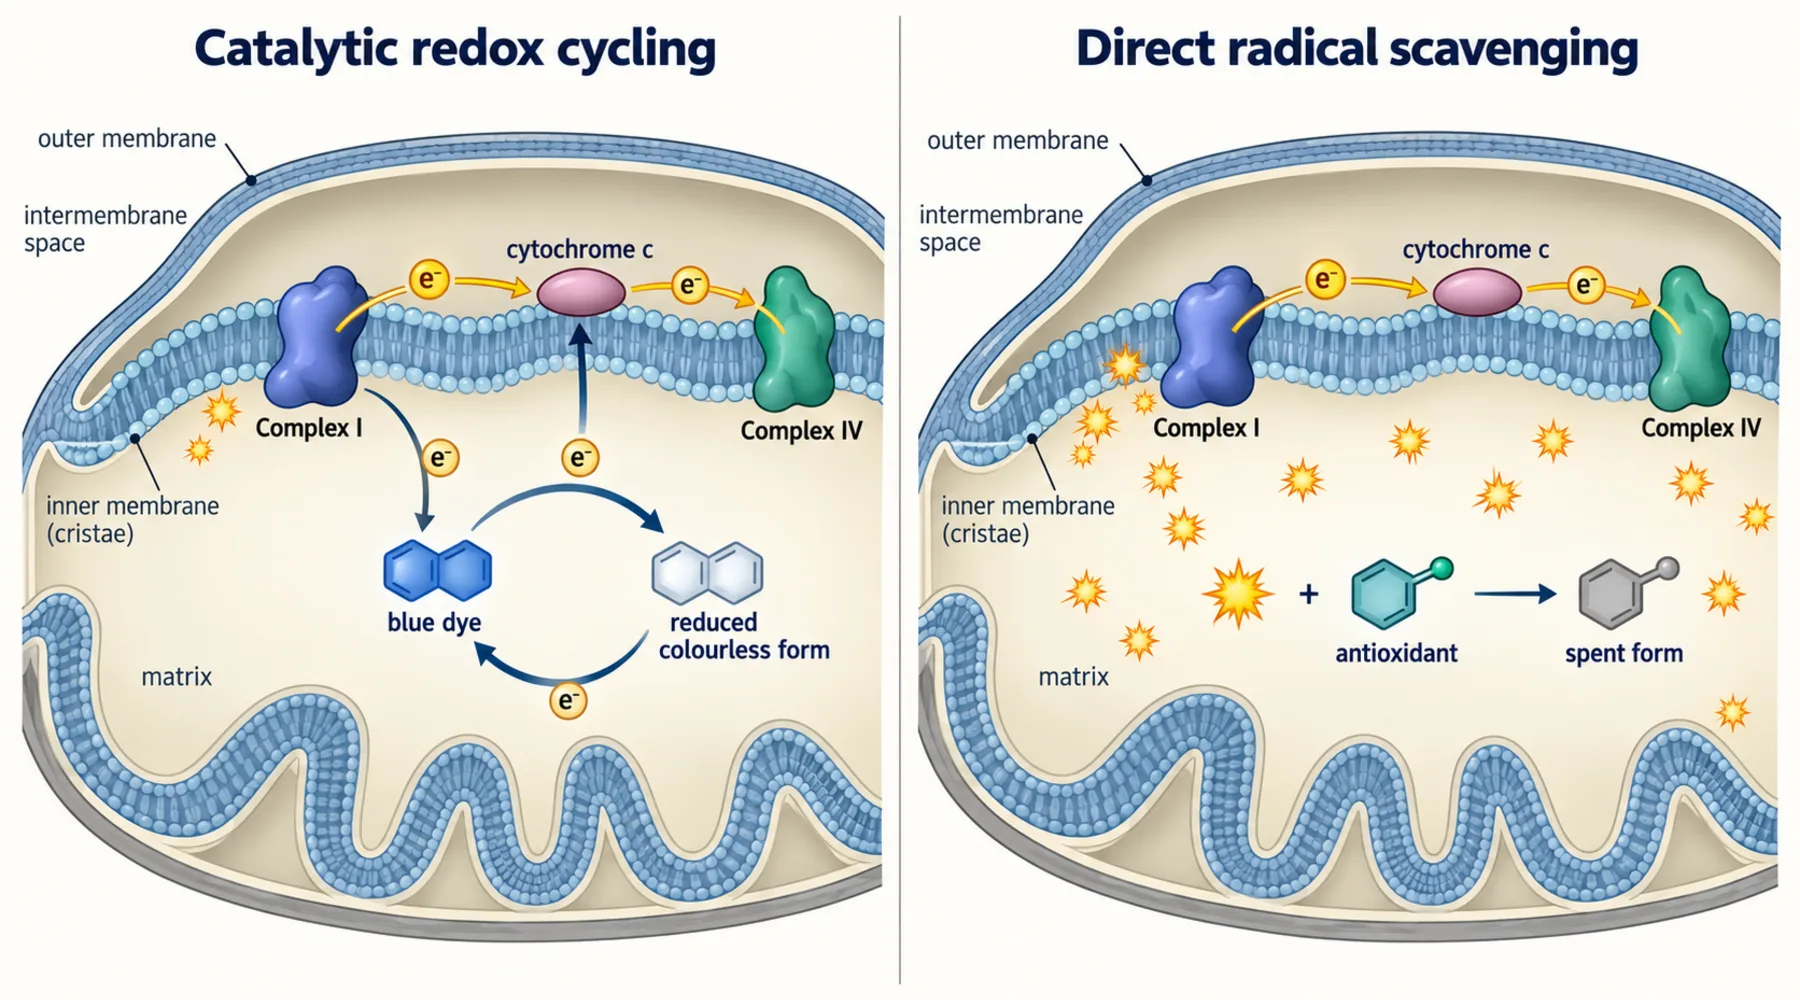
Un antioxydant conventionnel rencontre un radical libre une seule fois. Il donne un électron, neutralise sa cible et est consommé. L’arithmétique est de un pour un, et la protection cesse lorsque la réserve est épuisée.
Le bleu de méthylène ne fonctionne pas ainsi. Il accepte des électrons, les transmet, puis revient à sa forme initiale, prêt à recommencer le cycle. Une seule molécule peut agir des milliers de fois. Cette différence explique son activité à faibles doses ainsi que ses échecs les plus instructifs. La suite compare les deux mécanismes à travers trois études publiées, sans écarter les résultats nuls.
Un relais, pas une éponge
La chimie repose sur un couple réversible. Le bleu de méthylène oxydé est bleu, chargé et soluble dans l’eau. Le bleu de méthylène réduit, appelé leuco-bleu de méthylène, est incolore, non chargé et suffisamment liposoluble pour traverser librement les membranes. À l’intérieur de la mitochondrie, le colorant oxydé capte des électrons auprès de transporteurs liés au NADH en amont et les transmet au cytochrome c et au complexe IV en aval, en contournant les complexes I à III, qui sont les sites où les électrons fuient le plus souvent vers l’oxygène et forment du superoxyde. Le colorant ressort oxydé et recommence la boucle. Le fonctionnement de ce couple est lui-même présenté dans l’article explicatif sur le fonctionnement du bleu de méthylène.
Un piégeur direct agit en aval de la fuite. Il attend que du superoxyde ou du peroxyde se forme, puis le neutralise, à raison d’une molécule par radical. Un agent de cycle redox agit en amont, en détournant le flux d’électrons afin que moins de superoxyde se forme, sans être consommé. L’arithmétique des doses en découle : dans les études ci-dessous, le bleu de méthylène agit autour de 100 nanomolaires, tandis que le piégeur classique nécessite 100 micromolaires.
Un relais ne fait toutefois rien à lui seul. Son effet dépend des donneurs et des accepteurs présents à chaque extrémité. Modifiez le système et la même molécule peut être protectrice, inutile ou sans pertinence.
Cellules neuronales : une protection qui exige des mitochondries fonctionnelles
L’analyse la plus nette provient d’une étude de relation structure-activité menée sur des cellules neuronales hippocampiques HT-22, qui a testé le bleu de méthylène et six molécules apparentées face à quatre agressions (Poteet et al., 2012). Face au glutamate, à la roténone (un inhibiteur du complexe I) et à l’iodoacétate, le colorant exerçait un effet protecteur à des concentrations nanomolaires. Face à la glucose oxydase, qui génère directement du peroxyde d’hydrogène dans le milieu, il n’a eu aucun effet de 10 nanomolaires à 10 micromolaires, tandis que le simple piégeur qu’est le pyruvate était protecteur. Lorsque l’agression correspond à une chaîne de transport d’électrons défaillante, le relais aide. Lorsque le peroxyde est déjà formé à l’extérieur de la cellule, il n’a rien à transporter.
La même étude a montré pourquoi. Dans un test sur lysat mitochondrial, deux molécules apparentées dépourvues de chaînes latérales aux positions 3 et 7, la phénothiazine et la 2-chlorophénothiazine, agissaient seules comme antioxydants directs. Ce n’était pas le cas du bleu de méthylène. Il ne supprimait l’oxydation que lorsque le NADH et du matériel mitochondrial intact étaient tous deux présents. Autrement dit, il ne piégeait rien. Il assurait une navette, et cette navette a besoin à la fois d’un point de chargement et d’une destination.
Deux détails précisent encore le tableau. L’ajout d’une chaîne latérale à l’azote du cycle en position 10 réduisait la puissance protectrice d’environ un facteur mille, ce qui indique que l’azote libre joue un rôle structurel essentiel dans la chimie du cycle. De plus, une exposition chronique augmentait l’expression et l’activité du complexe IV, une adaptation que les molécules apparentées agissant comme piégeurs directs ne produisaient pas. Des précisions connexes sur le transfert mitochondrial des électrons servent de contexte pour évaluer les affirmations relatives aux antioxydants.
Cellules cutanées : une comparaison directe remportée par le bleu de méthylène
Une étude distincte a comparé le bleu de méthylène à trois antioxydants établis dans des fibroblastes cutanés humains primaires provenant de donneurs sains, de patients atteints de progéria et de donneurs de plus de 80 ans (Xiong et al., 2017). Sur quatre semaines, le bleu de méthylène était administré à 100 nanomolaires, la N-acétylcystéine à 100 micromolaires, et MitoQ ainsi que mito-TEMPO à 100 nanomolaires chacun.
L’écart était net. Le bleu de méthylène réduisait le superoxyde mitochondrial et soutenait la prolifération dans les différentes lignées cellulaires. La N-acétylcystéine ne réduisait pas les ROS mitochondriales et semblait ralentir la prolifération. MitoQ, à la dose standard de la littérature, augmentait fortement les ROS mitochondriales et inhibait la prolifération. Mito-TEMPO présentait un bénéfice modéré dans certaines lignées. Parmi les quatre, l’agent catalytique de cycle redox était le plus efficace, tandis que l’antioxydant stœchiométrique ciblé était activement pire que l’absence de traitement, du moins dans ce système après une exposition d’un mois.
Les auteurs ont indiqué que la durée constituait probablement une explication, puisque des expositions plus courtes à MitoQ avaient donné de meilleurs résultats ailleurs. Cette réserve peut être généralisée : les antioxydants stœchiométriques s’épuisent, et leurs produits de dégradation peuvent avoir des effets indésirables lors d’incubations prolongées. Un catalyseur ne s’épuise pas.
Le même programme s’est étendu à de la peau humaine reconstruite en 3D, où de faibles doses de bleu de méthylène épaississaient le derme, amélioraient l’hydratation, augmentaient l’élastine et le collagène 2A1, réduisaient MMP9 et accéléraient la fermeture des plaies. Ces résultats sont encourageants, mais ils concernent la peau, et la peau n’est pas l’os.
Os : une promesse en culture cellulaire qui disparaît chez l’animal
L’étude sur le vieillissement du squelette se situe à l’autre extrémité du spectre (Poudel et al., 2024). En culture, le bleu de méthylène et MitoQ inhibaient tous deux la formation des ostéoclastes de manière dose-dépendante au-dessus de 0.25 micromolaire, sans nuire à la viabilité des cellules souches ni à la formation des ostéoblastes. À ne lire que ces résultats, un chercheur pourrait prévoir des os plus solides chez les animaux traités.
Les animaux ont donné un autre résultat. Des souris femelles C57BL/6J âgées ont reçu 250 micromolaires de bleu de méthylène dans leur eau de boisson pendant 6 ou 12 mois. Des souris UM-HET3 génétiquement diverses ont reçu 28 ppm de bleu de méthylène dans leur alimentation de 7 à 22 mois, ou 100 ppm de MitoQ de 4 à 22 mois. La micro-CT de l’os cortical et trabéculaire du fémur ainsi que des vertèbres lombaires a montré que la perte liée à l’âge progressait de manière identique dans les groupes traités et témoins. Deux souches, deux voies d’administration, deux antioxydants, des mois d’exposition, aucun effet sur le squelette.
La conclusion des auteurs est sans détour : réduire le stress oxydatif au moyen d’un antioxydant seul semble insuffisant pour ralentir le vieillissement du squelette. La perte osseuse intègre les hormones, les contraintes mécaniques, l’inflammation et l’élimination des cellules sénescentes. Corriger les fuites d’électrons ne traite qu’un facteur parmi beaucoup d’autres, et ici les autres ont dominé. Le contexte sur les résultats des stratégies antioxydantes face aux phénotypes du vieillissement aide à interpréter ce résultat nul.
Lire les trois études ensemble
Trois tendances restent valables à la lumière des trois articles.
Premièrement, le mécanisme prédit la limite d’action. Le bleu de méthylène aide lorsque les électrons sont mal dirigés à l’intérieur des mitochondries et qu’une navette peut les rediriger. Il échoue lorsque les oxydants sont déjà formés et éloignés de la chaîne. Le résultat nul avec la glucose oxydase et le résultat nul sur l’os ne sont pas des anomalies à écarter. Ils montrent que la théorie fonctionne dans les limites qu’elle prévoit.
Deuxièmement, l’arithmétique catalytique surpasse l’arithmétique stœchiométrique lors d’une exposition chronique. Une molécule qui n’est pas consommée continue à agir à des concentrations nanomolaires pendant des semaines, tandis que les piégeurs à usage unique nécessitent des doses de centaines de micromolaires et peuvent finir par devenir nocifs lors d’incubations prolongées.
Les considérations sur la dose, la voie d’exposition et la distribution tissulaire expliquent en partie pourquoi un composé efficace à l’échelle nanomolaire en culture cellulaire peut produire un résultat nul in vivo.
Pour les cliniciens et les chercheurs, la conclusion est limitée mais solide. Le bleu de méthylène n’est pas un antioxydant plus puissant, mais appartient à une autre catégorie : une navette régénérable qui nécessite des mitochondries intactes, des donneurs disponibles et un accepteur en aval. Toute utilisation proposée devrait être évaluée en demandant si ce circuit existe dans le tissu cible, et en exigeant le contrôle utilisé dans l’étude de Poteet : une exposition directe au peroxyde, qu’un véritable piégeur doit réussir et qu’une navette doit échouer. C’est également pourquoi les comparaisons de composés redox-actifs menées par des chercheurs reviennent régulièrement à des protocoles en comparaison directe.
Sources
Les trois comparaisons ci-dessus proviennent d’une étude de relation structure-activité du bleu de méthylène et de six dérivés dans des cellules neuronales, d’une comparaison de quatre antioxydants dans des fibroblastes cutanés humains et des modèles de peau en 3D et d’une étude à long terme du bleu de méthylène et de MitoQ sur le vieillissement du squelette dans deux souches de souris. Cet article présente leurs résultats et ne formule aucune recommandation thérapeutique.