
مقاله
متیلن بلو و NAD+/NADH: تفسیر تعادل اکسایشکاهش سلولی
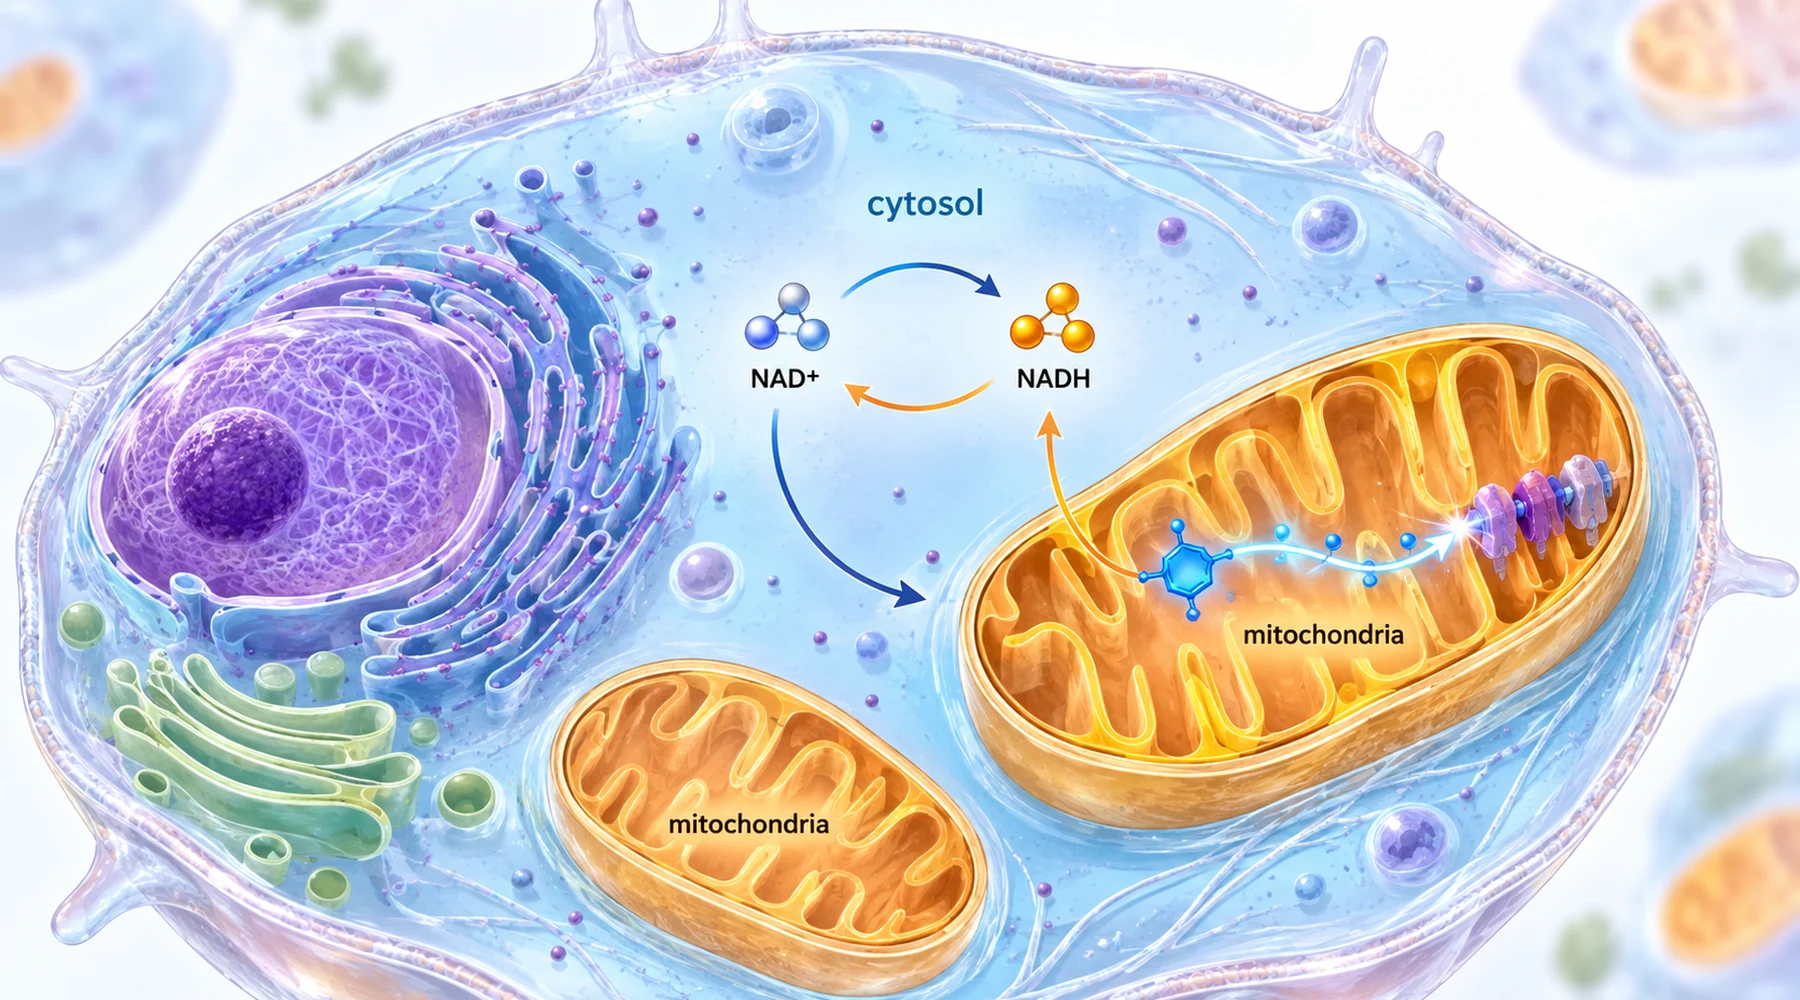
گزارشهای مربوط به متیلن بلو و NAD+ معمولاً سه ادعای متفاوت را در هم میآمیزند. ادعای نخست این است که نسبت NAD+ به NADH بهسوی حالت اکسیدشده حرکت کرده است. ادعای دوم این است که سلول در مجموع NAD بیشتری دارد. ادعای سوم این است که تولید انرژی بازیابی شده است. اینها شبیه روایتی واحد درباره بازگرداندن سوختوساز به نظر میرسند. اما در آزمایشها اغلب از هم جدا میشوند و نتایج جالب دقیقاً همان مواردی هستند که این سه از هم فاصله میگیرند.
این سردرگمی قابلدرک است، چون هر سه کمیت با واژگان مشترکی توصیف میشوند. NAD+ در واکنشهای متابولیک الکترون میپذیرد و به NADH تبدیل میشود؛ سپس میتوکندریها در کمپلکس I، NADH را دوباره به NAD+ اکسید میکنند و از انرژی آزادشده برای تأمین انرژی ساخت ATP استفاده میکنند. شرح کاملتر این مسیر الکترونی در توضیح انتقال الکترون میتوکندریایی و جنبه انرژی آن در ATP و سوختوساز انرژی آمده است. اما نسبت و ذخیره دو مفهوم متفاوتاند. نسبت نشان میدهد ناوگان موجود مولکولهای حامل چگونه میان حالتهای بارگیریشده و تخلیهشده توزیع شده است. ذخیره نشان میدهد در مجموع چند مولکول حامل وجود دارد. بهتر شدن نسبت در حالی که ذخیره ثابت مانده، به معنای بازتوزیع است، نه تولید.
دو بخش سلولی، دو شاخص گزارشگر
تمایز دیگری نیز وجود دارد که به برداشتهای نادرست کمسروصدا منجر میشود. ذخایر NAD در سیتوزول و میتوکندری تا حد زیادی بهواسطه غشای داخلی میتوکندری از هم جدا هستند؛ بنابراین هر بخش میتواند مستقل از دیگری در حالتی نسبتاً اکسیدشده یا احیاشده قرار داشته باشد. یک عدد واحد برای کل سلول این تفاوت را پنهان میکند.

پژوهشهای کبد امکان اندازهگیری این جدایی میان بخشها را فراهم کردند. تعادل لاکتات به پیرووات، نسبت NAD+ به NADH در سیتوزول را نشان میدهد، زیرا لاکتات دهیدروژناز این دو جفت را به هم پیوند میدهد. تعادل 3-هیدروکسیبوتیرات به استواستات نیز از طریق پیوندی مشابه، نسبت میتوکندریایی را گزارش میکند. هنگامی که هر دو جفت در بافتی که با انجماد سریع تثبیت شده اندازهگیری میشوند، مانند مطالعه تغذیه مزمن با اتانول در موشهای صحرایی، از یک کبد دو خوانش اکسایشکاهش به دست میآید و یک ترکیب میتواند یکی را بیش از دیگری تغییر دهد.
متیلن بلو در این سامانه نقش حامل الکترون را دارد، نه سوخت. در نزدیکی کمپلکس I از NADH الکترون میپذیرد و احیا میشود؛ سپس آنها را به حاملهای پاییندست، مانند سیتوکروم c، منتقل میکند. اثر خالص، اکسید شدن NADH بدون عبور از تمام مسیر معمول است. این سازوکار هم دلیل جذابیت آن را توضیح میدهد و هم حد توانش را: میتواند از گرفتگی ناشی از تجمع حالت احیاشده بکاهد، اما کمپلکس آسیبدیده را بازسازی نمیکند و مولکولهای جدید NAD نمیسازد.
پنج مطالعه، یک الگوی نتایج واگرا
جدول زیر پنج مطالعه را بر اساس بافت، شاخص نهایی اکسایشکاهش، شاخص نهایی انرژی و آنچه واقعاً بازیابی شده کنار هم قرار میدهد. دو ستون آخر را در کنار یکدیگر بخوانید. اصل مطلب مقاله همین مقایسه است.
| بافت و عامل آسیبزا | شاخص نهایی اکسایشکاهش با متیلن بلو | شاخص نهایی انرژی و پیامرسانی | پیامد عملکردی |
|---|---|---|---|
| کبد موش صحرایی، رژیم مزمن حاوی اتانول | نسبتهای NAD+/NADH سیتوزولی و میتوکندریایی تا حد زیادی بازیابی شدند؛ گلیسرول 3-فسفات به حالت طبیعی برگشت | ATP با اتانول یا تیمار تغییر نکرد؛ با رنگ در زمان اندازهگیری پایانی افت اندکی در ATP دیده شد | نفوذ چربی تغییری نکرد؛ چربی و تریآسیلگلیسرول بالا ماندند |
| هپاتوسیتها و کبد موش با رژیم پرچرب | نسبت NAD+/NADH و مقدار NAD+ در سلولها و کبد افزایش یافت | SIRT1 افزایش یافت، PGC-1alpha داستیله شد، DNA میتوکندریایی و مصرف اکسیژن افزایش یافتند و AMPK بهصورت وابسته به SIRT1 فعال شد | تجمع چربی کبد و استئاتوهپاتیت کاهش یافت |
| قلب موش صحرایی دیابتی | نسبت NADH/NAD+ هنگام اکسیداسیون سوبسترا در میتوکندریهای جداشده کاهش یافت | فعالیت SIRT3 افزایش یافت؛ استیلاسیون لیزین در 83 جایگاه روی 34 پروتئین کاهش یافت | حجمهای قلبی و کسر جهشی بهبود یافتند؛ خود نقص کمپلکس I اصلاح نشد |
| شبکیه موش دچار کمبود AIF و سلولهای گیرنده نوری تیمارشده با روتنون | نسبت NADH/NAD+ در سلولها به حالت طبیعی برگشت؛ استرس اکسیداتیو کاهش یافت | کمبود ATP در سلولها اصلاح نشد؛ فعالیت مسیرهای استرس میتوکندریایی کاهش یافت | ضخامت شبکیه و نشانگرهای گیرندههای نوری حفظ شدند؛ بقای سلولی بهبود یافت |
| تاندون آشیل انسان و موش صحرایی، آسیب ناشی از اکسیدان و کلاژناز | تعادل NAD+ و وضعیت شیمیایی کل NAD بهسوی حالت گروه کنترل بازگشت | در مواردی که بهبود رخ داد، ATP افزایش و ROS کاهش یافت | نشانگرهای ماتریکس بهبود یافتند، جز هنگام مهار مستقیم کمپلکس I که وضعیت شیمیایی تغییر کرد اما بافت بهبود نیافت |
جایی که اصلاح اکسایشکاهش بافت را نجات نداد
قدیمیترین مطالعه این مجموعه همچنان روشنترین هشدار را در خود دارد. در موشهای صحرایی که اتانول 36 درصد انرژی دریافتی آنها را تأمین میکرد، نسبتهای NAD+/NADH سیتوزولی و میتوکندریایی، بر اساس اندازهگیری هر دو جفت گزارشگر، کاهش یافت. متیلن بلو در رژیم غذایی با مقدار حدود 42 mg بهازای هر kg در روز تا حد زیادی از این تغییرها جلوگیری کرد. بااینحال، تریآسیلگلیسرول کبدی تا زمان اندازهگیری پایانی تقریباً سه برابر شد، چه رنگ حضور داشت و چه نداشت، و بافتشناسی همان تجمع چربی در مرکز لوبولها را نشان داد. نویسندگان مستقیماً به این نتیجهگیری ناخوشایند رسیدند: تغییر اکسایشکاهش همراه با اکسیداسیون اتانول، بهتنهایی عامل ایجاد کبد چرب نیست. خوانندهای که اصلاح یک نسبت را معادل اصلاح یک اندام بداند، این مقاله را نادرست گزارش خواهد کرد. طرح کامل مطالعه، شامل گروههای کنترل با غذای هممقدار و نمونهگیری در نیمهشب هنگام اوج مستی، در مطالعه اتانول و کبد شرح داده شده است.
این نتیجه را با پژوهش کبد در رژیم پرچرب مقایسه کنید، که در آن تغییری مشابه در نسبت با بهبود واقعی بافت همراه بود. در هپاتوسیتها و در کبد موش پس از تجویز خوراکی، متیلن بلو نسبت NAD+/NADH را افزایش داد و زنجیره پیامرسانی گامبهگام ردیابی شد: SIRT1 افزایش یافت، PGC-1alpha داستیله شد، نشانگرهای زیستزایی میتوکندری و مصرف اکسیژن افزایش یافتند و سپس AMPK، CPT-1 و PPARalpha وارد عمل شدند؛ همچنین نشان داده شد که فعالسازی AMPK به SIRT1 وابسته است. موشهای دارای رژیم پرچرب، چربی کبدی کمتری انباشته کردند. منطق پیشنهادی این است که تغییر اکسایشکاهش در اینجا یک محور تنظیم ژن را به کار انداخت، نه اینکه صرفاً وضعیت شیمیایی را دوباره متعادل کند؛ جزئیات در مطالعه کبد درباره SIRT1 و AMPK آمده است. خانواده اندازهگیریها همان خانواده مطالعه اتانول بود، اما نتیجه در سطح بافت برعکس شد. تفاوت در مسیر پاییندست است، نه صرفاً در نسبت.
قلب و شبکیه: سیرتوئینها، استیلاسیون و بهبود بدون بازیابی ATP
مطالعه قلب دیابتی، تغییر اکسایشکاهش را از طریق سیرتوئینی متفاوت به استیلاسیون پروتئین پیوند میدهد. میتوکندریهای دیابتی روی آنزیمهای متابولیک استیلاسیون بیشازحد لیزین دارند که با انعطافناپذیری در استفاده از سوبسترا همراه است. متیلن بلو با مقدار 10 mg بهازای هر kg در روز، و در میتوکندریهای جداشده در بازه 6 تا 18 میکرومولار بهصورت وابسته به غلظت، اکسیداسیون NADH را تسهیل کرد، فعالیت SIRT3 را افزایش داد و استیلاسیون را بهطور گسترده کاهش داد. همزمان حجمهای قلبی و کسر جهشی بهبود یافتند، هرچند اختلال زمینهای کمپلکس I پابرجا ماند. مقاله درباره رفتار وابسته به مقدار مصرف در دیگر پژوهشها صریح است: غلظتهای پایین به نقش حامل الکترون در چرخه احیا کمک میکنند، در حالی که غلظتهای بالاتر میتوانند الکترونها را به مسیرهای بیحاصل منحرف کنند؛ بنابراین اثر آن هورمتیک است، نه یکنواخت و یکجهته. بررسی پروتئومیک و اندازهگیریهای قلبی در مطالعه استیلاسیون قلب دیابتی گزارش شدهاند. چارچوب استرس اکسیداتیو پشت این موضوع در بحث استرس اکسیداتیو و کنترل ROS مطرح میشود.
مطالعه شبکیه این جدایی را از همه فراتر میبرد. در موشهای هارلکوئین دچار کمبود AIF، یعنی نقص در مونتاژ کمپلکس I، متیلن بلو ضخامت شبکیه، قطعات بیرونی گیرندههای نوری و نشانگرهای سلولهای استوانهای، مخروطی، مولر و گانگلیونی را حفظ کرد. در سلولهای گیرنده نوری 661W تیمارشده با روتنون، این رنگ در غلظت 15 میکرومولار نسبت NADH به NAD+ را به حالت طبیعی برگرداند و گونههای فعال اکسیژن را کاهش داد؛ بااینحال، ATP در غلظتهایی که بقا را بهبود میدادند همچنان پایین ماند. ساختار و بقا بدون بازیابی انرژی حفظ شدند و همزمان پاسخ میتوکندریایی به پروتئینهای تانخورده و میتوفاژی کاهش یافتند. این نتیجه، رنگ را بیشتر بهعنوان کاهشدهنده استرس احیایی و اکسیداتیو مطرح میکند تا بازگرداننده انرژی؛ یافتهای که در مطالعه حفاظت از گیرندههای نوری شبکیه مستند شده است.
تاندون: آزمایشی که در آن وضعیت شیمیایی تغییر کرد اما بافت بهبود نیافت
پژوهش تاندون آشیل هر دو الگو را در یک مقاله در بر دارد و ارزش خواندن با دقت را دارد. بررسی کامل هر شاخه از آزمایش در تحلیل تاندینوپاتی آشیل در سال 2026 آمده است. تاندون بیمار کاهش ذخیره NAD+، نسبت پایین NAD+ به NADH، نشانگرهای ضعیف کمپلکس I، ATP پایین و کلاژن نامنظم داشت. متیلن بلو در مدل موش صحرایی، نمونههای بافتی جداشده از انسان و نمونههای سلولی، وضعیت شیمیایی NAD و ATP را بازیابی کرد و نشانگرهای ماتریکس را بهبود داد.
سپس دو مداخله مختلکننده انجام شد. هنگام مهار کمپلکس I با روتنون، رنگ همچنان از وضعیت شیمیایی NAD+ و شاخصهای مرتبط با ATP محافظت کرد، اما نتوانست بار اکسیدانی را کاهش دهد، تعادل کلاژن را بازگرداند یا زندهمانی را حفظ کند. هنگام کاهش بیان AIF، که در آن دستگاه کمپلکس I بهجای مهار دارویی، بهطور ناکافی ساخته شده بود، رنگ بهبود گستردهای ایجاد کرد: تعادل NAD، استرس اکسیداتیو، پتانسیل غشا و نشانگرهای کلاژن. نتیجه دقیق است. حتی وقتی کمپلکس I مسدود شده باشد، میتوان مقدار بهتری برای شاخص NAD به دست آورد؛ اما بهبود بافت در این نمونه آزمایشی به وجود مسیر قابلکار کمپلکس I وابسته بود. در این روایت، تغییر نسبت لازم است اما کافی نیست؛ نکتهای که در مطالعه اکسایشکاهش تاندون بیشتر بسط داده شده است.
چگونه ادعای بعدی درباره اکسایشکاهش را بخوانیم
سه بررسی جلوی بیشتر برداشتهای نادرست را میگیرند. نخست، بپرسید نسبت به کدام بخش سلولی تعلق دارد و کدام جفت گزارشگر آن را نشان داده است. نتیجه لاکتات به پیرووات در سیتوزول، مستقیماً چیزی درباره ماتریکس میتوکندری نمیگوید. دوم، بپرسید مقاله تغییر نسبت، افزایش ذخیره کل یا بازیابی ATP را گزارش میکند و هرکدام را یافتهای جداگانه بدانید. سوم، بپرسید چه چیزی همچنان مختل مانده است: چربی اصلاحنشده، نقص اصلاحنشده کمپلکس I یا کمبود اصلاحنشده ATP، همگی در این مقالات در کنار بهبود واقعی اکسایشکاهش دیده میشوند.
هیچیک از این مطالب راهنمای مقدار مصرف نیست. هر پنج مطالعه روی حیوان، سلول یا نمونههای بافتی و با عوامل آسیبزای کنترلشده انجام شدهاند: رژیمهای مایع حاوی اتانول، دیابت ناشی از استرپتوزوتوسین، نقصهای ژنتیکی کمپلکس I، روتنون، پراکسید و کلاژناز. غلظتهای ظروف آزمایشگاهی را نمیتوان صرفاً با نگاه کردن به دوز خوراکی تبدیل کرد و در این مقالات هیچ انسانی برای تعادل اکسایشکاهش متیلن بلو مصرف نکرده است. نکته مشترک برای داروشناسی اکسایشکاهش و تعیین مقدار مصرف، محدودتر و مفیدتر از هر پروتکلی است: متیلن بلو NADH را اکسید میکند و نسبت اندازهگیریشده را تغییر میدهد؛ سیرتوئینها در برخی بافتها این تغییر را به داستیلاسیون و بازبرنامهریزی متابولیک تبدیل میکنند؛ و اینکه بافت نیز بهبود یابد یا نه، به دستگاهی بستگی دارد که این رنگ نمیتواند جایگزینش شود.