
Artículo
Medición de los efectos mitocondriales del azul de metileno: oxígeno, ATP y potencial de membrana
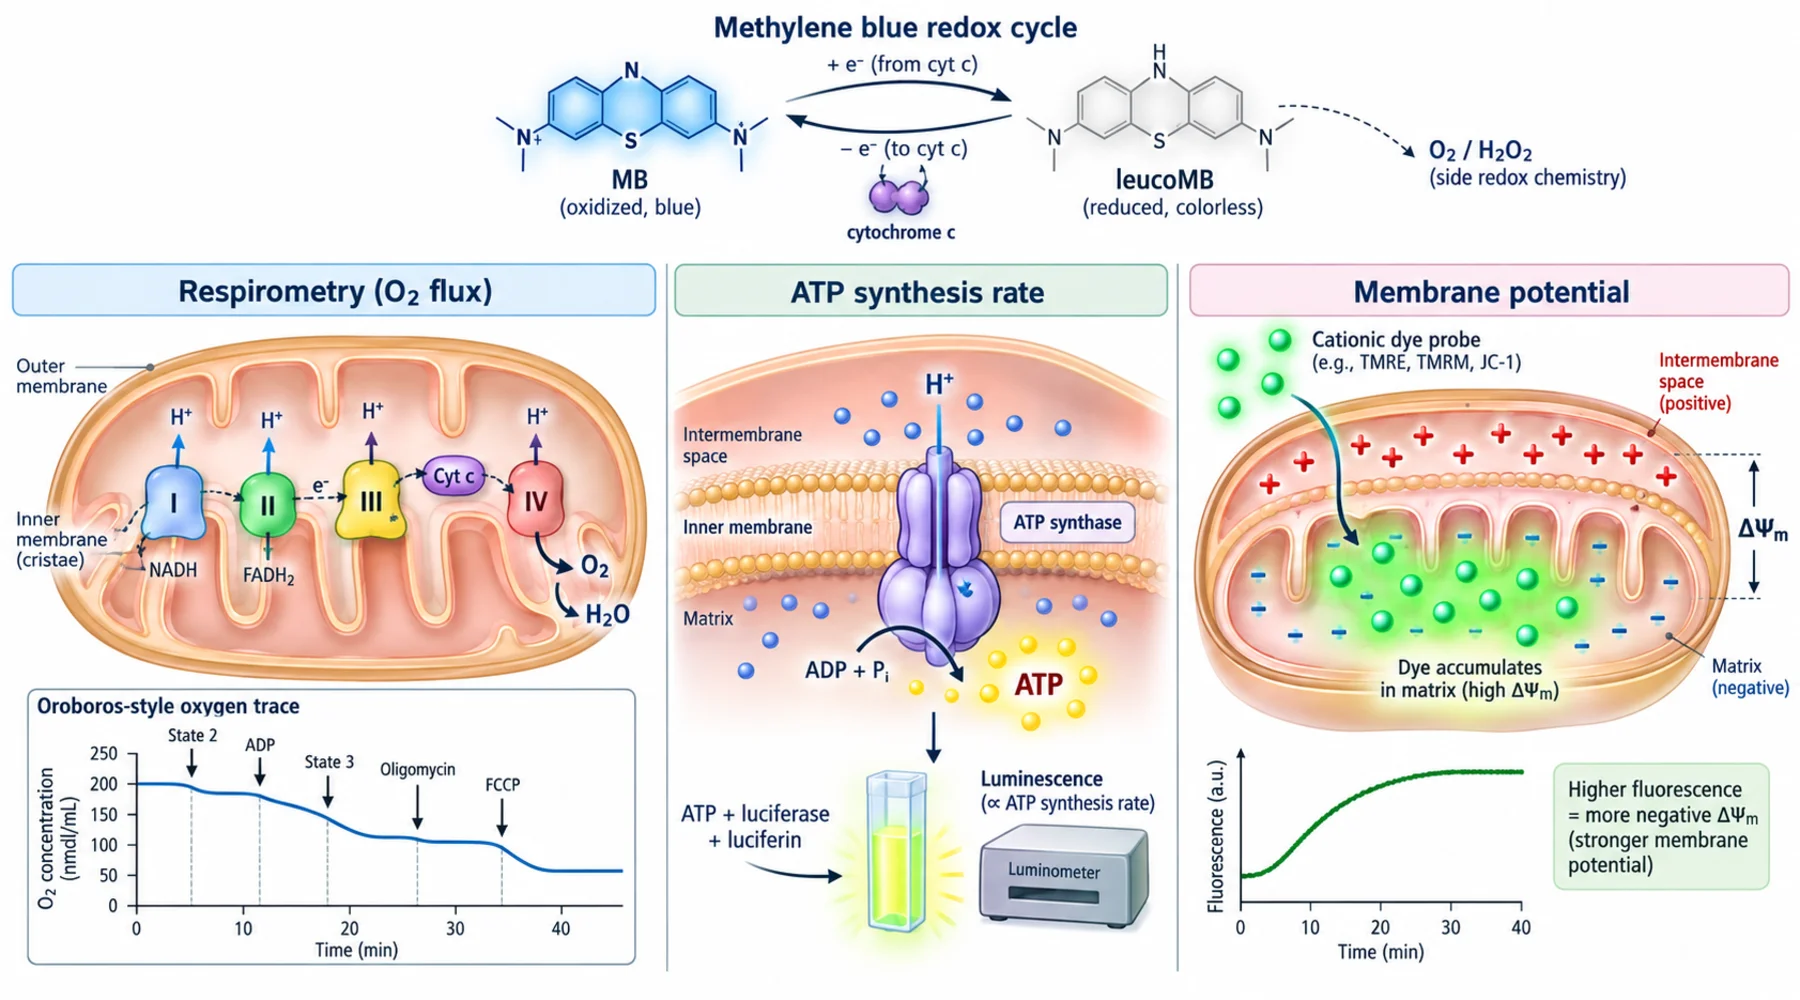
Supongamos que un laboratorio añade azul de metileno a mitocondrias con respiración alterada y observa que aumenta el consumo de oxígeno. La frase natural que se escribiría es que el colorante restauró la función mitocondrial. Esa frase puede ser incorrecta. El flujo de oxígeno, la síntesis de ATP y el potencial de membrana son tres conceptos distintos. Comparten el mismo orgánulo de la misma forma que la copia de seguridad, la sincronización y el uso compartido comparten la misma carpeta en la nube: están relacionados, pero se rigen por reglas diferentes. Confundir uno con otro hace que la interpretación falle, incluso cuando cada medición es técnicamente correcta.
El azul de metileno hace probable esta confusión porque participa en el sistema que mide. Es un ciclista redox que acepta electrones aguas arriba y los dona aguas abajo, un catión lipófilo que se acumula en mitocondrias energizadas y un compuesto intensamente azul que absorbe y emite luz en las mismas bandas que las sondas habituales. Una sola lectura no puede soportar esa carga. El patrón fiable, demostrado en los estudios mitocondriales de Budapest, consiste en medir el flujo de oxígeno junto con la tasa de síntesis de ATP, el potencial de membrana y la liberación de peróxido de hidrógeno, con controles específicos del colorante en cada etapa.
La respirometría mide el flujo de oxígeno, no la producción de energía
La respirometría de alta resolución, ya sea mediante Oroboros Oxygraph o el analizador de flujo extracelular Seahorse, informa de una cosa: la velocidad a la que se reduce el oxígeno. No informa de cuántos protones fueron bombeados por electrón, cuánto gradiente se conservó ni si la ATP sintasa lo utilizó.
La terminología importa. En mitocondrias aisladas, el sustrato sin ADP produce respiración de fuga, el sustrato con ADP saturante produce capacidad de fosforilación oxidativa y la titulación con desacoplantes produce capacidad máxima de transferencia electrónica. En células intactas, los equivalentes de Seahorse son respiración basal, respiración asociada al ATP sensible a oligomicina, fuga de protones, respiración máxima definida por FCCP y consumo de oxígeno no mitocondrial resistente a rotenona más antimicina. Llamar a las salidas de Seahorse Estado 3 y Estado 4 aporta una precisión que la preparación no permite, como deja claro el marco de prueba Mito Stress de Agilent.
El azul de metileno rompe la relación intuitiva entre más oxígeno y más energía. En mitocondrias cerebrales de cobaya aisladas, 100 nM a 1 uM de colorante aumentó el consumo de oxígeno en reposo con sustratos de glutamato más malato, succinato y alfa-glicerofosfato, con un aumento de aproximadamente el 64 por ciento con alfa-glicerofosfato, mientras que la respiración estimulada por ADP en mitocondrias sanas permaneció prácticamente sin cambios, según el estudio de mitocondrias cerebrales aisladas. Debido a que aumentó la fuga mientras el flujo estimulado por ADP permaneció estable, la relación de control respiratorio calculada disminuye. Esa disminución no significa que el colorante dañara las mitocondrias. Significa que el colorante añadió un ciclo redox consumidor de oxígeno sobre la respiración normal. Un ensayo de consumo de oxígeno con azul de metileno que solo informa del aumento ha medido química real y no ha dicho nada sobre la conservación de energía.
Los experimentos de rescate muestran la misma diferencia a mayor escala. Con el Complejo I bloqueado, el flujo de oxígeno se recuperó aproximadamente tres veces, mientras que la síntesis de ATP solo se recuperó alrededor de 1,5 veces. Más oxígeno llegó al electrodo. Menos de él se destinó a ATP. Cualquier afirmación de mejora de la fosforilación oxidativa necesita el lado del ATP del balance, idealmente expresado como una relación ATP por oxígeno con la convención del denominador indicada.
Los ensayos de ATP miden la tasa de síntesis, que el contenido no puede sustituir
Un ensayo de ATP responde a una pregunta diferente: cuánto ATP se genera por unidad de tiempo. Una lectura cinética, ya sea mediante luminiscencia de luciferasa de luciérnaga seguida durante minutos o mediante un ensayo acoplado de hexoquinasa más glucosa-6-fosfato deshidrogenasa leído a 340 nm, proporciona una tasa. Una medición única del ATP total proporciona contenido, que refleja síntesis menos consumo y dice poco sobre la fosforilación oxidativa por sí sola.
El grupo de Budapest utilizó el método enzimático acoplado con adenilato quinasa suprimida y encontró que el azul de metileno a 1 a 2 uM elevó de forma modesta pero significativa la producción de ATP en mitocondrias tratadas con rotenona y antimicina. Eso es un rescate real, y es parcial. El estudio de toxicidad de TEGDMA llegó a la misma forma de respuesta en un modelo diferente: el monómero dental TEGDMA a 5 mM redujo la respiración asociada al Complejo I de aproximadamente 286 a 28 unidades de flujo, y 2 uM de colorante la restauró hasta aproximadamente 86.
Dos controles son imprescindibles con un compuesto redox coloreado. Primero, ejecutar oligomicina para establecer cuánto de la síntesis de ATP medida depende de la ATP sintasa. Segundo, realizar una recuperación por adición en un sistema sin células con ATP conocido más reactivo completo más las concentraciones exactas del colorante utilizadas, como mínimo 0, 100 nM, 300 nM, 1 uM y 2 uM. El colorante puede absorber la luz emitida, inhibir la enzima informadora o alterar la química redox del reactivo, y la guía general de ensayos de luciferasa recomienda precisamente controles bioquímicos de interferencia para esta clase de problemas. No asuma que 1 uM está libre de artefactos porque la atenuación suele ser peor a concentraciones más altas.
Las sondas de potencial de membrana miden la distribución del colorante, no el flujo
La safranina O, TMRM y TMRE, la rodamina 123 y JC-1 son todos cationes permeables a membrana. Se acumulan en la matriz cargada negativamente según el equilibrio electroquímico, por lo que la fluorescencia global informa indirectamente del potencial mediante la ubicación de la sonda. Ninguna mide ATP ni flujo electrónico.
Cada sonda tiene una preparación preferida. La safranina O se adapta a mitocondrias aisladas y células permeabilizadas, normalmente cerca de 2 uM con excitación cercana a 495 nm y emisión cercana a 585 nm, funcionando en un régimen de extinción donde los cambios de captación alteran la fluorescencia global. TMRM y TMRE se adaptan a células intactas con carga baja en el rango nanomolar en modo no extintor, donde la despolarización libera colorante y la fluorescencia mitocondrial disminuye; con cargas altas, la dirección de la señal puede invertirse mediante autoextinción. JC-1 proporciona una relación verde a rojo conveniente, pero depende de la carga y de la masa mitocondrial, lo que lo hace menos adecuado para trabajos cuantitativos que un TMRM cuidadosamente controlado. Estos intercambios se resumen en una revisión ampliamente utilizada de sondas de potencial de membrana mitocondrial.
El azul de metileno interfiere ópticamente en las concentraciones de trabajo exactas. Sus bandas de absorción cercanas a 600 a 665 nm se superponen con la emisión de sondas rojas, por lo que los efectos de filtro interno, la extinción y la absorción de luz de excitación son posibilidades reales. El colorante también es un segundo catión lipófilo cuya propia distribución cambia con el potencial que se está midiendo. La defensa es la redundancia más los blancos: sonda sola, colorante solo, sonda más cada concentración de colorante, despolarización completa con FCCP como referencia cero e idealmente una segunda sonda ópticamente distinta. El estudio del bypass del Complejo III estableció ese precedente al repetir el rescate del potencial de membrana con safranina O y TMRM después de la inhibición por antimicina y mixotiazol, obteniendo la misma recuperación cualitativa. Un único indicador óptico es una pista. Dos indicadores independientes son evidencia.
Tres preparaciones, tres preguntas diferentes
Las mitocondrias aisladas, las células permeabilizadas y las células intactas no son configuraciones de sensibilidad intercambiables de un mismo ensayo. Son conceptos diferentes con principios operativos distintos.
Las mitocondrias aisladas conservan la cadena de transporte electrónico, la membrana interna y la maquinaria de la matriz mientras eliminan la membrana plasmática, el citosol y la arquitectura de red. Esa eliminación es el objetivo: los sustratos, ADP, inhibidores y concentraciones de colorante están definidos exactamente, por lo que puede asignarse una vía. El coste es la pérdida del suministro de sustratos nativo, la señalización y la demanda.
Las células permeabilizadas mantienen las mitocondrias dentro de gran parte de su arquitectura celular mientras permiten el paso de sustratos exógenos y ADP a través de la membrana plasmática abierta. Son la herramienta adecuada para asignar un defecto de vía dentro de un contexto celular. Una permeabilización excesiva daña la membrana externa y elimina la regulación citosólica.
Las células intactas conservan todo: barrera de membrana plasmática, reductores citosólicos, transporte de sustratos endógenos, red mitocondrial y demanda de ATP. Son las más cercanas a la fisiología y las más alejadas del mecanismo, porque la captación, reducción y secuestro del colorante determinan la exposición mitocondrial efectiva.
El estudio de TEGDMA utilizó deliberadamente los tres niveles: mitocondrias cerebrales aisladas para el rescate de la oxidación y el potencial por el colorante, células madre de pulpa dental permeabilizadas principalmente para localizar la lesión en la oxidación de sustratos asociada al Complejo I y células madre intactas para el efecto fisiológico neto de 2 uM de colorante sobre el consumo de oxígeno reducido. Para lectores que comparan lecturas mitocondriales entre preparaciones, el explicador complementario sobre cómo el azul de metileno mueve electrones a través de la cadena respiratoria proporciona el contexto de la vía, y la guía para interpretar estudios de respiración con azul de metileno cubre la lógica de dosis e inhibidores.
Controles que requiere un colorante redox-activo
Un ciclista redox necesita una lista de controles más larga que un inhibidor normal, porque la química exclusiva del colorante puede imitar la biología.
Para la respirometría, ejecute una cámara con solo tampón para la deriva, una cámara con tampón más colorante sin material biológico, colorante más cualquier reductor extracelular presente en el ensayo y rotenona más antimicina terminal para definir el consumo de oxígeno no mitocondrial en células intactas. Tenga en cuenta que el colorante reducido se reoxida transfiriendo electrones al oxígeno para formar peróxido de hidrógeno, por lo que un blanco de colorante sin donador de electrones subestima el consumo de oxígeno sin células que aparece cuando hay NADH o NADPH disponible.
Para el peróxido de hidrógeno, prefiera Amplex UltraRed calibrado más peroxidasa de rábano picante frente a colorantes DCFDA no selectivos, verifique con catalasa y pruebe la dependencia de la iluminación, ya que el colorante es un fotosensibilizador. El estudio de mitocondrias cerebrales encontró que la carga de peróxido aumentó más de cuatro veces con solo 100 nM de colorante mientras la eliminación disminuyó, con peróxido formado directamente por el colorante reducido sin un intermediario de superóxido. Los detalles de elección de sonda y controles de luz pertenecen al artículo complementario sobre medición de especies reactivas de oxígeno en experimentos con colorantes, y la cuestión más amplia de cuándo el peróxido actúa como señal frente a carga se trata junto con el equilibrio redox celular y las afirmaciones sobre antioxidantes.
Para las afirmaciones sobre vías, pruebe ambos sitios inhibidores del Complejo III: antimicina A en el sitio Qi y mixotiazol en el sitio Qo, además de un punto final del Complejo IV con cianuro. Un estudio anterior en cerebro de ratón informó rescate por el colorante de la respiración bloqueada por rotenona pero no por antimicina, mientras que el estudio posterior en tres especies encontró rescate parcial con ambos inhibidores y evidencia de reducción directa del citocromo c. Considere el bypass compatible con los datos más recientes en lugar de establecido definitivamente, ya que la concentración del colorante, el sitio del inhibidor, el estado del sustrato y la distribución del colorante modifican la vía observada.
Matriz de selección de ensayos
Use esta tabla para elegir la medición a partir de la pregunta, no al revés.
| Pregunta biológica | Mejor ensayo | Preparación | Control clave | Confusor común |
|---|---|---|---|---|
| ¿El colorante restaura el flujo electrónico? | Consumo de oxígeno con Oroboros o Seahorse con sustrato e inhibidor definidos | Mitocondrias aisladas para mapeo de vías; células intactas para efecto neto | Blanco de oxígeno solo con colorante; rotenona más antimicina terminal | El ciclo redox consume oxígeno sin producir ATP |
| ¿El colorante restaura la síntesis de ATP? | Tasa cinética de síntesis de ATP, ensayo de luciferasa o enzimático acoplado | Mitocondrias aisladas o células permeabilizadas controladas | Oligomicina; recuperación por adición de ATP conocido más colorante | Inhibición del informador y atenuación óptica; contenido confundido con tasa |
| ¿El rescate es energéticamente eficiente? | Flujo de oxígeno paralelo más tasa de ATP; informar ATP por oxígeno | Mitocondrias aisladas o células permeabilizadas | Los mismos sustratos y ADP en ambas lecturas | El flujo colorante a oxígeno a peróxido aumenta el denominador |
| ¿El colorante restaura el potencial de membrana? | Safranina O en mitocondrias aisladas; TMRM de baja carga en células; segunda sonda cuando sea posible | Adaptar la sonda a la preparación | Despolarización completa con FCCP; escaneo espectral solo con colorante | Absorción y extinción cerca de 600 a 665 nm; cambio en la distribución del colorante |
| ¿El defecto está en el Complejo I? | Respirometría con glutamato más malato o piruvato más malato frente a succinato | Aisladas o permeabilizadas | Referencia con rotenona; comparación con succinato | El colorante proporciona una ruta alternativa, por lo que la actividad del Complejo I puede parecer restaurada cuando fue evitada |
| ¿El defecto está en el Complejo III? | Respirometría con antimicina A y mixotiazol por separado, más potencial en paralelo | Mitocondrias aisladas | Inhibidores de los sitios Qi y Qo; punto final del Complejo IV | El estado redox del colorante y la distribución compartimental determinan la ruta |
| ¿El colorante aumenta la carga de peróxido? | Amplex UltraRed más peroxidasa, calibrado; sensor ortogonal en células | Adaptar a la pregunta planteada | Catalasa; sin peroxidasa; control oscuro frente a luz | El propio colorante realiza ciclos redox y fotosensibiliza la formación de peróxido |
La afirmación mínima convincente utiliza las