
Článek
Methylenová modř jako antioxidant a prooxidant: co mění výsledek?
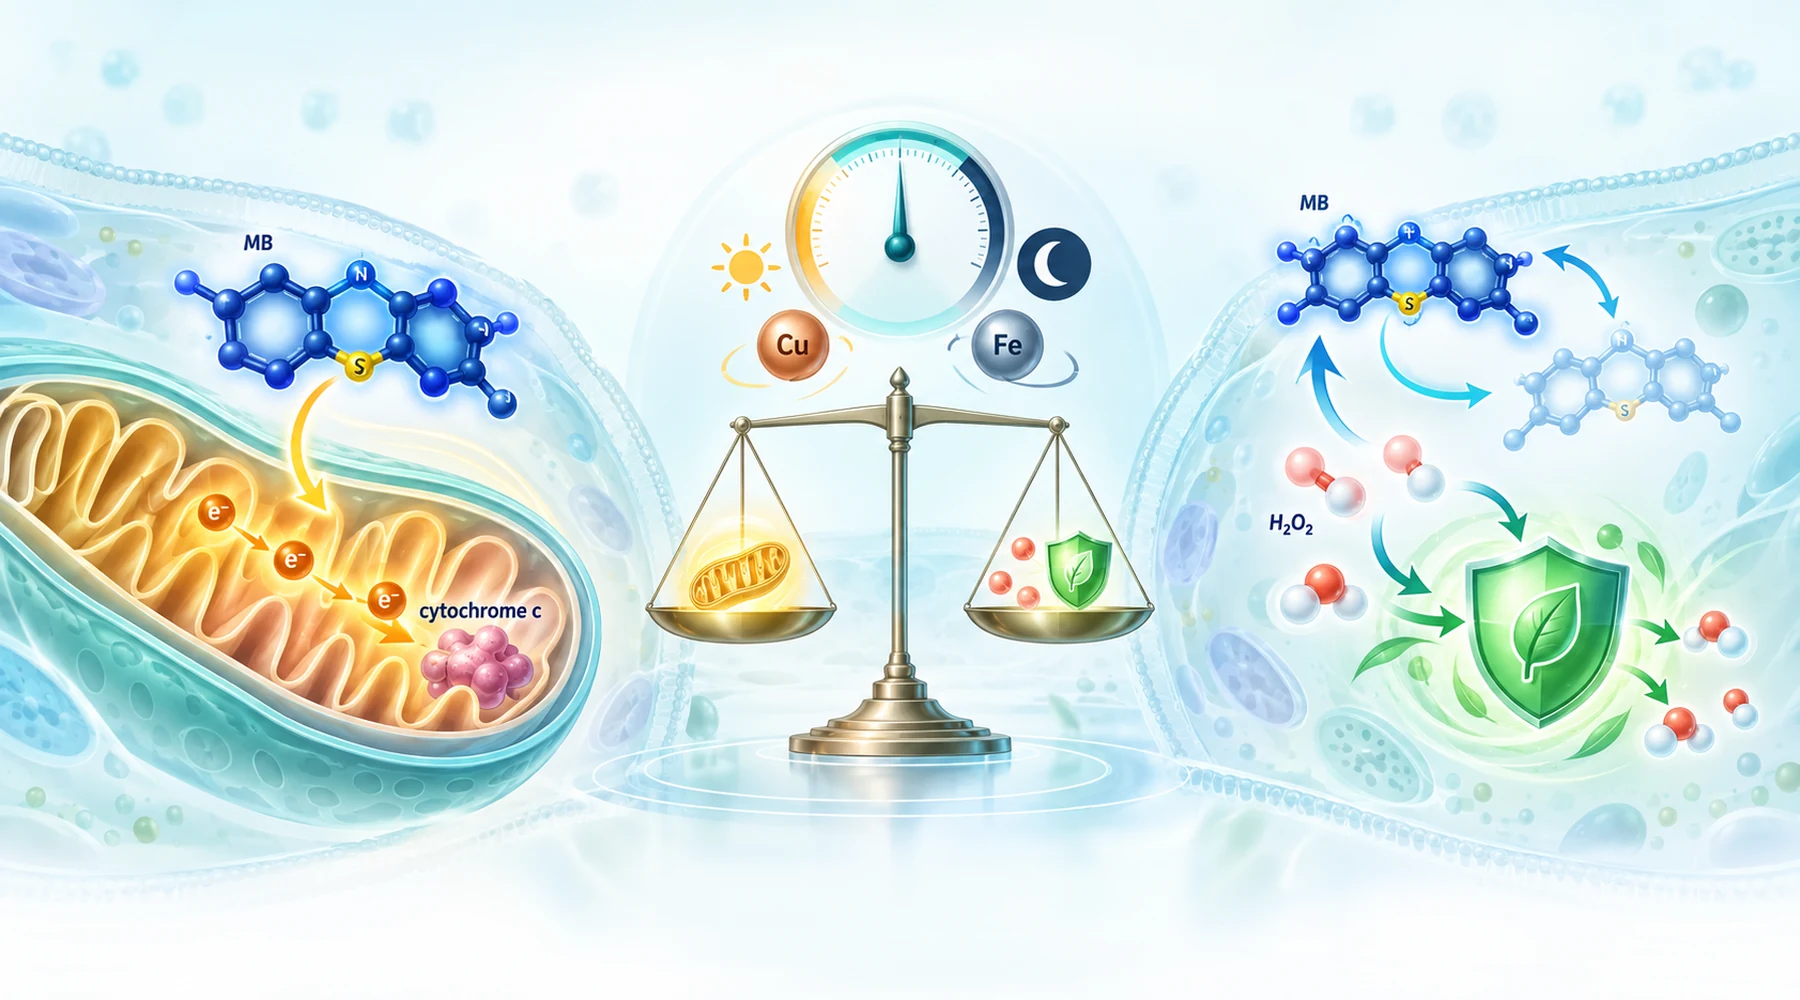
Představme si, že dvě laboratoře testují stejné modré barvivo a oznámí opačné výsledky. V první izolované mozkové mitochondrie lépe respirují a vytvářejí více ATP. Ve druhé stejný preparát uvolňuje mnohem více peroxidu vodíku. Obě zprávy jsou správné. Popisují tentýž cyklus ze dvou stran a zmatek začíná ve chvíli, kdy čtenáři považují jednu stranu za celý příběh.
Chybou je ptát se, která nálepka se k molekule hodí. Methylenová modř funguje jako prostředník při přenosu elektronů, jak v širším kontextu ukazuje mapa jejích buněčně biologických cílů. Oxidované barvivo přijímá elektrony a mění se na bezbarvou leucoMB. LeucoMB předává tyto elektrony dál a znovu modrá. To, co pozorujete, závisí na tom, kdo elektrony daruje, kdo je přijímá a zda systém dokáže odstranit peroxid vodíku, který přitom vzniká. Smysluplná otázka nikdy nezní, zda je barvivo antioxidant. Zní, co dané podmínky umožňují tomuto prostředníkovi dělat.
Cyklus, který vytváří obě tváře
Ve tmě je základní cyklus krátký. NADH, NADPH nebo přenašeče v dýchacím řetězci redukují barvivo. Redukované barvivo pak má několik konkurenčních cest. Může předat elektrony cytochromu c a podpořit jejich tok kolem poškozeného komplexu, což vysvětluje, proč se při blokádě komplexu I nebo III částečně obnovuje respirace a membránový potenciál. Nebo může předat elektrony přímo kyslíku, čímž se obnoví modrá forma a vznikne peroxid vodíku. Protože se barvivo regeneruje, může i malé množství tento cyklus mnohokrát opakovat, průběžně spotřebovávat redukční ekvivalenty a průběžně vytvářet peroxid.
Další dvě větve chemii zcela mění. Volná měď nebo železo přeměňují tento difundující peroxid prostřednictvím reakcí Fentonova typu na mnohem ničivější lokální oxidanty. Červené světlo otevírá samostatnou fotochemickou větev, v níž excitované barvivo předává energii kyslíku a vytváří singletový kyslík, jehož podrobný popis najdete ve vysvětlení fotochemie typu I a typu II. Redoxní cyklování ve tmě, poškození zesílené kovy a fotodynamické poškození jsou tři různé mechanismy, které jen sdílejí stejnou výchozí molekulu.
Matice podmínek a výsledků
Následující tabulku stojí za to si uchovat. Každý řádek uvádí jednu proměnnou, směr jejího působení a experiment, který za tím stojí. Příznivý znamená ochranný účinek nebo zlepšený měřený ukazatel. Nepříznivý znamená více oxidantů, větší vyčerpání zásob nebo více poškození.
| Podmínka | Směr výsledku | Co experiment ukázal |
|---|---|---|
| Nízká koncentrace, 0.1 až 1 uM, izolované mitochondrie | Příznivá bioenergetika a zároveň více peroxidu | 0.1 uM zlepšilo spotřebu kyslíku v srdečních mitochondriích zdravých a diabetických potkanů; 100 nM až 1 uM částečně obnovilo ATP, membránový potenciál a příjem vápníku v mozkových mitochondriích s blokovaným dýchacím řetězcem, zatímco uvolňování peroxidu vzrostlo za všech podmínek |
| Vyšší koncentrace, nad 5 uM, buňky bez přísunu glukózy | Nepříznivý signál oxidantů | Při nepřítomnosti glukózy endoteliální buňky nad 5 uM oxidovaly obecnou sondu pro ROS a ztrácely redukovaný glutathion; přidání glukózy zabránilo obojímu |
| Substráty komplexu I (glutamát a malát) | Více peroxidu | Studie mozkových i srdečních mitochondrií zjistily zvýšené uvolňování peroxidu se substráty navázanými na NADH |
| Sukcinát a rotenon, srdeční mitochondrie, 0.1 uM | Méně peroxidu v tomto protokolu | Jediný jednoznačně antioxidační výsledek měření peroxidu v tomto souboru; protokol však zahrnoval rotenon a jinou tkáň, takže samotný substrát jej nevysvětluje |
| Červené světlo, 20 uM a 630 nm | Nepříznivé poškození DNA | Ve tmě při 20 uM žádné významné léze mitochondriální DNA; stejná koncentrace s červeným světlem poškodila každý testovaný fragment |
| Velmi vysoká koncentrace ve tmě, 100 uM | Nepříznivé selektivní poškození DNA | Selektivní léze mitochondriální DNA v sekvencích bohatých na puriny, skoková změna oproti peroxidovému signálu při nanomolárních koncentracích |
| Měď nebo železo a NADH, DNA v bezbuněčném systému | Nepříznivé oxidační léze | Měď směřovala poškození do sekvence p53 s vysokým výskytem mutací; komplex železa s EDTA způsobil rozsáhlé poškození; kataláza a chelátory kovů blokovaly příslušné dráhy; množství oxidovaného guaninu vzrostlo |
| Přítomná glukóza, neporušené buňky | Ochranné tlumení navzdory rychlejšímu cyklování | Glukóza zvýšila redukci barviva, ale snížila výsledný stres, což odpovídá přísunu NADPH z pentózofosfátové dráhy pro recyklaci antioxidantů |
| Buňky se zvýšeným obsahem askorbátu | Smíšený: spotřeba askorbátu, utlumení signálu sondy | Barvivo postupně oxidovalo nitrobuněčný askorbát i za přítomnosti glukózy a zároveň částečně potlačovalo oxidaci sondy; náklady nesly obranné zásoby |
| Zvířata předem ošetřená rotenonem, barvivo podáno jako první | Příznivý výsledek ve tkáni | Předchozí podání barviva snížilo léze mitochondriální DNA vyvolané rotenonem ve středním mozku myší, přestože v izolovaných mitochondriích zvyšovalo peroxid |
Podstatný je vzorec napříč řádky. Tvorba peroxidu a biologická ochrana jsou dvě oddělené osy. Jeden zásah může na první vycházet nepříznivě a na druhé příznivě současně.
Proč stejná dávka dává různé odpovědi
Koncentrace určuje kapacitu přenosu elektronů, nikoli jeho výsledek. Uvolňování peroxidu z mozkových mitochondrií prokazatelně rostlo od 50 nM výše ve studii neporušených mozkových mitochondrií, zatímco zjevné poškození mitochondriální DNA ve tmě vyžadovalo 100 uM. Mezi prvním signálem a genotoxicitou je tedy přibližně dvoutisícinásobný rozdíl, ale nejde o bezpečnostní rezervu. Sledované ukazatele, buněčné kompartmenty a doby expozice se liší, takže tato čísla označují odlišné jevy, nikoli body na jedné křivce. Rozbor vztahu mezi dávkou a odpovědí zasazuje tento typ rozdílu mezi signálem při nízké koncentraci a poškozením při vysoké koncentraci do širšího kontextu hormeze.
Substrát rozhoduje o tom, kde elektrony vstupují. Zdroje energie navázané na NADH poskytují barvivu hojnost redukčních ekvivalentů jak pro užitečné obejití blokády, tak pro neproduktivní reakci s kyslíkem. Často citované shrnutí, že sukcinát dělá z barviva antioxidant, zatímco glutamát prooxidant, vyvozuje z dat příliš mnoho. Podmínky měření peroxidu se sukcinátem v srdeční studii totiž zahrnovaly také rotenon a lišily se tkání i dávkou od studie mozkových mitochondrií, která zjistila zvýšený peroxid při každém substrátu a respiračním stavu.
Světlo mění mechanismus, nejen rozsah účinku. Nejjasnější kontrast v tomto souboru představuje 20 uM ve tmě bez zjistitelného účinku na fragmenty mitochondriální DNA a 20 uM pod červeným světlem, které poškodilo všechny. Kdo porovnává osvětlený experiment s experimentem ve tmě, porovnává fotochemii s redoxním cyklováním.
Kovy přeměňují oxidant. Bez kovů vytváří cyklus barviva ve tmě peroxid, difundující molekulu, kterou buňky používají také jako signál. Při dostupnosti mědi nebo železa podporuje barvivo redukované pomocí NADH redukci kovu a redukovaný kov aktivuje peroxid na hydroxylové nebo peroxidové formy mědi v blízkosti DNA. Takto studie v bezbuněčném systému s NADH a kovovými ionty vytvořila ze stejného výchozího barviva jak poškození DNA selektivní pro místa s vysokým výskytem mutací, tak rozsáhlé poškození. O významu této větve rozhoduje zacházení s kovy v daném kompartmentu, nikoli samotné barvivo.
Dostupnost zdrojů energie rozhoduje, zda buňka dokáže náklady uhradit. U endoteliálních buněk vystavených 2 až 20 uM barviva odnětí glukózy odhalilo oxidační náklady, zatímco její přísun je odstranil, přestože glukóza zároveň urychlovala redukci barviva. Rychlejší cyklování s dostatečně zásobenými obrannými mechanismy je lepší než pomalejší cyklování s vyčerpanou obranou. Každé tvrzení o oxidantech, které opomíjí dostupnost glukózy nebo NADPH, považujte za neúplné.
Tkáň rozhoduje o vybavení. Endoteliální buňky regenerují NADPH prostřednictvím metabolismu glukózy a mají cytosolické zásoby antioxidantů. Izolované mitochondrie nic z toho nemají. Purifikovaná DNA nemá ani opravné mechanismy. Výsledek v jednom preparátu vypovídá jen málo o ostatních, a proto bude plánovaný článek o tkáňově specifických odpovědích muset tyto systémy posuzovat odděleně.
Přímé měření není totéž co následná obrana
Mnoho textů směšuje dvě roviny, které experimenty oddělují. Jedna se ptá, kolik oxidantu vzniklo. Druhá se ptá, jak buňka odpověděla.
Testy peroxidu typu Amplex jsou nejblíže první rovině, a i ty vykazují čistý tok, tedy tvorbu minus odbourávání minus export. Studie mozkových mitochondrií zjistila změny na obou stranách: vznikalo více peroxidu a přidaný bolus peroxidu se odstraňoval pomaleji. Dále v řetězci následují oxidace glutathionu, spotřeba askorbátu, oxidovaný guanin a léze DNA blokující polymerázu. Každý krok přidává mezi oxidant a měřený ukazatel další biologické děje.
Antioxidační enzymy řízené Nrf2 a mitochondriální biogeneze patří do druhé roviny. Jde o adaptační programy, které může spustit mírný pulz peroxidu, a autoři studie ochrany mozkových mitochondrií navrhují právě tento spouštěč v podobě mírného stresu. Zároveň uvádějí, že příčinný řetězec přes Nrf2 stojí na předchozích pracích, nikoli na jejich vlastním úplném průkazu. Ochrana, která přichází o několik hodin později prostřednictvím nových proteinů, neznamená, že počáteční chemický děj byl antioxidační. Znamená, že malá prooxidační událost zajistila větší obranu. Zásady pro čtení takových tvrzení, včetně omezení testů a rozdílů mezi preparáty, jsou tématem průvodce čtením výzkumu methylenové modři.
Proč se testy navzájem neshodují
Obecná sonda, například dihydrofluorescein, vykazuje široce pojatou oxidaci sondy, nikoli koncentraci peroxidu. Závisí na chemii peroxidáz a hemu a může přehlédnout vzestup peroxidu, který kalibrovaný test Amplex zachytí. Studie mozkových mitochondrií zaznamenala prudce zvýšený peroxid bez odpovídajícího signálu superoxidu, což varuje před citováním jakéhokoli antioxidačního tvrzení založeného na jediném barvivu. Optický překryv je oprávněnou otázkou pro kontrolní experimenty, protože barvivo absorbuje viditelné světlo poblíž běžných excitačních a emisních pásem. Pečlivě provedená studie však použila kalibraci vůči známému množství peroxidu, omezila expozici excitačnímu světlu s jen malou změnou signálu a potvrdila pomalejší odstraňování peroxidu samostatnou elektrodou. Interference je něco, co je třeba ověřit kontrolním experimentem, nikoli důvod k automatickému odmítnutí výsledku.
Výsledek týkající se vápníku ilustruje stejnou potřebu přesnosti. Akutní působení barviva nezměnilo celkovou vápníkovou zátěž před přechodem permeability ve studii srdečních mitochondrií, přesto zlepšilo rychlost příjmu vápníku v mozkových mitochondriích s blokovaným dýchacím řetězcem ve studii srdečních mitochondrií zaměřené na diabetes. Různé sledované ukazatele, různé systémy, žádný rozpor.
Kontrolní seznam, než uvěříte závěru
Každý závěr o antioxidačním nebo prooxidačním působení berte jako zprávu o konkrétním systému a položte si pět otázek. Při jaké koncentraci a v jakém kompartmentu? S jakým donorem elektronů a jakým konkurenčním akceptorem? Na světle, nebo ve tmě, a při jaké vlnové délce a dávce? S jakými dostupnými kovy a jak zásobenými zdroji energie a antioxidačními rezervami? A s jakým testem, který měří tok oxidantů, poškození, nebo adaptační odpověď? Změňte kteroukoli odpověď a stejná molekula se může v matici přesunout od ochranného působení k poškozujícímu, aniž by v tom byl jakýkoli paradox.