
Článek
Methylenová modř a zrak: co ukazuje výzkum sítnice a kde končí
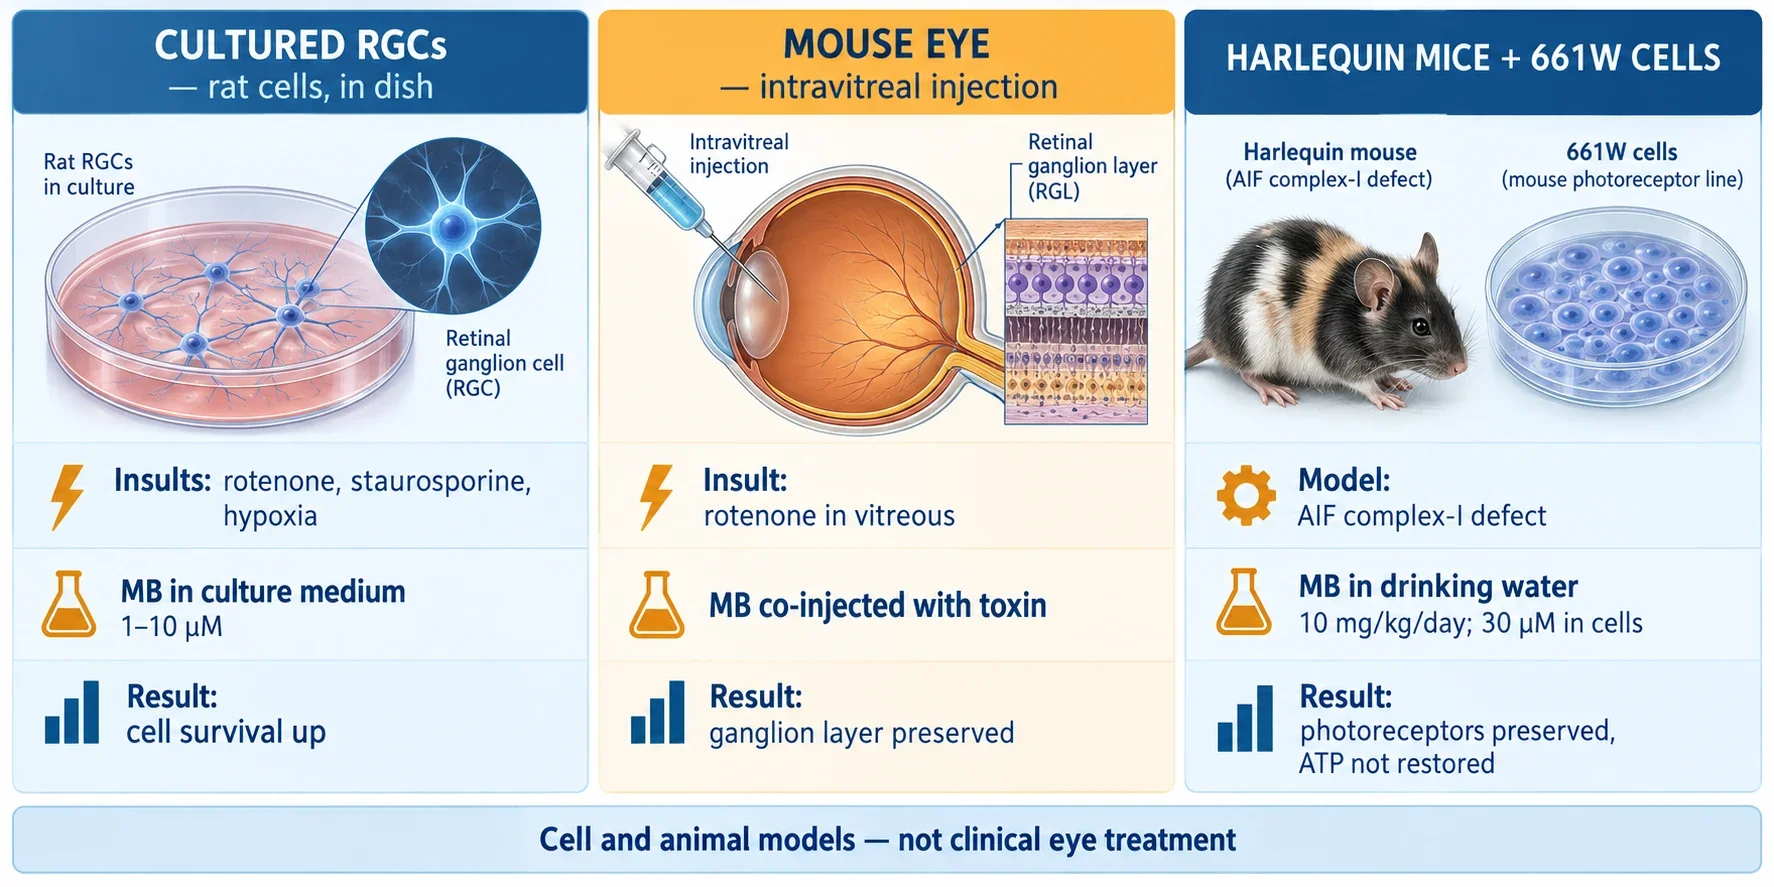
Čtenář narazí na studii, v níž methylenová modř chránila sítnici, a položí si přirozenou otázku: měla by se aplikovat do oka? Výzkum methylenové modři ve vztahu ke zraku na tuto otázku neodpovídá, protože žádná z klíčových studií takové použití netestovala. Jedna podávala barvivo injekčně do sklivce myší současně s toxinem. Druhá je přidávala do média obklopujícího izolované buňky v kultivační misce. Třetí je přidávala do pitné vody mutantních myší. Každý výsledek platí pro konkrétní způsob podání a konkrétní model.
Tento článek probírá tři preklinické studie, dva typy buněk sítnice a hranici mezi ochranou v laboratoři a klinickou léčbou očí. Výsledky mají společný vzorec: methylenová modř může za kontrolovaných podmínek ovlivnit mitochondriální stres v buňkách sítnice, ale toto zjištění neopravňuje k aplikaci běžně prodávaných roztoků do oka.
Dva typy buněk, dvě odlišná onemocnění
Sítnice je tvořena vrstvami a záleží na tom, o kterou vrstvu jde. Světlo nejprve dopadá na fotoreceptory ve vnější části sítnice. Jejich signály procházejí přes mezilehlé neurony ke gangliovým buňkám ve vnitřní části sítnice, jejichž axony vystupují z oka zrakovým nervem. Následující schéma uvádí vrstvy v jejich pořadí.
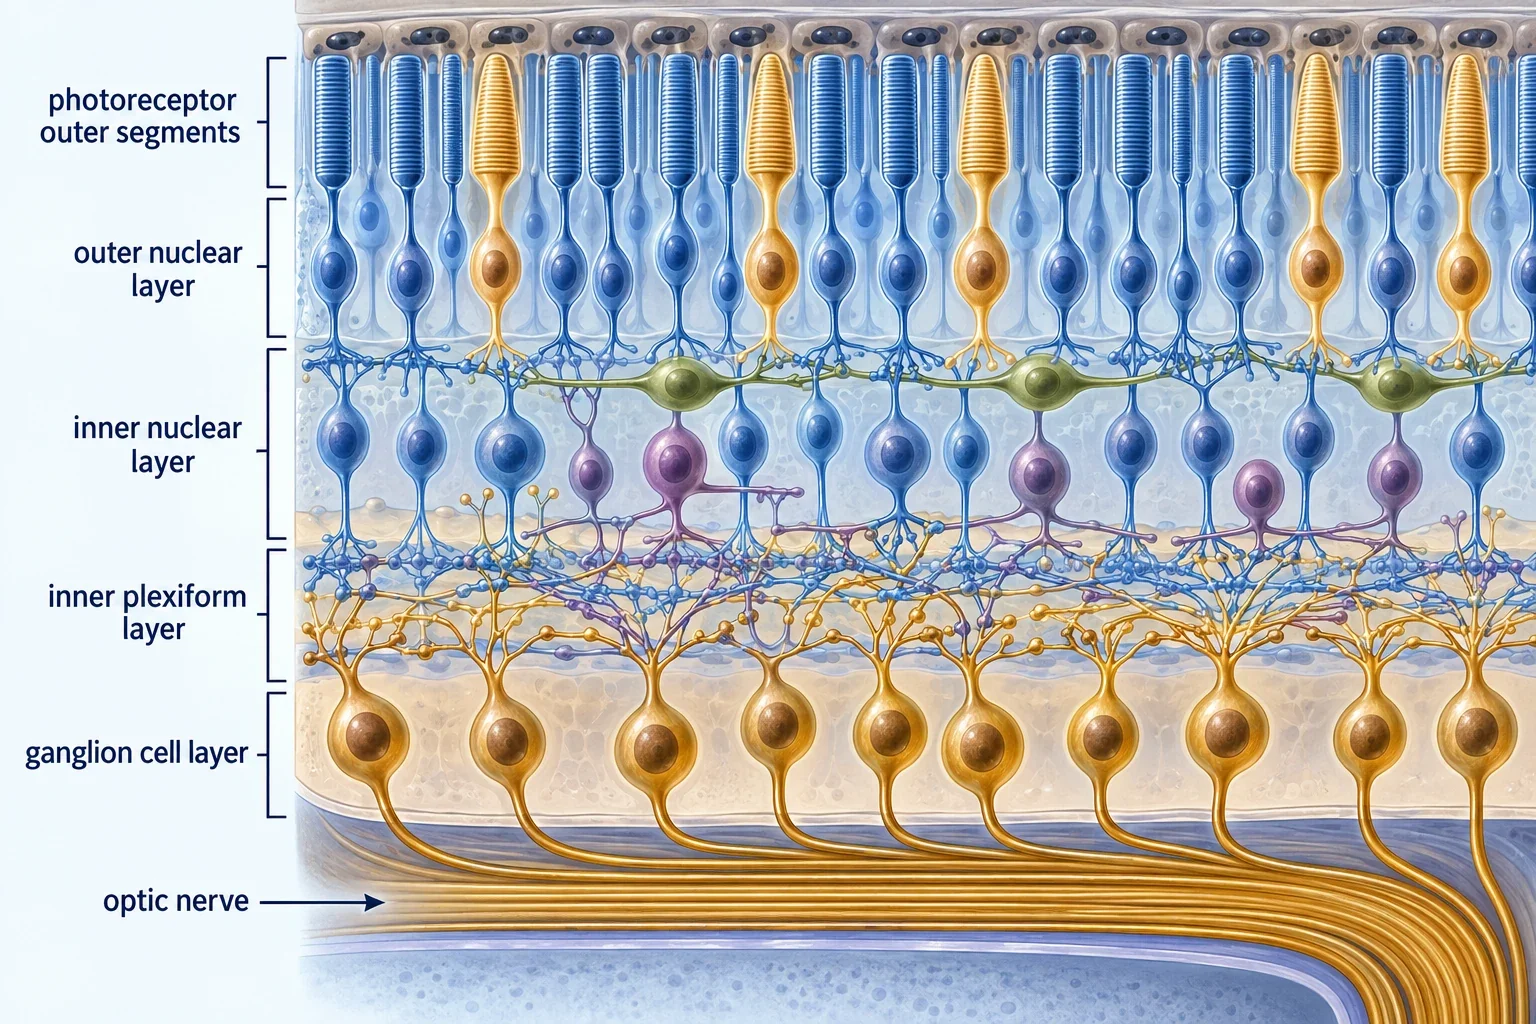
Gangliové buňky sítnice jsou buňky ohrožené při glaukomu a neuropatii zrakového nervu. Když se ve vyhledávání objevuje methylenová modř v souvislosti s glaukomem, obvykle jde o tuto vnitřní vrstvu a její axony. Fotoreceptory jsou buňky ohrožené při degeneraci vnější části sítnice. Mají nejvyšší energetické nároky v sítnici a pracují blízko limitu své respirační kapacity, takže při selhání mitochondriálního komplexu I mají jen malou rezervu. Výsledek získaný u jednoho typu buněk nelze přenášet na druhý a tři níže uvedené studie je posuzují odděleně. Obecný postup, jak oddělovat modely od závěrů, vysvětluje článek jak číst výzkum methylenové modři.
Gangliové buňky v živém myším oku
V nejstarší ze tří studií výzkumníci modelovali neuropatii zrakového nervu mikroinjekcí rotenonu do sklivce jednoho myšího oka a druhé oko použili jako kontrolu, do níž podali pouze vehikulum. Rotenon blokuje mitochondriální komplex I, vstupní místo, které předává elektrony z NADH dál. Porucha komplexu I je také rysem, který tento model spojuje s Leberovou hereditární neuropatií optiku, onemocněním gangliových buněk a zrakového nervu.
O dvacet čtyři hodin později byla vrstva gangliových buněk v očích vystavených rotenonu tenčí a obsahovala méně buněk než v kontrolních očích. Když byla methylenová modř podána současně s rotenonem, tomuto poškození zabránila v závislosti na dávce. Nejvyšší testovaná dávka (0.07 mg/kg, hluboko pod myší LD50) zachovala tloušťku vrstvy i počet buněk. Souběžné testy v mozkových homogenátech ukázaly dva účinky: methylenová modř zvrátila oxidační stres vyvolaný rotenonem i pokles spotřeby kyslíku. Autoři navrhli excitotoxický mechanismus, při němž rotenon poškozuje modulační amakrinní buňky, gangliové buňky vykazují nadměrnou aktivitu a antioxidační působení přerušuje následné poškozování. Navrhované chemické děje za touto ochranou podrobně popisuje článek mitochondriální mechanismy methylenové modři.
Tento výsledek má tři omezení. Barvivo bylo podáno injekčně přímo do oka současně s toxinem, což je způsob podání, nikoli léčebný režim. Doba sledování činila 24 hodin. A naměřené hodnoty aktivity cytochromoxidázy vzrostly v obou skupinách s poškozením, což autoři vykládali jako nadměrnou aktivitu, nikoli jako důkaz obnovené respirace v živé sítnici.
Gangliové buňky izolované v kultivační misce
Druhá studie oko zcela vynechala. Výzkumníci izolovali primární gangliové buňky sítnice mladých potkanů a vystavili je rotenonu, induktoru apoptózy staurosporinu nebo 72 hodinám nízké hladiny kyslíku. Poté měřili přežití pomocí barvení rozlišujícího živé a mrtvé buňky. Methylenová modř v kultivačním médiu při koncentracích 1 a 10 mikromolárních zlepšila přežití při každém z těchto škodlivých podnětů, přibližně 1.5 až 1.9násobně podle podmínek. Doplňující test ukázal, že methylenová modř zachovala aktivitu cytochrom c oxidázy při působení peroxidu vodíku.
Jde o farmakologii izolovaných buněk. Látka se k buňkám dostávala difuzí přes kultivační médium v definované koncentraci, bez rohovky, slzného filmu, čočky, sklivce, krevního zásobení či imunitního systému v cestě. Právě tato jednoduchost je smyslem modelu: ukazuje, že samotné gangliové buňky lze chránit, když se k nim látka dostane. Nevypovídá však o tom, zda by kapka na povrchu rohovky dopravila do vnitřní části sítnice nějakou definovanou koncentraci. Koncentracím nad 10 mikromolárních se výzkumníci vyhnuli kvůli toxicitě pro tytéž buňky. To připomíná, že závislost účinku na dávce v kultivační misce může působit oběma směry.
Fotoreceptory u mutantních myší a v buněčné linii
Třetí studie se týká vnější části sítnice. Výzkumníci použili myši Harlequin, které mají nedostatek faktoru indukujícího apoptózu, kvůli němuž komplex I není úplně sestaven, a ve věku 11 měsíců zkoumali strukturu fotoreceptorů, markery vnějších segmentů a integritu mitochondrií. Methylenová modř byla po odstavení podávána systémově v pitné vodě v množství přibližně 10 mg/kg za den. Mutantní myši, které ji dostávaly, si oproti mutantům bez tohoto podávání zachovaly větší tloušťku sítnice, více markerů rodopsinu a opsinu a zdravější strukturu mitochondrií.
Souběžná buněčná část studie použila buňky 661W, imortalizovanou myší buněčnou linii podobnou fotoreceptorům, vystavenou rotenonu s methylenovou modří nebo bez ní po dobu 24 hodin. Přežití se zlepšilo při koncentraci 30 mikromolárních a nižší koncentrace normalizovaly poměr NADH k NAD+ a snížily oxidační stres. Pozoruhodné je, co methylenová modř neudělala: neobnovila ATP. Ochrana souvisela se zmírněním redoxního stresu a utlumením stresových drah, včetně mitochondriální odpovědi na nesložené proteiny a markerů mitofagie, nikoli s obnovením dodávky energie.
Toto rozlišení je důležité pro tvrzení o methylenové modři a sítnici. Látka může udržet stresovaný fotoreceptor naživu, aniž by napravila jeho energetický deficit. Jakýkoli výklad léčebného potenciálu se tím omezuje na redoxní stres, nikoli na celkové omlazení.
Tři studie vedle sebe
Následující srovnání u každé studie uvádí model a způsob podání, protože právě tyto dva sloupce určují, jaké závěry může výsledek podpořit.
| Studie | Model | Způsob podání methylenové modři | Co bylo zachováno |
|---|---|---|---|
| Zhang a kolegové, myší neuropatie zrakového nervu | Živá myší sítnice poškozená rotenonem | Injekčně do sklivce současně s toxinem | Tloušťka vrstvy gangliových buněk a počet buněk po 24 hodinách |
| Daudt a kolegové, primární potkaní gangliové buňky | Izolované gangliové buňky v kultuře | Rozpuštěná v kultivačním médiu při koncentraci 1 až 10 mikromolárních | Přežití buněk při působení rotenonu, staurosporinu a hypoxie |
| Mekala a kolegové, myši Harlequin a buňky 661W | Genetická porucha komplexu I a buňky podobné fotoreceptorům | Pitná voda v množství 10 mg/kg za den; 30 mikromolárních v buněčném médiu | Struktura fotoreceptorů a integrita mitochondrií bez obnovení ATP |
Každý řádek popisuje preklinický výzkum. Žádná z těchto studií nezahrnovala pacienty, neměřila zrak ani netestovala oční lékovou formu.
Proč nejde o léčbu glaukomu
Léčba glaukomu snižuje nitrooční tlak. Neuroprotekce usiluje o něco jiného: udržet gangliové buňky a jejich axony naživu při stresu. Výše uvedené studie patří k druhému přístupu, nikoli k prvnímu. Žádná z nich nesnižovala tlak a žádná neporovnávala methylenovou modř s léčbou snižující tlak. Proto zůstávají zavedené přístupy k léčbě glaukomu a regulaci tlaku samostatnou otázkou, odlišnou od redoxní neuroprotekce, a proto nelze výsledek týkající se přežití buněk vykládat jako zachráněný zrak.
Rozdíly ve způsobu podání tento závěr dále posilují. Současná injekce do sklivce umístí známé množství látky vedle sítnice v okamžiku poškození. Podávání v pitné vodě vystavuje látce celé zvíře po dobu měsíců, přičemž koncentrace v sítnici není známá. Kultivační médium působí přímo na samotné buňky. Žádný z těchto způsobů nepředpovídá, jaká část lokálně podané dávky by prošla rohovkou, unikla odplavení slzami, prošla čočkou a sklivcem a dorazila do některé vrstvy sítnice v prospěšné koncentraci. Tento problém dopravení látky na místo účinku je součástí širší otázky způsobů podání a distribuce methylenové modři, kde každý způsob podání vyžaduje vlastní měření koncentrací.
Rozdíly mezi tkáněmi představují druhou překážku. Barvivo, které se dostane do přední části oka, se tím ještě nedostalo do jeho zadní části, a koncentrace, která pomáhá jedné vrstvě, může jinou poškodit. Běžně prodávané roztoky nejsou vyráběny, sterilizovány, pufrovány ani konzervovány jako oční přípravky a při kontaktu s rohovkou i při nitrooční expozici záleží na čistotě, pH, osmolalitě a pomocných látkách. Nic v těchto zjištěních o sítnici nepotvrzuje vhodnost aplikace takových roztoků do oka nebo na jeho povrch. Otázky ohledně standardů přípravy patří k bezpečnosti a zacházení s methylenovou modří.
Kde důkazy končí
Při společném posouzení tyto tři práce podporují úzce vymezené tvrzení: za kontrolovaných podmínek může methylenová modř zmírnit mitochondriální redoxní stres v neuronech sítnice a zachovat jejich strukturu. Platnost tvrzení končí tam, kde končí tyto podmínky. Modely založené na toxinu a genetické poruše komplexu I nejsou glaukomem, drúzami ani diabetickým onemocněním. Krátké doby sledování a strukturální ukazatele nejsou dlouhodobě zachovaným zrakem. A ochranná koncentrace v jednom kompartmentu není dávkou pro jiný.
Silnější podklady by vyžadovaly několik samostatných částí: definovanou expozici sítnice po klinicky použitelném způsobu podání, funkční ukazatele zraku u zvířat, přínos nezávislý na tlaku v modelu relevantním pro glaukom a následně údaje o bezpečnosti a účinnosti u lidí. Dokud nebudou k dispozici, zůstává vztah methylenové modři a zraku výzkumnou hypotézou s jasnými hranicemi: věrohodné mitochondriální farmakologické působení v sítnici, prokázané pouze na buňkách a zvířatech, bez cesty od těchto studií k léčbě očí.