
文章
亚甲蓝与 NAD+/NADH:解读细胞氧化还原平衡
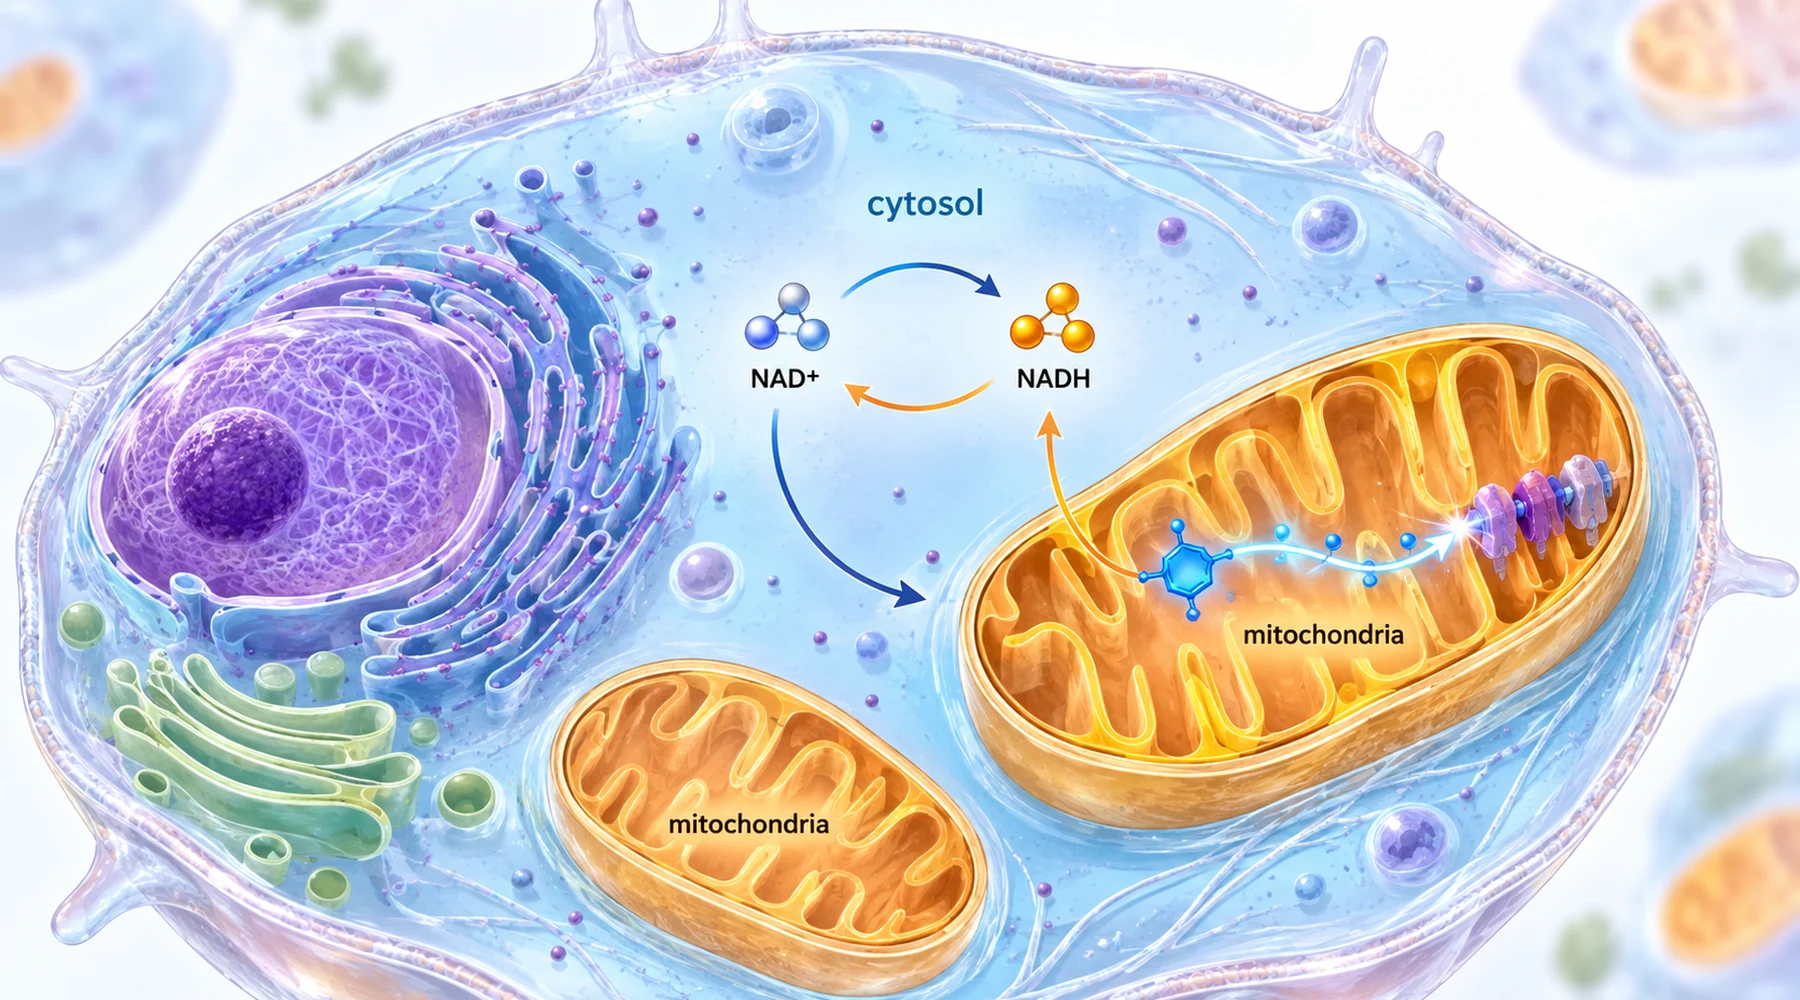
关于亚甲蓝和 NAD+ 的报告经常把三个不同的说法混合成一个。第一个说法是 NAD+ 与 NADH 的比例向氧化态移动。第二个说法是细胞拥有更多总 NAD。第三个说法是能量生成恢复。这些听起来像是同一个恢复代谢的故事。但在实验中,它们经常彼此分离,而最有意义的结果正是它们发生分歧的情况。
这种混淆可以理解,因为这三个量共享同一套术语。NAD+ 在代谢反应中接受电子并转变为 NADH,随后线粒体在复合体 I 中将 NADH 氧化回 NAD+,并利用释放的能量驱动 ATP 合成。关于电子路径的完整说明见线粒体电子传递解释,能量部分见ATP 和能量代谢。但比例和总库是不同对象。比例表示现有“运输分子”在携带电子和未携带电子状态之间的分布。总库表示这些分子总共有多少。相同总库下更好的比例意味着重新分配,而不是生成新的分子。
两个区室,两种报告指标
还有第二个区别会造成隐性的误读。胞质和线粒体 NAD 库大部分由线粒体内膜隔开,因此每个区室可以独立处于相对氧化或还原状态。单一的全细胞数值会掩盖这种差异。

肝脏研究使这种区室差异可以被测量。乳酸与丙酮酸平衡反映胞质 NAD+/NADH 比例,因为乳酸脱氢酶将这两组分联系起来。3-羟丁酸与乙酰乙酸平衡则通过类似耦合反映线粒体比例。当两组指标都从冷冻钳制组织中测量时,例如慢性乙醇喂养大鼠研究,同一个肝脏可以得到两种氧化还原读数,而某种化合物可能影响其中一种更多。
亚甲蓝在该系统中作为电子穿梭体发挥作用,而不是作为燃料。它在复合体 I 附近接受 NADH 的电子并被还原,然后将电子传递给细胞色素 c 等下游载体。净效果是在不经过完整正常路径的情况下促进 NADH 氧化。这解释了它的作用范围:它可以缓解还原压力积累,但不能修复受损复合体或合成新的 NAD 分子。
五项研究,一个分化结果模式
下表按组织、氧化还原终点、能量终点以及实际恢复情况排列五项研究。最后两列应结合阅读。这种结合正是本文重点。
| 组织和损伤 | 亚甲蓝影响下的氧化还原终点 | 能量和信号终点 | 功能结果 |
|---|---|---|---|
| 大鼠肝脏,慢性乙醇饮食 | 胞质和线粒体 NAD+/NADH 比例大体恢复;甘油-3-磷酸正常化 | ATP 未因乙醇或治疗改变;晚期时间点染料导致 ATP 轻微下降 | 脂肪浸润未改变;脂质和三酰甘油仍然升高 |
| 肝细胞和高脂饮食小鼠肝脏 | 细胞和肝脏中的 NAD+/NADH 比例及 NAD+ 含量升高 | SIRT1 增加,PGC-1alpha 去乙酰化,线粒体 DNA 和氧利用增加,SIRT1 依赖的 AMPK 激活 | 肝脂积累和脂肪性肝炎减少 |
| 糖尿病大鼠心脏 | 分离线粒体进行底物氧化时 NADH/NAD+ 比例降低 | SIRT3 活性升高;34 种蛋白的 83 个位点赖氨酸乙酰化降低 | 心脏容积和射血分数改善;复合体 I 缺陷本身未被纠正 |
| AIF 缺陷小鼠视网膜和鱼藤酮处理的感光细胞 | 细胞内 NADH/NAD+ 比例正常化;氧化应激降低 | 细胞 ATP 缺陷未纠正;线粒体压力通路降低 | 视网膜厚度和感光细胞标志物保持;细胞存活改善 |
| 人和大鼠跟腱,氧化剂和胶原酶损伤 | NAD+ 平衡和总 NAD 化学状态恢复接近对照 | 在产生恢复的情况下 ATP 升高且 ROS 降低 | 基质标志物改善,但直接复合体 I 阻断时化学变化而组织未恢复 |
氧化还原修正未能恢复组织的情况
该系列中最早的研究仍然是最明确的警示。大鼠摄入占能量 36% 的乙醇后,通过两组报告指标测得胞质和线粒体 NAD+/NADH 比例降低,而饮食中约 42 mg/kg/天的亚甲蓝基本阻止了这些变化。然而,在晚期时间点,无论是否加入染料,肝脏三酰甘油都大约增加三倍,组织学显示相同的中央小叶脂肪。作者直接提出一个关键推论:伴随乙醇氧化出现的氧化还原变化本身并不是导致脂肪肝的唯一因素。如果将比例恢复视为器官恢复,读者会误解该论文。完整设计,包括配对喂养对照和中毒峰值时午夜取样,见乙醇肝脏研究。
相比之下,高脂饮食肝脏研究中,同类比例变化与真实组织改善同时出现。在肝细胞和口服给药后的小鼠肝脏中,亚甲蓝提高了 NAD+/NADH 比例,信号链被逐步追踪:SIRT1 增加,PGC-1alpha 去乙酰化,线粒体生成标志物和氧消耗升高,随后 AMPK、CPT-1 和 PPARalpha 被激活,其中 AMPK 激活依赖 SIRT1。高脂饮食小鼠积累较少肝脂。研究提出的逻辑是,此处氧化还原变化开启了基因调控轴,而不仅仅是重新平衡化学状态,详见SIRT1 和 AMPK 肝脏研究。与乙醇研究使用相同测量体系,但组织结果相反。差异在于下游通路,而不是比例本身。
心脏和视网膜:长寿蛋白、乙酰化以及 ATP 的独立恢复
糖尿病心脏研究通过另一种长寿蛋白将氧化还原变化与蛋白乙酰化联系起来。糖尿病线粒体中的代谢酶存在过量赖氨酸乙酰化,这与底物适应能力下降相关。每天 10 mg/kg 的亚甲蓝通过剂量依赖方式促进 NADH 氧化,在分离线粒体中 6 至 18 微摩尔范围内提高 SIRT3 活性,并广泛降低乙酰化水平,同时改善心脏容积和射血分数,尽管基础复合体 I 功能障碍仍存在。论文明确说明其他文献中的剂量行为:低浓度倾向于促进还原穿梭作用,而较高浓度可能导致无效电子重定向,因此这种效应具有适应性,而非单调增加。蛋白质组学调查和心脏测量见糖尿病心脏乙酰化研究。其氧化应激背景见氧化应激和 ROS 控制。
视网膜研究进一步扩大了这种分离。在 AIF 缺陷的 Harlequin 小鼠中(一种复合体 I 装配缺陷),亚甲蓝保持了视网膜厚度、感光细胞外节以及杆细胞、锥细胞、Muller 细胞和神经节细胞标志物。在鱼藤酮处理的 661W 感光细胞中,15 微摩尔亚甲蓝使 NADH/NAD+ 比例正常化并降低活性氧,但在促进存活的浓度下 ATP 仍然降低。组织结构和细胞存活得到保持,而能量恢复并未发生,同时线粒体未折叠蛋白反应和线粒体自噬降低。该结果将亚甲蓝重新定义为缓解还原和氧化压力的分子,而不是能量恢复剂,详见视网膜感光细胞保护研究。
肌腱:化学变化发生但组织未恢复的实验
跟腱研究在同一篇论文中包含两种模式,值得仔细阅读。完整分支分析见2026 年跟腱病分析。患病肌腱表现为 NAD+ 减少、低 NAD+/NADH 比例、弱复合体 I 标志物、低 ATP 和紊乱胶原。亚甲蓝恢复了 NAD 化学状态和 ATP,并改善大鼠、人类外植体及细胞制备中的基质标志物。
随后进行了两种干预。在复合体 I 的鱼藤酮阻断下,染料仍保护 NAD+ 化学状态和 ATP 相关读数,但无法降低氧化负荷、恢复胶原平衡或保持活性。在 AIF 敲低情况下,由于复合体 I 机制不足而非药理性阻断,染料广泛恢复:NAD 平衡、氧化压力、膜电位和胶原标志物。结论很明确。即使复合体 I 被阻断,更好的 NAD 数值仍可能出现,但该模型中的组织恢复依赖于染料无法替代的有效复合体 I 通路。比例变化在该过程中是必要条件,但不是充分条件,详见肌腱氧化还原研究。
如何阅读下一项氧化还原声明
三个检查步骤可以处理大多数误读。第一,确认比例属于哪个区室,以及由哪组报告指标产生。胞质乳酸/丙酮酸结果不能直接说明线粒体基质状态。第二,确认论文报告的是比例变化、更大的总库,还是 ATP 恢复,并将每一项视为独立结果。第三,确认哪些问题仍未解决:未改善的脂肪、未纠正的复合体 I 缺陷或未恢复的 ATP 缺陷,都与真实的氧化还原改善同时出现在这些论文中。
这些内容不是剂量指南。五项研究均属于动物、细胞或组织制备研究,使用了受控损伤模型:液体乙醇饮食、链脲佐菌素糖尿病、遗传性复合体 I 缺陷、鱼藤酮、过氧化物和胶原酶。培养皿中的浓度不能简单转换为口服剂量,这些论文中没有人类受试者使用亚甲蓝来调节氧化还原平衡。氧化还原药理学和剂量的核心信息比任何方案都更有限也更有用:亚甲蓝氧化 NADH 并改变测量到的比例,长寿蛋白在部分组织中将这种变化转化为去乙酰化和代谢重编程,而组织是否随之改善取决于染料无法替代的细胞机制。