文章
测量亚甲蓝实验中的活性氧物种
两个实验室各自进行了一项被称为亚甲蓝抗氧化实验的研究。一个报告染料抑制活性氧物种,另一个报告染料生成活性氧物种。两者都展示了清晰的剂量反应曲线,两者也都如实报告。差异并非源于造假或能力不足,而是两个团队在不同光照条件下,使用回答不同问题的探针,测量了不同的对象,却用同一个词描述两个答案:ROS。
亚甲蓝难以精确测量,恰恰是因为它会参与本应由它来观察的化学过程。在黑暗中,它在电子供体和受体之间传递电子,然后恢复起始形态,准备再次循环。在光照下,它成为光敏剂,进入激发三重态;从这一状态,它可以向氧传递能量以生成单线态氧,也可以转移电子以生成自由基和过氧化氢。放入这个体系中的任何探针,都可能被染料本身氧化、还原、漂白,或在光学上被遮蔽。因此,对任何 ROS 读数,首先要问的从来都不是数值是多少,而是检测方法实际检测什么,以及染料如何影响检测。
Amplex Red:经校准的过氧化氢测定
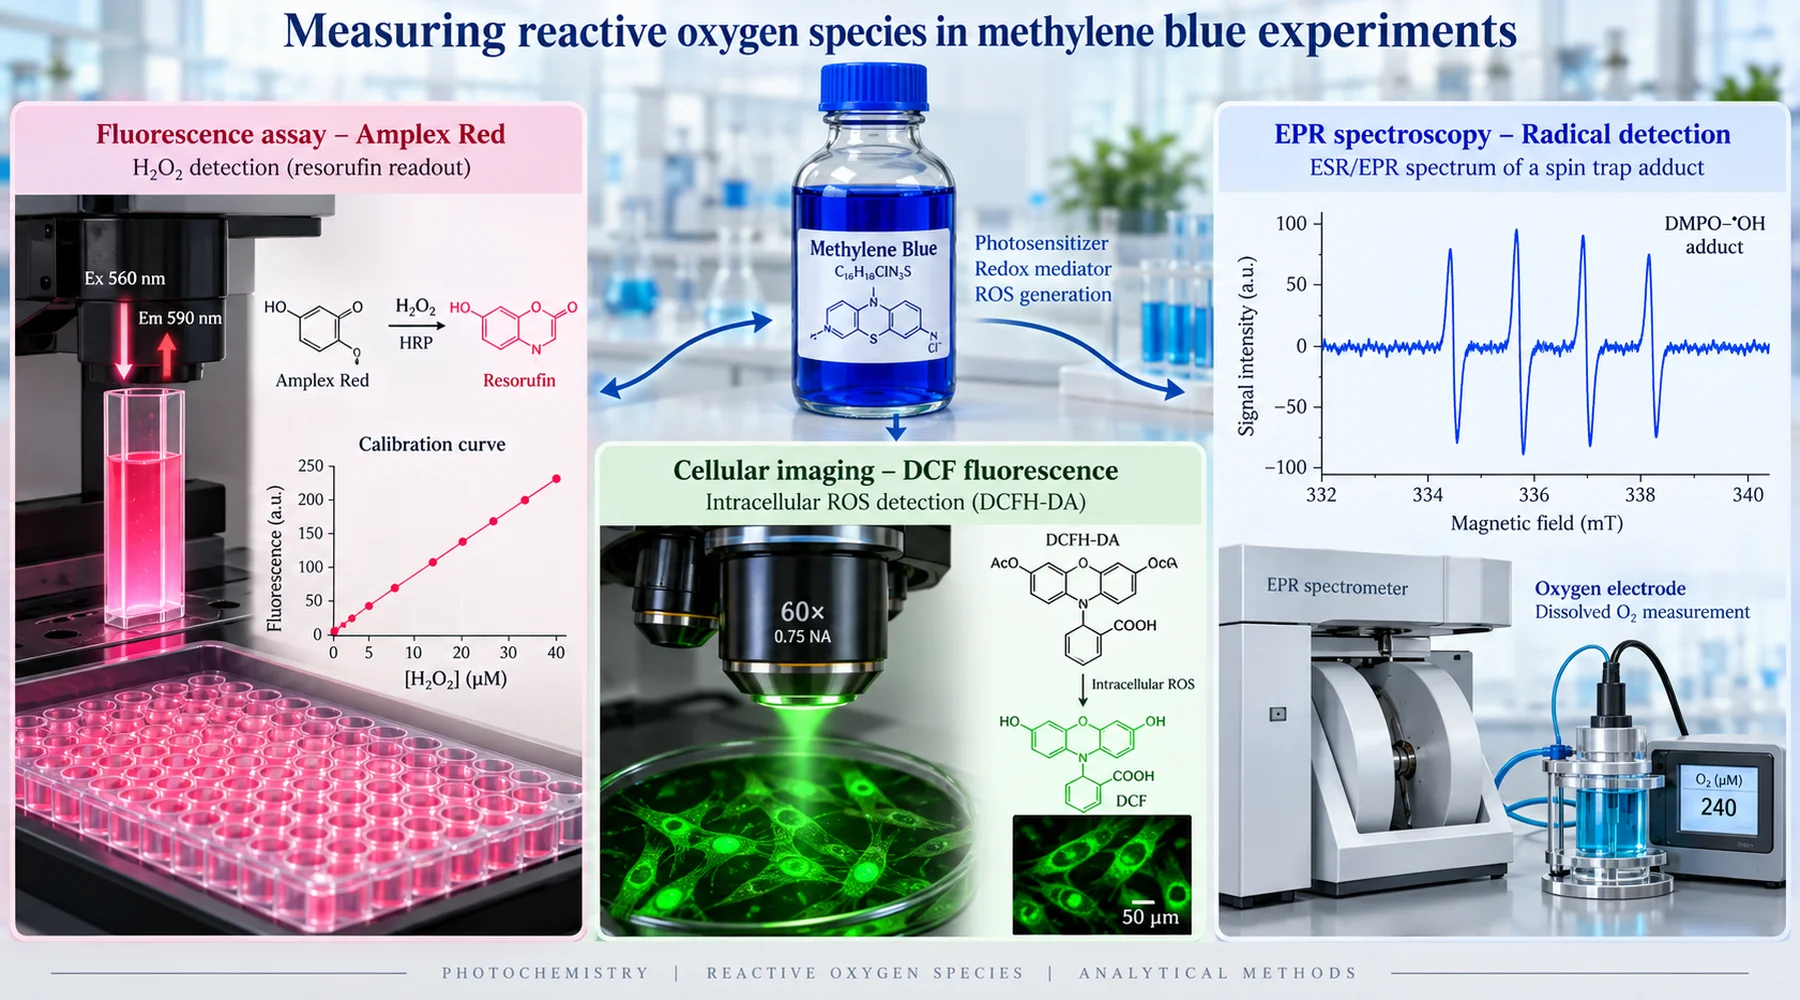
亚甲蓝与 Amplex Red的组合,在正确设置时,是这类文献中最有依据的搭配。其化学反应具有特异性:辣根过氧化物酶利用过氧化氢,将 Amplex 底物氧化为荧光产物试卤灵,化学计量关系约为一比一。样品中的过氧化氢转化为检测器中的荧光。通常所指的 ROS 家族中,没有其他成员能直接驱动这一反应。
关键优势是校准。严谨的实验人员会在相同缓冲液中,使用相同的过氧化物酶和底物浓度、相同的孵育时间及相同的光学设置,测定已知的过氧化氢标准品,再依据该曲线读取样品结果。在作为这一方法依据的离体脑线粒体研究中,作者正是这样做的:在每次实验结束时加入已知量的过氧化氢,并将数值报告为每毫克蛋白质每分钟的皮摩尔数,而不是任意荧光单位。这样才把发光现象变成了测量。
该研究有三个细节值得借鉴。首先,作者使用能分解过氧化氢的过氧化氢酶验证信号。加入过氧化氢酶后,亚甲蓝引起的荧光上升停止,证实信号来自过氧化氢,而非光学伪影。其次,他们通过用快门控制激发光束直接测试光照影响,使样品接受的光剂量仅为正常值的八分之一,而信号只下降了百分之九。他们报告的过氧化氢中,超过百分之九十的部分与测量光照无关。第三,他们用电极单独测量了过氧化氢的清除,发现染料既增加生成,又减慢清除。只报告净荧光的探针会把这两种效应混在一起。
这一测定仍有失效情形,而亚甲蓝会触发其中几种。染料在试卤灵发射荧光的同一红光区域内有广泛吸收,因此在高染料浓度下,样品可能通过内滤效应遮蔽自身信号。所以,标准品应含有与样品相同浓度的染料。Amplex Red 本身也能发生光氧化,其产物试卤灵还可进入产生超氧阴离子和过氧化氢的光氧化还原循环;当实验同时照射光敏剂时,这一点尤为重要。实际的解决办法是先照射亚甲蓝样品,再在黑暗中用 Amplex 试剂测定分取的样品,而不是同时照射染料和探针。最后,超氧化物歧化酶并不只是抑制 Amplex 信号:将超氧阴离子转化为过氧化氢,可能使信号升高。使荧光增加的 SOD 对照并没有失败,而是指出超氧阴离子是上游物种。
DCFDA:非特异性氧化指示剂
亚甲蓝与 DCFDA的搭配是大部分混淆的来源。DCFH-DA 是用于进入细胞的前体。细胞内的酯酶去除其乙酸酯基团,留下无荧光的 DCFH,随后 DCFH 氧化生成有荧光的 DCF。能将其氧化的物质有很多:羟基自由基、过氧化物酶和血红素中间体、二氧化氮、次氯酸,以及过氧亚硝酸盐衍生的自由基。过氧化氢本身并不能以任何足以用于检测的速率直接将其氧化;依赖过氧化氢的荧光通常需要铁、血红素蛋白或过氧化物酶化学反应参与。
每个方法部分都应引用的批判性分析,来自 Kalyanaraman 及其同事对 DCFH 作为探针的评估,因这一原因弃用 DCFDA 的脑线粒体研究对此作了概述。这一分析指出,该染料反应缓慢、化学计量关系未经表征、缺乏有效校准,而且还与非 ROS 化合物反应。探针也会放大它所测量的现象:DCFH 的单电子氧化产生 DCF 自由基,后者与氧反应生成超氧阴离子,再经歧化产生额外的过氧化氢。读数所报告的化学反应,有一部分是由检测本身制造出来的。
这些问题并不意味着 DCFDA 毫无用处,而是意味着它适合筛查,不能用于鉴定。DCF 荧光升高表示依赖氧化剂的探针氧化增加,并不意味着过氧化氢增加,更不意味着总 ROS 增加,因为没有任何单一探针能够测量总 ROS。早期依赖 DCF 氧化的亚甲蓝研究报告,在超过一微摩尔浓度时存在促氧化作用;而同一时期的其他体系则报告,它能保护细胞免于过氧化氢诱导的死亡。同一种染料在不同氧化还原背景下,可以同时符合这两种观察,单凭 DCF 结果无法判断是哪种氧化剂产生了信号。早期脑线粒体研究的重要之处,在于它用经校准的过氧化氢测量取代了这种筛查,并直接发现了过氧化氢负荷:即使染料浓度为一百纳摩尔,在所测试的每种底物和呼吸状态下,过氧化氢释放都增加了数倍。
DCFDA 还有一个亚甲蓝特有的陷阱。染料颜色浓重且具有氧化还原活性,因此它可能使荧光漂白、猝灭发射光,或独立于细胞 ROS 而氧化探针体系。只含染料和探针、不含细胞的无细胞对照,不是可有可无的点缀。这个实验能告诉你,染料是否与探针发生相互作用。
自旋捕获与氧摄取:身份与通量
荧光探针报告的是出现了某种能够使探针氧化的物质,而结合自旋捕获剂的电子自旋共振,则能更接近地说明该物质究竟是什么。经典亚甲蓝光化学研究使用 ESR 检测由染料、抗坏血酸和光共同产生的抗坏血酸自由基,随后通过氧摄取实验显示过氧化氢形成,并通过自旋捕获实验显示铁催化的羟基自由基形成。每项技术都回答了其他技术无法回答的问题:ESR 给出自由基身份,氧摄取给出不依赖任何荧光探针的反应通量,而两者结合则显示,在同一受光照体系中,单线态氧途径和自由基途径同时运行。
1984 年的这一结果,今天读来仍像一则警示。有光照和还原剂时,染料生成过氧化氢;有铁时,体系产生羟基自由基,即这一组物种中反应性最强的一种。作者将其与眼内抗坏血酸联系起来,并质疑随意将其用于眼科的做法。现代读者应注意这些条件:光、还原剂和铁同时存在。去掉任何一个条件,该途径都会减弱或消失。
氧电极的价值体现在另一个方面。Clark 型电极测量净耗氧量,能够确认染料驱动的氧化还原反应正在消耗分子氧,并提供荧光伪影无法伪造的动力学信息。它不能确定产物身份。过氧化氢、超氧阴离子和水的生成,以及单线态氧衰减,都会消耗氧。没有身份信息的通量,与没有通量信息的身份同样不完整,因此,证据扎实的论文会将电极与经校准的过氧化氢测定或捕获剂配合使用。
为什么抗氧化结果相互矛盾
将这三类读数并列比较,亚甲蓝文献中看似矛盾的结果,就可以归结为方法差异和三个生物学事实。
首先,染料既是电子穿梭体,也是过氧化氢来源。通过将电子从原本会使氧转化为超氧阴离子的呼吸位点分流,它可以降低一种 ROS;与此同时,它的还原形式直接将氧还原为过氧化氢,使另一种 ROS 增加。因此,研究线粒体氧化还原化学及其旁路作用的实验室,应当预期答案会依赖探针:在同一比色皿中,对超氧阴离子敏感的读数下降,而过氧化氢读数上升。
其次,低剂量的过氧化氢是一种信号,并不只意味着损伤。接续早期工作的鼠脑线粒体研究发现,低至五十纳摩尔的染料即可生成过氧化氢,而在治疗水平下不会造成线粒体 DNA 损伤,且预处理后能防护鱼藤酮诱导的损伤。只有在远高于治疗范围的一百微摩尔浓度下,染料才损伤某些选定的 DNA 片段;红光加二十微摩尔染料则产生单线态氧,损伤了所有受检片段。提出的机制是低剂量刺激效应:轻度过氧化氢生成触发与 Nrf2 相关的抗氧化防御和线粒体生物发生,因此短期促氧化读数先于较长期的抗氧化结果。在一小时读取的检测与在一天读取的检测可能不一致,因为两者之间生物学状态发生了变化。
第三,光照甚至会决定体系中存在的是哪种分子。光照使染料脱甲基,转化为 Azure B 及相关产物,而培养皿上方的显微镜灯就足以使其发生光敏化。黑暗实验与光照实验是不同的实验,任何实验方案中的光照和染料处理控制部分,都应据此对待它们。
最低限度的对照组合,以及如何解读任何声明
下方比较表是本文的原创参考资料。在接受任何亚甲蓝 ROS 结果之前,检查作者完成了哪些行,又跳过了哪些行。
| 对照 | 它排除的问题 | 如何执行 |
|---|---|---|
| 黑暗与明确规定的光照比较 | 将基态氧化还原效应与光化学混为一谈 | 相同染料、相同基质,一组置于黑暗中,另一组接受经测量的光剂量 |
| 探针加光照,不加染料 | 探针光化学 | 单独照射探针;任何信号都是伪影基线 |
| 染料加光照,不加细胞或底物 | 将细胞产生的 ROS 与染料自身产生的 ROS 混淆 | 使用无细胞基质,确定染料自身生成什么 |
| 过氧化氢酶 | Amplex 测定中的非过氧化氢信号 | 信号应下降;注意受光照的染料可能损伤过氧化氢酶本身 |
| SOD | 超氧阴离子的参与 | Amplex 信号上升提示上游有超氧阴离子参与,并非测定失败 |
| 去铁胺等铁螯合剂 | Fenton 型羟基自由基化学反应 | 检验具有氧化还原活性的铁是否参与产生 DCFH 或捕获剂信号 |
| 完整基质中的过氧化氢标准品 | 未经校准的荧光 | 在相同染料浓度和光学条件下加入已知量的过氧化氢 |
由此可得一条实用的阅读规则。配合过氧化物酶、经过校准且有过氧化氢酶核查的 Amplex 测定,是关于过氧化氢的证据。DCFDA 是关于非特异性探针氧化的证据,仅此而已。带有清除剂对照的自旋捕获,是关于自由基身份的证据。氧摄取是关于通量的证据。一句话若宣称的内容超出其检测方法所能支持的范围,无论写得多么自信,它说的都是探针,而不是染料。有关剂量依赖性与低剂量刺激范围、线粒体电子流、染色样品中的检测干扰以及显微镜光照伪影的相关讨论,进一步展开了这些要点;各项要点在其占位参考被替换后仍然成立。