
文章
亚甲蓝与炎症信号通路:炎症小体、IL-6 和 STAT3
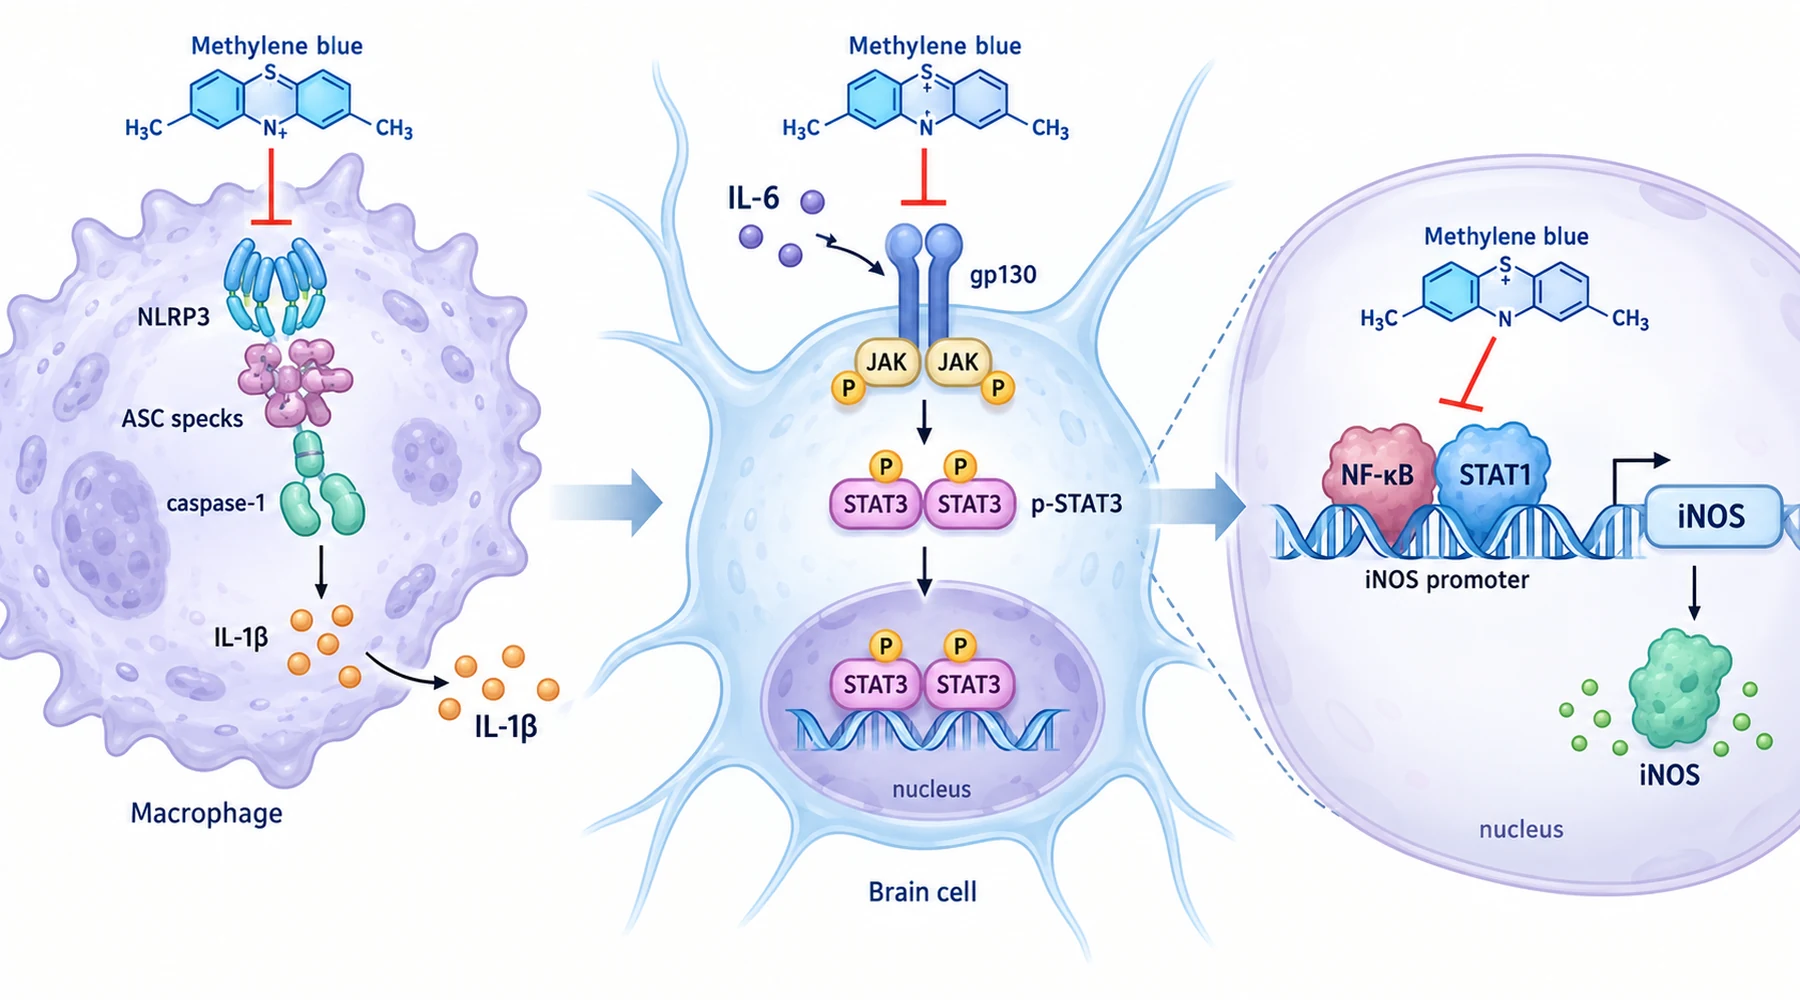
假设三个实验室报告同一种蓝色化合物具有抗炎作用。一个实验室显示巨噬细胞中的 IL-1beta 减少。一个显示同一细胞类型中的 iNOS 酶减少。一个显示血液中的 IL-6 减少以及脑内 STAT3 活性降低。将这三者合并成一个结论很容易,但这种合并会掩盖具体发现。
每个结果都属于不同的信号传导概念,各自具有不同的触发因素、组装步骤和检测指标。亚甲蓝在不同节点分别作用于这些概念中的每一个。任何这些变化是否能改善健康结果,是另一个独立问题,相关内容见我们的亚甲蓝与炎症证据概述。本页面仅关注这些通路。
通路 1:炎症小体组装和 caspase-1
炎症小体是一种在髓系细胞内部按需构建的蛋白支架。其组成部分包括传感器、称为 ASC 的衔接蛋白,以及称为 caspase-1 的效应酶。组装完成后,caspase-1 会切割 pro-IL-1beta 和 pro-IL-18,使其转化为分泌形式,并可触发焦亡(pyroptosis),一种炎症性细胞死亡形式。传感器决定类型:NLRP3 响应晶体和成孔毒素(如 nigericin 和 ATP),NLRC4 响应细菌鞭毛蛋白,AIM2 响应细胞质双链 DNA,而非经典通路响应细胞内脂多糖。
激活需要两个信号。第一个信号是预激活(priming):Toll 样受体配体驱动依赖 NF-kB 的 NLRP3 和 pro-IL-1beta 转录,使相关组分得以存在。第二个信号是组装:第二种刺激使 ASC 寡聚形成斑点结构,使 caspase-1 被切割形成其 p20 片段,并释放成熟 IL-1beta p17。线粒体活性氧和晶体摄取是已知参与 NLRP3 第二信号的因素。
2017 年关于广泛炎症小体抑制的巨噬细胞研究在两个信号阶段测试了亚甲蓝。在脂多糖预激活的小鼠骨髓巨噬细胞中,nigericin、ATP 和尿酸单钠晶体均诱导 IL-1beta 和 caspase-1 释放以及 ASC 斑点形成,而 20 至 200 micromolar 浓度的亚甲蓝以剂量依赖方式降低了这三种变化,且未导致细胞死亡。针对 NLRC4 的鞭毛蛋白和 Salmonella、针对 AIM2 的双链 DNA 和 Listeria,以及针对非经典通路的转染脂多糖或活 E. coli,均显示相同模式。化合物本身未诱导释放,且对照培养皿未显示抗菌作用,因此该结果属于宿主反应范畴。
在上游阶段,研究测量了三个干预点。鱼藤酮诱导的线粒体超氧化物因亚甲蓝而降低,鱼藤酮驱动的 IL-1beta 释放也随之降低。荧光微珠摄取减少,与晶体感知之前吞噬作用降低一致。由含两个 NF-kB 位点的 NLRP3 启动子驱动的报告系统显示,亚甲蓝降低了活性,而不含这些位点的截短启动子则没有响应。在无细胞试管系统中,亚甲蓝也直接降低了重组人 caspase-1 活性。仅在预激活阶段或仅在激活阶段加入该化合物,仍可降低 IL-1beta、IL-18 和 caspase-1 释放,因此两个步骤均受到影响。
小鼠实验显示了相同的选择性。一剂致死量脂多糖可在数小时内杀死对照组,而亚甲蓝改善了存活情况;腹腔 IL-1beta 降低,但同一液体中的 IL-6 没有变化。在 Listeria 腹膜炎模型中,腹腔 IL-1beta 降低,而总细胞数量未改变。人 THP-1 单核细胞在四种炎症小体类型中均表现出类似小鼠巨噬细胞的结果。炎症小体结果解释的是 IL-1beta 和 IL-18 成熟过程,而不是所有细胞因子,这也是为什么小胶质细胞和星形胶质细胞实验回答的问题,与支架组装是不同问题。
通路 2:通过 NF-kB 和 STAT1 结合进行的 iNOS 转录
诱导型一氧化氮合酶(iNOS)在静息状态下几乎不存在,需要时才进行转录。脂多糖主要通过 IkB-alpha 降解,随后 NF-kB 磷酸化并进入细胞核来驱动这一过程。干扰素-gamma 主要通过 Janus 激酶磷酸化 STAT1,随后 STAT1 进入细胞核来驱动这一过程。每个因子随后结合 iNOS 启动子上的相应位点。酶活性和基因诱导是不同的控制节点,药物可以作用于其中一个或两个节点。
2015 年关于巨噬细胞和内毒素血症小鼠中 iNOS 诱导的研究将作用定位于信号表达阶段。在 RAW 264.7 细胞和原代小鼠巨噬细胞中,脂多糖、干扰素-gamma 或两者联合处理前 30 分钟给予 1 micromolar 亚甲蓝,在 8 至 24 小时内降低了 iNOS 蛋白和 mRNA,同时培养基中的亚硝酸盐降低,且没有细胞活力损失。在给予 25 mg per kg 脂多糖的小鼠中,提前 1 小时给予单次 5 mg per kg 剂量降低了肺、肝和心脏中的 iNOS 蛋白和 mRNA。
关键细节在于没有发生变化的部分。IkB-alpha 降解、NF-kB 磷酸化、STAT1 磷酸化,以及任一因子的核内积累均保持不变。变化发生在之后一步:核提取物显示,脂多糖处理后 NF-kB 与其 DNA 元件的结合减少,干扰素-gamma 处理后 STAT1 与其 DNA 元件的结合减少,染色质免疫沉淀也证实细胞内两个因子在 iNOS 启动子上的占据减少。这些因子的激活和进入细胞核均正常,但与目标 DNA 的结合能力降低。
注意与通路 1 的区别。这里涉及的是因子与 DNA 的结合,使用的是 STAT1 而非 STAT3,检测指标是 mRNA、蛋白质和亚硝酸盐,而不是 ASC 斑点和 caspase-1 片段。我们的亚甲蓝在不同细胞模型中的作用靶点图将这一转录水平与直接酶作用和线粒体测量区分开来。
通路 3:血清 IL-6 和组织 STAT3 激活
IL-6 通过 gp130 受体家族进入 Janus 激酶到 STAT3 的级联通路。磷酸化 STAT3 形成二聚体,进入细胞核并驱动炎症程序,而 IL-6 本身也是 NF-kB 的靶点,因此二者形成通常称为 IL-6 到 STAT3 轴的反馈回路。标准检测指标包括上游血清 IL-6、磷酸化 STAT3 与总 STAT3 的比值,以及下游效应酶如 iNOS 和 COX2。
2023 年关于脂多糖后 IL-6 和 STAT3 的小鼠研究在多个组织区室中测量了该轴。雄性 C57BL/6 小鼠连续三天每天接受 1 mg per kg 脂多糖处理,并在每次给药 30 分钟后接受 5 或 10 mg per kg 亚甲蓝。第三天时,与单独脂多糖组相比,两个亚甲蓝组的血清 IL-6 均降低,而检测面板中的大多数其他细胞因子未随治疗发生变化。皮层、海马和耳部皮肤中的磷酸化 STAT3 与总 STAT3 比值降低,同时 Iba-1 小胶质细胞染色降低,iNOS 和 COX2 降低,体重下降部分减弱。
这里需要注意两点。血清 IL-6 降低加组织 STAT3 磷酸化降低符合调节该轴的表现,但无法确定主要作用节点,因为减少上游细胞因子、减少受体信号传导或改变磷酸酶活性均可能产生相同比值。而急性挑战三天内的体重变化是整体动物指标,并非症状或缓解评分。它在蛋白质印迹之外提供额外背景,但不能将信号结果转化为治疗结论。线粒体氧化还原处理的独立化学机制与该细胞因子过程并行运行,不应与其合并。
通路比较:干预节点和检测指标

| 通路 | 这些论文中的触发因素 | 亚甲蓝作用位置 | 发生变化的检测指标 |
|---|---|---|---|
| 炎症小体组装 | Nigericin、ATP、尿酸晶体、鞭毛蛋白、DNA、细胞质脂多糖 | 降低预激活转录、降低线粒体 ROS、降低吞噬作用、降低 ASC 组装、直接抑制 caspase-1 | 降低 caspase-1 p20、降低成熟 IL-1beta 和 IL-18、减少 ASC 斑点 |
| iNOS 转录 | 通过 NF-kB 的脂多糖;通过 STAT1 的干扰素-gamma | 在激活和进入细胞核正常的情况下,降低 NF-kB 和 STAT1 与启动子 DNA 的结合 | 降低 iNOS mRNA 和蛋白质、降低亚硝酸盐 |
| IL-6 到 STAT3 轴 | 小鼠连续三天脂多糖处理 | 降低血清 IL-6 以及组织 STAT3 磷酸化 | 降低皮层、海马、皮肤中的 pSTAT3 与 STAT3 比值;降低 iNOS、COX2、Iba-1 |
该表阻止三种无效推论。ASC 斑点结果不能证明 STAT3 结果。STAT1 到 iNOS 启动子的结果不能证明 STAT3 结果,即使两种蛋白都属于 STAT 家族成员。血清 IL-6 结果不能证明炎症小体组装降低:在腹腔实验中,IL-1beta 降低而 IL-6 没有降低。每一行都需要自己的触发因素和检测指标,因此在阅读细胞、动物和临床亚甲蓝研究时,需要将每个结论与其实际测量层级对应。
这些结果并不能证明人体中的剂量、安全性或获益。脂多糖模型是用于测试机制的受控刺激,并非慢性疾病的复制模型;在刺激同时给药测试的是对诱导变化的预防,而不是对既有疾病的逆转。应将这一机制说明与患者结局分开,并根据对应的人体研究评估任何健康相关结论。