
Стаття
Метиленовий синій і NAD+/NADH: як тлумачити клітинний редокс-баланс
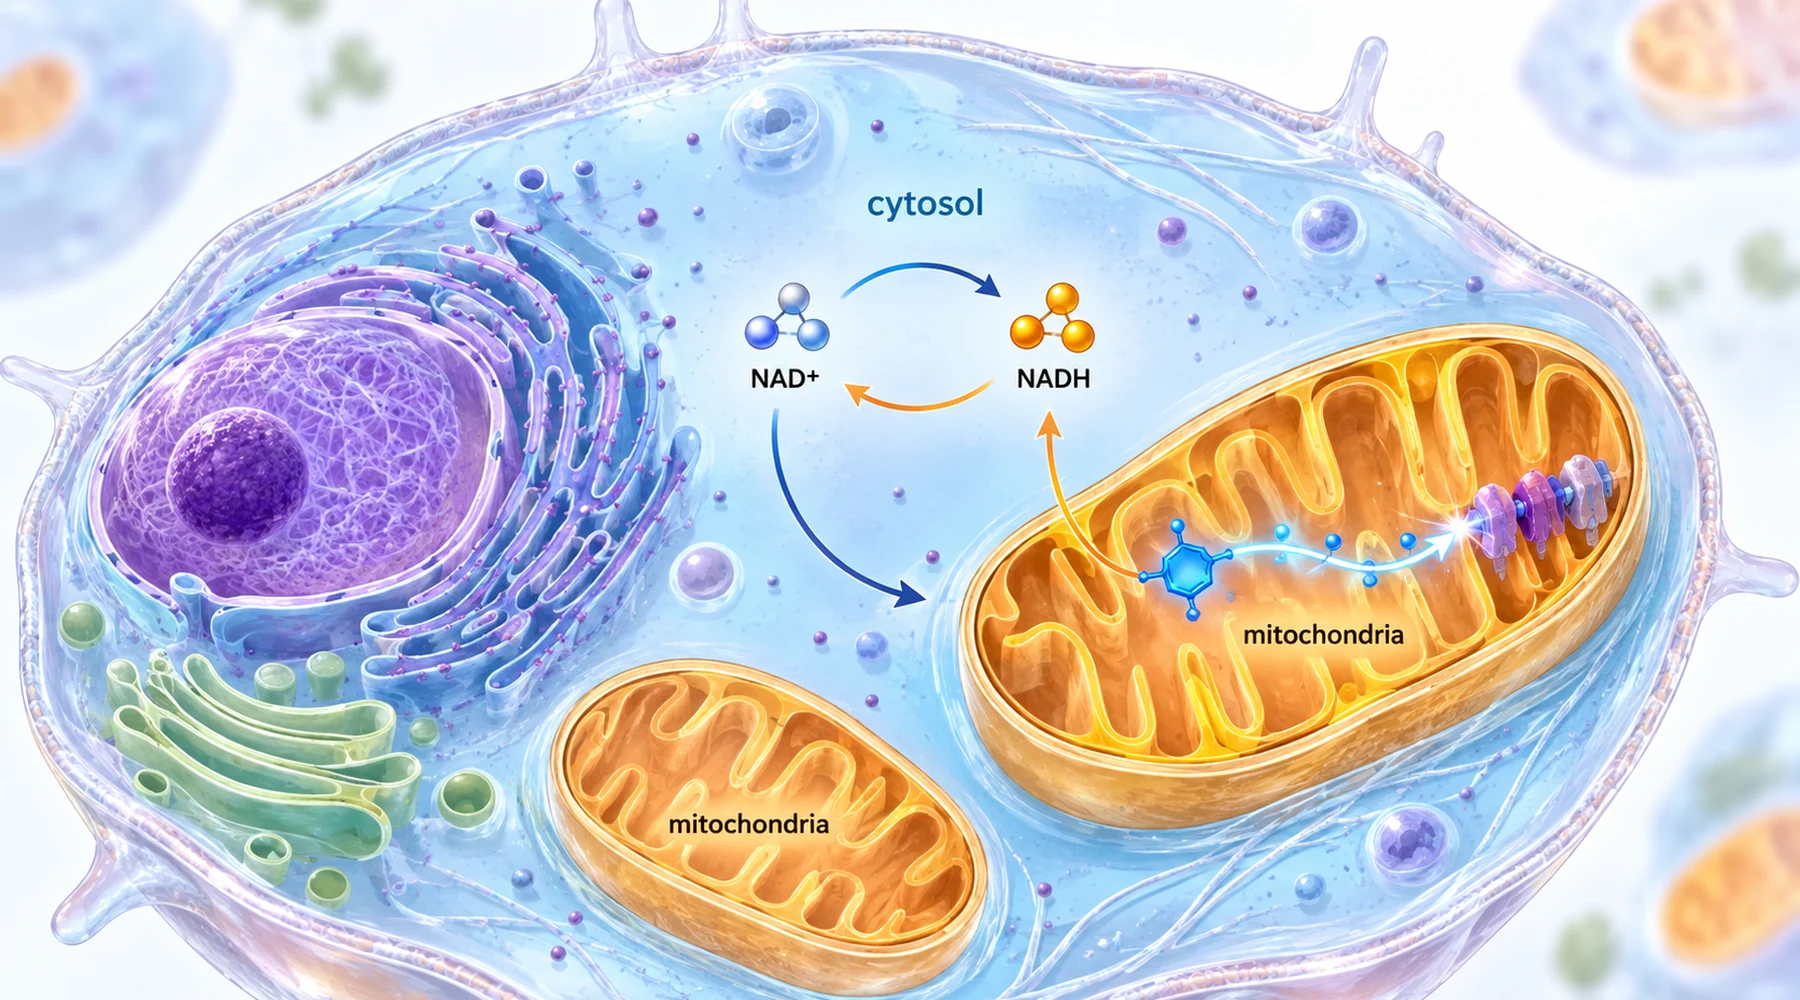
У повідомленнях про метиленовий синій і NAD+ часто зливають в одне три різні твердження. Перше — співвідношення NAD+ до NADH змістилося в бік окисненого стану. Друге — клітина містить більше загального NAD. Третє — вироблення енергії відновилося. Усе це звучить як єдина історія про відновлення метаболізму. Проте в експериментах ці результати регулярно розходяться, і найцікавіші результати — саме ті випадки, коли вони не збігаються.
Ця плутанина зрозуміла, адже для всіх трьох величин використовують спільну термінологію. NAD+ приймає електрони в метаболічних реакціях і перетворюється на NADH, а потім мітохондрії окиснюють NADH назад до NAD+ у комплексі I та використовують вивільнену енергію для синтезу ATP. Докладніше цей шлях електронів описано в поясненні мітохондріального транспорту електронів, а його енергетичний бік — у статті про ATP та енергетичний метаболізм. Але співвідношення й пул — різні речі. Співвідношення показує, як наявний парк молекул-переносників розподілений між навантаженим і ненавантаженим станами. Пул показує, скільки таких молекул узагалі існує. Краще співвідношення за незмінного пулу означає перерозподіл, а не створення нових молекул.
Два компартменти, два індикатори
Є ще одна відмінність, через яку легко непомітно схибити в тлумаченні. Цитозольний і мітохондріальний пули NAD значною мірою розділені внутрішньою мембраною мітохондрій, тому кожен компартмент може незалежно підтримувати відносно окиснений або відновлений стан. Єдине значення для всієї клітини приховує цю різницю.

Дослідження печінки дали змогу виміряти цю різницю між компартментами. Рівновага між лактатом і піруватом відображає цитозольне співвідношення NAD+ до NADH, оскільки лактатдегідрогеназа пов'язує ці дві пари. Рівновага між 3-гідроксибутиратом і ацетоацетатом відображає мітохондріальне співвідношення завдяки подібному зв'язку. Коли обидві пари вимірюють у тканині, миттєво замороженій затисканням, як у дослідженні хронічного годування щурів етанолом, отримують два показники редокс-стану однієї печінки, і сполука може змінювати один із них сильніше, ніж інший.
Метиленовий синій діє в цій системі як переносник електронів, а не як паливо. Він приймає електрони від NADH поблизу комплексу I, переходячи у відновлений стан, а потім передає їх далі по ланцюгу таким переносникам, як цитохром c. Сукупний результат — окиснення NADH без проходження повного звичайного маршруту. Цей механізм пояснює і його привабливість, і межі можливостей: він може послабити затор, спричинений надлишком відновних еквівалентів, але не відбудовує пошкоджений комплекс і не синтезує нові молекули NAD.
П'ять досліджень, одна закономірність розбіжних результатів
У таблиці нижче п'ять досліджень зіставлено за тканиною, редокс-показником, енергетичним показником і тим, що справді відновилося. Читайте останні два стовпці разом. Саме це зіставлення і є суттю статті.
| Тканина й ушкоджувальний вплив | Редокс-показник за застосування метиленового синього | Енергетичні та сигнальні показники | Функціональний результат |
|---|---|---|---|
| Печінка щурів, тривалий раціон з етанолом | Цитозольне та мітохондріальне співвідношення NAD+/NADH переважно відновилися; гліцерол-3-фосфат нормалізувався | ATP не змінювався під дією етанолу чи втручання; невелике зниження ATP за наявності барвника в пізній часовій точці | Жирова інфільтрація не змінилася; рівні ліпідів і триацилгліцеролів залишилися високими |
| Гепатоцити та печінка мишей на раціоні з високим вмістом жирів | Співвідношення NAD+/NADH і вміст NAD+ зросли в клітинах та печінці | Підвищення SIRT1, деацетилювання PGC-1alpha, збільшення кількості мітохондріальної ДНК і споживання кисню, SIRT1-залежна активація AMPK | Накопичення жиру в печінці та стеатогепатит зменшилися |
| Серце щурів із діабетом | Співвідношення NADH/NAD+ знизилося під час окиснення субстратів в ізольованих мітохондріях | Активність SIRT3 зросла; ацетилювання лізину знизилося в 83 ділянках 34 білків | Об'єми серця та фракція викиду поліпшилися; сам дефект комплексу I не був усунений |
| Сітківка мишей із дефіцитом AIF і фоторецепторні клітини, оброблені ротеноном | Співвідношення NADH/NAD+ у клітинах нормалізувалося; окиснювальний стрес знизився | Дефіцит ATP у клітинах не був усунений; активність шляхів мітохондріальної стресової відповіді знизилася | Товщина сітківки та маркери фоторецепторів збереглися; виживання клітин поліпшилося |
| Ахіллове сухожилля людини та щурів, ушкодження окисником і колагеназою | Баланс NAD+ та показники загального NAD наблизилися до контрольних значень | ATP зріс, а ROS знизилися там, де спостерігалося відновлення | Маркери матриксу поліпшилися, окрім умов прямої блокади комплексу I, за яких біохімічні показники змінилися, але тканина не відновилася |
Де корекція редокс-стану не відновила тканину
Найдавніше дослідження в цій добірці залишається найвиразнішим застереженням. У щурів, які отримували 36 відсотків енергії з етанолу, знижувалися цитозольне та мітохондріальне співвідношення NAD+/NADH, виміряні за обома парами індикаторів, а метиленовий синій у раціоні в кількості приблизно 42 mg на kg на добу значною мірою запобігав цим змінам. Проте вміст триацилгліцеролів у печінці до пізньої часової точки зростав приблизно втричі незалежно від наявності барвника, а гістологія показувала однакове центролобулярне накопичення жиру. Автори прямо сформулювали незручний висновок: редокс-зсув, що супроводжує окиснення етанолу, сам по собі не є причиною жирової печінки. Читач, який сприймає скориговане співвідношення як відновлений орган, хибно передасть результати цієї роботи. Повний дизайн, зокрема контрольні групи з узгодженим споживанням корму та відбір зразків опівночі на піку інтоксикації, викладено в дослідженні впливу етанолу на печінку.
Порівняйте це з дослідженням печінки за раціону з високим вмістом жирів, де подібна зміна співвідношення збіглася з реальним поліпшенням стану тканини. У гепатоцитах і в печінці мишей після перорального введення метиленовий синій підвищував співвідношення NAD+/NADH, а сигнальний ланцюг простежили крок за кроком: підвищення SIRT1, деацетилювання PGC-1alpha, зростання маркерів мітохондріального біогенезу та споживання кисню, а потім залучення AMPK, CPT-1 і PPARalpha, причому було показано залежність активації AMPK від SIRT1. У мишей на раціоні з високим вмістом жирів у печінці накопичувалося менше жиру. Запропоноване пояснення полягає в тому, що редокс-зсув тут активував вісь регуляції генів, а не просто відновив біохімічний баланс, як докладно описано в дослідженні SIRT1 та AMPK у печінці. Та сама група вимірювань, що й у дослідженні етанолу, але протилежний результат для тканини. Різниця — у подальшому сигнальному шляху, а не лише в співвідношенні.
Серце й сітківка: сиртуїни, ацетилювання та збереження без відновлення ATP
Дослідження серця за діабету пов'язує редокс-зсув з ацетилюванням білків через інший сиртуїн. У мітохондріях за діабету метаболічні ферменти мають надмірне ацетилювання лізину, що пов'язане з негнучкістю у використанні субстратів. Метиленовий синій у кількості 10 mg на kg на добу сприяв окисненню NADH, яке в ізольованих мітохондріях залежало від дози в діапазоні від 6 до 18 мікромолярних концентрацій, підвищував активність SIRT3 та знижував ацетилювання багатьох білків. Водночас об'єми серця та фракція викиду поліпшувалися, хоча вихідне порушення комплексу I зберігалося. У статті прямо описано залежність ефекту від дози, відому з інших публікацій: низькі концентрації сприяють роботі як переносника відновних еквівалентів, тоді як вищі можуть непродуктивно перенаправляти електрони, тож ефект є горметичним, а не монотонним. Протеомний аналіз і вимірювання серцевих показників наведено в дослідженні ацетилювання в серці за діабету. Підґрунтя цього пояснення з погляду окиснювального стресу розглянуто в матеріалі про окиснювальний стрес і контроль ROS.
Дослідження сітківки найвиразніше демонструє це розмежування. У мишей Harlequin із дефіцитом AIF та дефектом складання комплексу I метиленовий синій зберігав товщину сітківки, зовнішні сегменти фоторецепторів і маркери паличок, колбочок, клітин Мюллера та гангліозних клітин. У фоторецепторних клітинах 661W, оброблених ротеноном, барвник нормалізував співвідношення NADH до NAD+ і знижував рівень активних форм кисню за концентрації 15 мікромолярних, проте ATP залишався зниженим за концентрацій, які сприяли виживанню. Структура та виживання зберігалися без відновлення енергетичних показників, водночас зі зниженням активності мітохондріальної відповіді на незгорнуті білки та мітофагії. Цей результат змінює погляд на барвник: він постає як засіб послаблення відновного й окиснювального стресу, а не відновлення енергії, що задокументовано в дослідженні захисту фоторецепторів сітківки.
Сухожилля: експеримент, у якому біохімічні показники змінилися, а тканина — ні
Робота про ахіллове сухожилля містить обидві закономірності в межах однієї статті й заслуговує на уважне читання. Повний розбір кожної гілки експерименту наведено в аналізі дослідження ахіллової тендинопатії 2026 року. В ураженому сухожиллі спостерігали виснаження NAD+, низьке співвідношення NAD+ до NADH, знижені маркери комплексу I, низький ATP і порушену організацію колагену. Метиленовий синій відновлював біохімічні показники NAD та ATP і поліпшував маркери матриксу в моделях на щурах, експлантатах людської тканини та клітинних препаратах.
Потім застосували два втручання. За блокади комплексу I ротеноном барвник усе ще підтримував біохімічні показники NAD+ та показники, пов'язані з ATP, але не зменшував окиснювального навантаження, не відновлював баланс колагену й не зберігав життєздатності. За зниження експресії AIF, коли апарат комплексу I був недостатньо сформований, а не фармакологічно заблокований, барвник забезпечував відновлення за широким набором показників: баланс NAD, окиснювальний стрес, мембранний потенціал і маркери колагену. Висновок чіткий. Поліпшення показника NAD можливе навіть за блокади комплексу I, але відновлення тканини в цій моделі залежало від працездатного шляху комплексу I. У цьому випадку зміна співвідношення є необхідною, але недостатньою умовою — цю думку докладніше розвинуто в дослідженні редокс-стану сухожилля.
Як читати наступне твердження про редокс-стан
Три перевірки допомагають уникнути більшості хибних тлумачень. По-перше, з'ясуйте, якого компартмента стосується співвідношення та за якою парою індикаторів його визначили. Цитозольний результат для лактату й пірувату нічого безпосередньо не говорить про мітохондріальний матрикс. По-друге, з'ясуйте, чи повідомляє стаття про зміну співвідношення, збільшення загального пулу або відновлення ATP, і розглядайте кожен результат окремо. По-третє, запитайте, що залишилося порушеним: незмінне накопичення жиру, неусунутий дефект комплексу I або незмінний дефіцит ATP у цих роботах співіснують зі справжнім поліпшенням редокс-стану.
Ніщо з цього не є настановою щодо дозування. Усі п'ять досліджень виконано на тваринах, клітинах або тканинних препаратах із контрольованими ушкоджувальними впливами: рідкими раціонами з етанолом, стрептозотоциновим діабетом, генетичними дефектами комплексу I, ротеноном, пероксидом, колагеназою. Концентрації в культуральному посуді не можна просто перерахувати в пероральні дози, і жодна людина в цих дослідженнях не приймала метиленовий синій для редокс-балансу. Наскрізний висновок для редокс-фармакології та дозування вужчий і корисніший за будь-який протокол: метиленовий синій окиснює NADH і змінює вимірюване співвідношення, сиртуїни в деяких тканинах перетворюють цей зсув на деацетилювання та метаболічне перепрограмування, а те, чи відреагує тканина, залежить від молекулярного апарату, який барвник не може замінити.