
Artikel
Metylenblått som antioxidant och prooxidant: vad avgör utfallet?
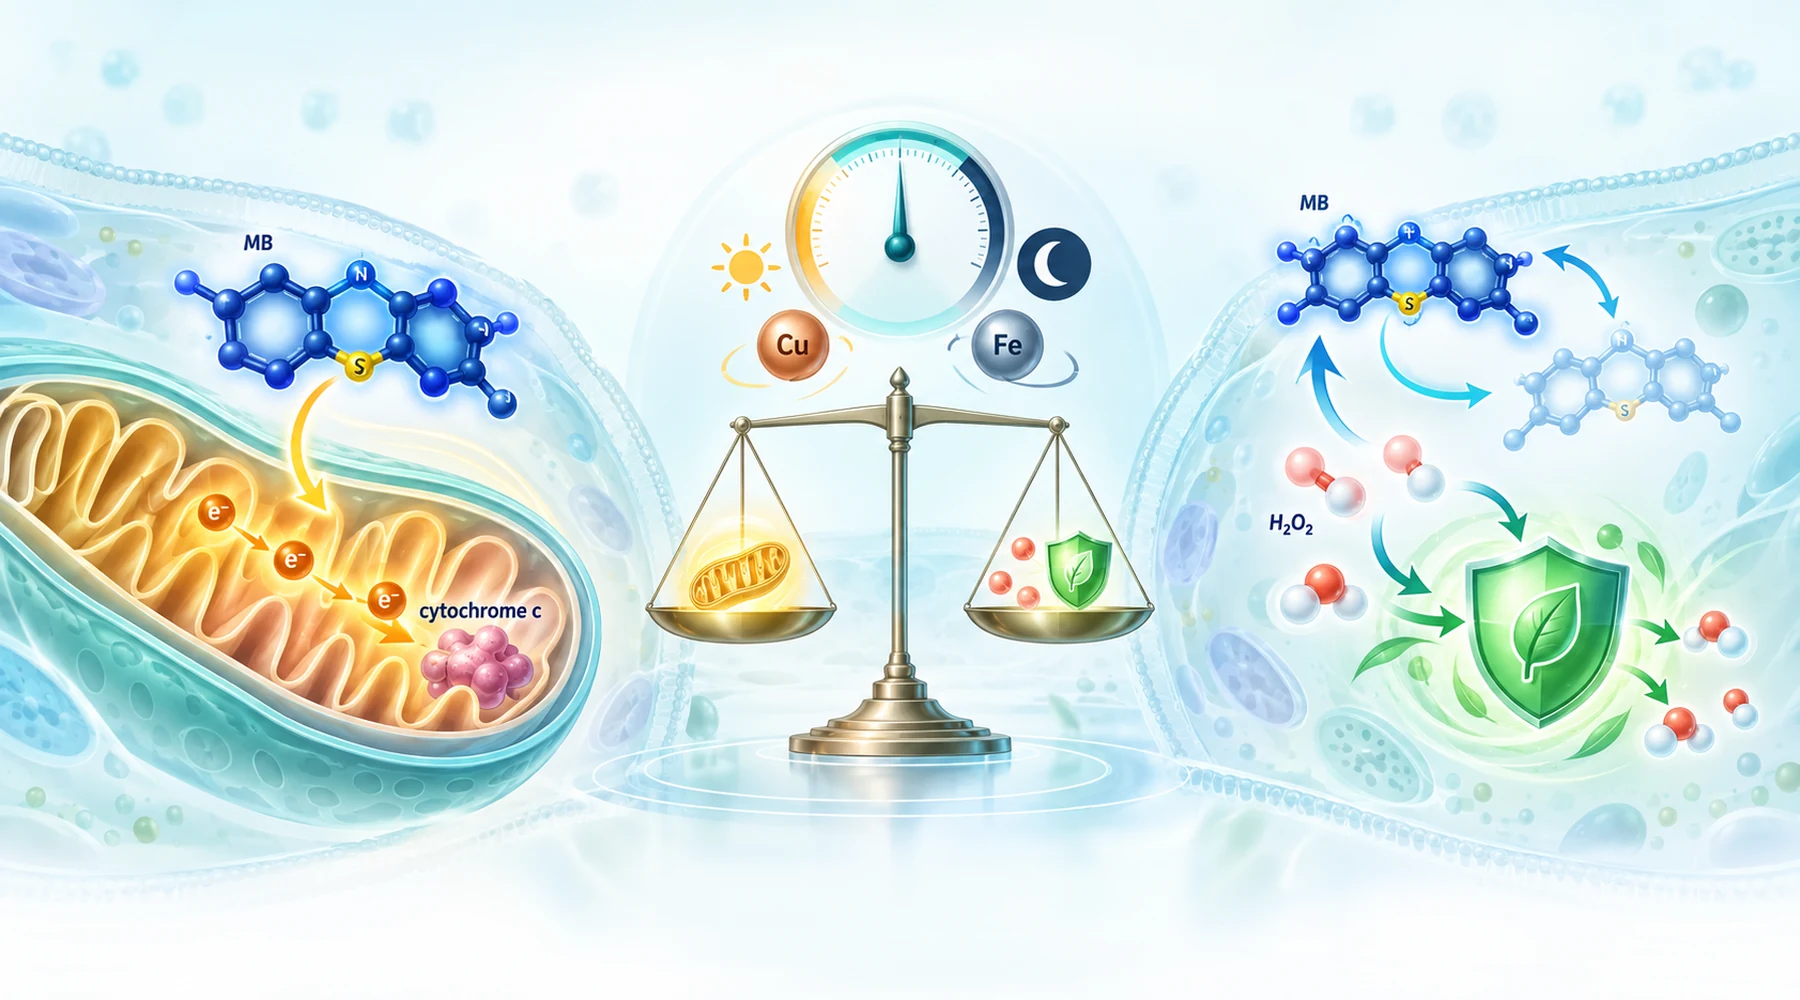
Anta att två laboratorier testar samma blå färgämne och rapporterar motsatta resultat. I det första får isolerade hjärnmitokondrier bättre respiration och producerar mer ATP. I det andra frisätter samma preparat betydligt mer väteperoxid. Båda rapporterna stämmer. De beskriver samma cykel sedd från två håll, och förvirringen uppstår när läsare betraktar den ena sidan som hela bilden.
Misstaget är att fråga vilken etikett som passar molekylen. Metylenblått fungerar som en förmedlare av elektroner, vilket kartläggningen av dess cellbiologiska mål visar i ett bredare sammanhang. Oxiderat färgämne tar emot elektroner och blir färglöst leukoMB. LeukoMB lämnar elektronerna vidare och blir blått igen. Vad man observerar beror på vem som donerar elektronerna, vem som tar emot dem och om systemet kan bryta ned den väteperoxid som bildas längs vägen. Den relevanta frågan är aldrig om färgämnet är en antioxidant. Den är vad förhållandena låter elektronförmedlingen åstadkomma.
Cykeln bakom de båda sidorna
I mörker är den grundläggande cykeln kort. NADH, NADPH eller bärare i andningskedjan reducerar färgämnet. Det reducerade färgämnet har sedan konkurrerande vägar vidare. Det kan överföra elektroner till cytokrom c och stödja ett flöde förbi ett skadat komplex, vilket förklarar varför respiration och membranpotential delvis återställs när komplex I eller III blockeras. Eller så kan det överföra elektroner direkt till syre, vilket återbildar den blå formen och producerar väteperoxid. Eftersom färgämnet återbildas kan en liten mängd upprepa denna cykel många gånger och kontinuerligt förbruka reduktionsekvivalenter och bilda peroxid.
Ytterligare två förgreningar förändrar kemin helt. Fritt koppar eller järn omvandlar denna diffunderbara peroxid till betydligt mer destruktiva lokala oxidanter genom reaktioner av Fenton-typ. Rött ljus öppnar en separat fotokemisk väg där exciterat färgämne överför energi till syre och bildar singlettsyre, en kemisk form som behandlas ingående i genomgången av fotokemi av typ I och typ II. Redoxcykling i mörker, metallförstärkt skada och fotodynamisk skada är tre olika mekanismer som råkar utgå från samma molekyl.
Matris över förhållanden och utfall
Tabellen nedan är värd att spara. Varje rad visar en variabel, vilken riktning den driver utfallet i och experimentet bakom. Positivt innebär ett skyddande eller förbättrat mätresultat. Negativt innebär mer oxidanter, större utarmning eller mer skada.
| Förhållande | Utfallets riktning | Vad experimentet visade |
|---|---|---|
| Låg koncentration, 0.1 till 1 uM, isolerade mitokondrier | Positiv bioenergetik samt mer peroxid | 0.1 uM förbättrade syreförbrukningen i hjärtmitokondrier från friska och diabetiska råttor; 100 nM till 1 uM återställde delvis ATP, membranpotential och kalciumupptag i blockerade hjärnmitokondrier, samtidigt som peroxidfrisättningen ökade under alla förhållanden |
| Högre koncentration, över 5 uM, celler utan glukostillgång | Negativ oxidantsignal | Endotelceller oxiderade en generell ROS-prob och förlorade reducerat glutation över 5 uM när glukos saknades; tillsats av glukos förhindrade båda |
| Substrat för komplex I (glutamat plus malat) | Mer peroxid | Studier av både hjärn- och hjärtmitokondrier fann ökad peroxidfrisättning med NADH-kopplade substrat |
| Succinat plus rotenon, hjärtmitokondrier, 0.1 uM | Mindre peroxid i det protokollet | Det enda tydligt antioxidativa peroxidmätresultatet i materialet; notera att protokollet omfattade rotenon och en annan vävnad, så substratet ensamt förklarar det inte |
| Rött ljus, 20 uM plus 630 nm | Negativ DNA-skada | Inga signifikanta skador på mitokondriellt DNA i mörker vid 20 uM; samma koncentration med rött ljus skadade varje testat fragment |
| Mycket hög koncentration i mörker, 100 uM | Negativ selektiv DNA-skada | Selektiva skador på mitokondriellt DNA vid purinrika sekvenser, ett språng jämfört med peroxidsignalen vid nanomolära koncentrationer |
| Koppar eller järn plus NADH, cellfritt DNA | Negativa oxidativa skador | Koppar riktade skadan mot en hotspot-sekvens i p53; järn-EDTA orsakade omfattande skador; katalas och metallkelatorer blockerade respektive reaktionsväg; oxiderat guanin ökade |
| Glukos närvarande, intakta celler | Skyddande buffring trots snabbare cykling | Glukos ökade reduktionen av färgämnet men minskade ändå nettostressen, förenligt med att pentosfosfatvägen tillför NADPH för återvinning av antioxidanter |
| Celler med förhöjt askorbatinnehåll | Blandat: askorbat förbrukades, probsignalen buffrades | Färgämnet oxiderade gradvis intracellulärt askorbat även när glukos fanns tillgängligt, samtidigt som probens oxidation delvis hämmades; försvarsreserven fick betala priset |
| Rotenonförbehandlade djur, färgämnet gavs först | Positivt vävnadsutfall | Förbehandling med färgämnet minskade rotenoninducerade skador på mitokondriellt DNA i mitthjärnan hos möss trots att peroxiden ökade i isolerade mitokondrier |
Det är mönstret mellan raderna som är poängen. Peroxidproduktion och biologiskt skydd är separata axlar. En behandling kan ge ett negativt utfall på den första och ett positivt på den andra samtidigt.
Varför samma dos ger olika svar
Koncentrationen bestämmer kapaciteten för elektrontransporten, inte utfallet. Peroxidfrisättningen från hjärnmitokondrier ökade mätbart från 50 nM och uppåt i studier av intakta hjärnmitokondrier, medan tydlig skada på mitokondriellt DNA krävde 100 uM i mörker. Det innebär ungefär en tvåtusenfaldig skillnad mellan den första signalen och genotoxicitet, men det är ingen säkerhetsmarginal. Utfallsmåtten, kompartmenten och exponeringstiderna skiljer sig åt, så siffrorna markerar skilda fenomen snarare än punkter på en och samma kurva. Diskussionen om dos–respons sätter denna typ av avstånd mellan signal vid låg koncentration och skada vid hög koncentration i ett bredare hormessammanhang.
Substratet avgör var elektronerna kommer in. NADH-kopplade energisubstrat ger färgämnet rikligt med reduktionsekvivalenter för både den användbara förbikopplingen och den ineffektiva reaktionen med syre. Den ofta citerade sammanfattningen att succinat gör färgämnet antioxidativt medan glutamat gör det prooxidativt övertolkar resultaten, eftersom hjärtstudiens peroxidförsök med succinat också innehöll rotenon och använde en annan vävnad och dos än hjärnstudien som fann ökad peroxid med varje substrat och i varje respirationstillstånd.
Ljus ändrar mekanismen, inte bara omfattningen. Den tydligaste kontrasten i materialet är att 20 uM i mörker inte gav någon påvisbar effekt på mitokondriella DNA-fragment, medan 20 uM under rött ljus skadade dem alla. Den som jämför ett belyst experiment med ett i mörker jämför fotokemi med redoxcykling.
Metaller omvandlar oxidanten. Utan metaller bildar färgämnets mörkercykel peroxid, en diffunderbar molekyl som celler också använder som signal. Med tillgängligt koppar eller järn driver NADH-reducerat färgämne metallreduktion, och den reducerade metallen aktiverar peroxid till hydroxylartade eller kopparperoxidbaserade reaktiva former intill DNA. Det är så cellfria studier med NADH och metalljoner gav både hotspot-selektiva och omfattande DNA-skador från samma ursprungliga färgämne. Kompartmentets metallhantering, inte färgämnet ensamt, avgör om denna reaktionsväg får betydelse.
Energitillgången avgör om cellen kan betala kostnaden. I endotelceller som exponerades för 2 till 20 uM färgämne blottlade borttagning av glukos oxidantkostnaden, medan glukostillförsel undanröjde den, trots att glukos också påskyndade reduktionen av färgämnet. Snabbare cykling med försvarsresurser slår långsammare cykling med uttömda försvar. Betrakta varje påstående om oxidanter som utelämnar glukos- eller NADPH-status som ofullständigt.
Vävnaden avgör vilken utrustning som finns. Endotelceller återbildar NADPH genom glukosmetabolismen och har cytosoliska antioxidantreserver. Isolerade mitokondrier har inget av detta. Renat DNA har inte ens reparationsmekanismer. Ett resultat i ett preparat säger lite om de andra, vilket är skälet till att den planerade artikeln om vävnadsspecifika reaktioner måste hålla dessa system åtskilda.
Direkt mätning är inte samma sak som efterföljande försvar
Många texter slår samman två nivåer som experimenten håller isär. Den ena nivån handlar om hur mycket oxidant som uppstod. Den andra handlar om hur cellen svarade.
Peroxidanalyser av Amplex-typ ligger närmast den första nivån, men även de rapporterar nettoflödet, alltså produktion minus nedbrytning minus export. Studien av hjärnmitokondrier visade förändringar på båda sidor: mer peroxid bildades och en tillsatt peroxidbolus avlägsnades långsammare. Längre ned i förloppet finns glutationoxidation, askorbatförbrukning, oxiderat guanin och DNA-skador som blockerar polymeras. Varje steg tillför biologiska processer mellan oxidanten och mätresultatet.
Nrf2-drivna antioxidantenzymer och mitokondriell biogenes hör till den andra nivån. De är anpassningsprogram som en mild peroxidpuls kan utlösa, och författarna till studien om skydd av hjärnmitokondrier föreslår just en sådan mild stressutlösning, samtidigt som de påpekar att orsakskedjan via Nrf2 bygger på tidigare forskning snarare än på en fullständig demonstration i deras egen studie. Skydd som uppstår timmar senare genom nya proteiner innebär inte att den inledande kemin var antioxidativ. Det innebär att en liten prooxidativ händelse gav ett större försvar. Riktlinjerna för att läsa sådana påståenden, inklusive analysbegränsningar och skillnader mellan preparat, behandlas i guiden till att läsa forskning om metylenblått.
Varför analyser ger olika resultat
En generell prob som dihydrofluorescein mäter bred proboxidation, inte en peroxidkoncentration. Den är beroende av peroxidas- och hemkemi och kan missa en peroxidökning som en kalibrerad Amplex-analys fångar upp. Studien av hjärnmitokondrier visade kraftigt ökad peroxid utan någon motsvarande superoxidsignal, vilket är en varning mot att citera antioxidativa påståenden baserade på ett enda färgämnestest. Optisk överlappning är en befogad kontrollfråga eftersom färgämnet absorberar synligt ljus nära vanliga excitations- och emissionsband, men den noggranna studien kalibrerade mot kända peroxidmängder, minskade excitationsexponeringen med liten förändring i signalen och bekräftade långsammare peroxidavlägsnande med en separat elektrod. Interferens är något som ska kontrolleras, inte ett skäl till automatiskt avfärdande.
Kalciumresultatet illustrerar samma behov av precision. Akut tillförsel av färgämnet förändrade inte den totala kalciumbelastningen före permeabilitetsövergången i hjärtstudien, men förbättrade hastigheten för kalciumupptag i blockerade hjärnmitokondrier i den diabetesinriktade studien av hjärtmitokondrier. Olika utfallsmått, olika system, ingen motsägelse.
En checklista innan du litar på en slutsats
Betrakta varje slutsats om antioxidativ eller prooxidativ verkan som en rapport om ett system och ställ fem frågor. Vid vilken koncentration och i vilket kompartment? Med vilken elektrondonator och vilken konkurrerande acceptor? I ljus eller mörker, och vid vilken våglängd och dos? Med vilka metaller tillgängliga och vilka resurser i form av energisubstrat och antioxidantreserver? Och med vilken analys, som mäter oxidantflöde, skada eller anpassningsrespons? Ändra ett enda svar och samma molekyl kan förflytta sig i matrisen från skyddande till skadlig utan någon paradox alls.