
Članak
Kada metilensko plavo ometa eksperiment kojim se meri
Jedna laboratorija uzgaja embrione zebrice u metilenskom plavom pri standardnoj koncentraciji za uzgoj, a zatim meri metabolizam na dva načina. Prvog dana, Seahorse analizator pokazuje povećanje potrošnje kiseonika. Četvrtog i petog dana, očitavanje sa Alamar Blue ploče pokazuje smanjenje potrošnje energije. Ista boja, ista linija riba, suprotni zaključci. Zatim dolazi nenametljiva kontrola: bunarići koji sadrže metilensko plavo i Alamar Blue reagens, bez ijedne ribe, takođe daju slabiji signal nego sam reagens. Deo rezultata poticao je od bioloških promena. Deo je bio posledica toga što je boja ocenjivala sopstveni ispit. Ta podela, dokumentovana u studiji o metilenskom plavom kod zebrica u razvoju, objavljenoj 2025. u časopisu Communications Biology, tipičan je obrazac interferencije metilenskog plavog u testovima i razlog zbog kog redoks-aktivne boje zahtevaju kontrole koje običnim ispitivanim jedinjenjima nisu potrebne.
Šta resazurinski test zapravo pokazuje
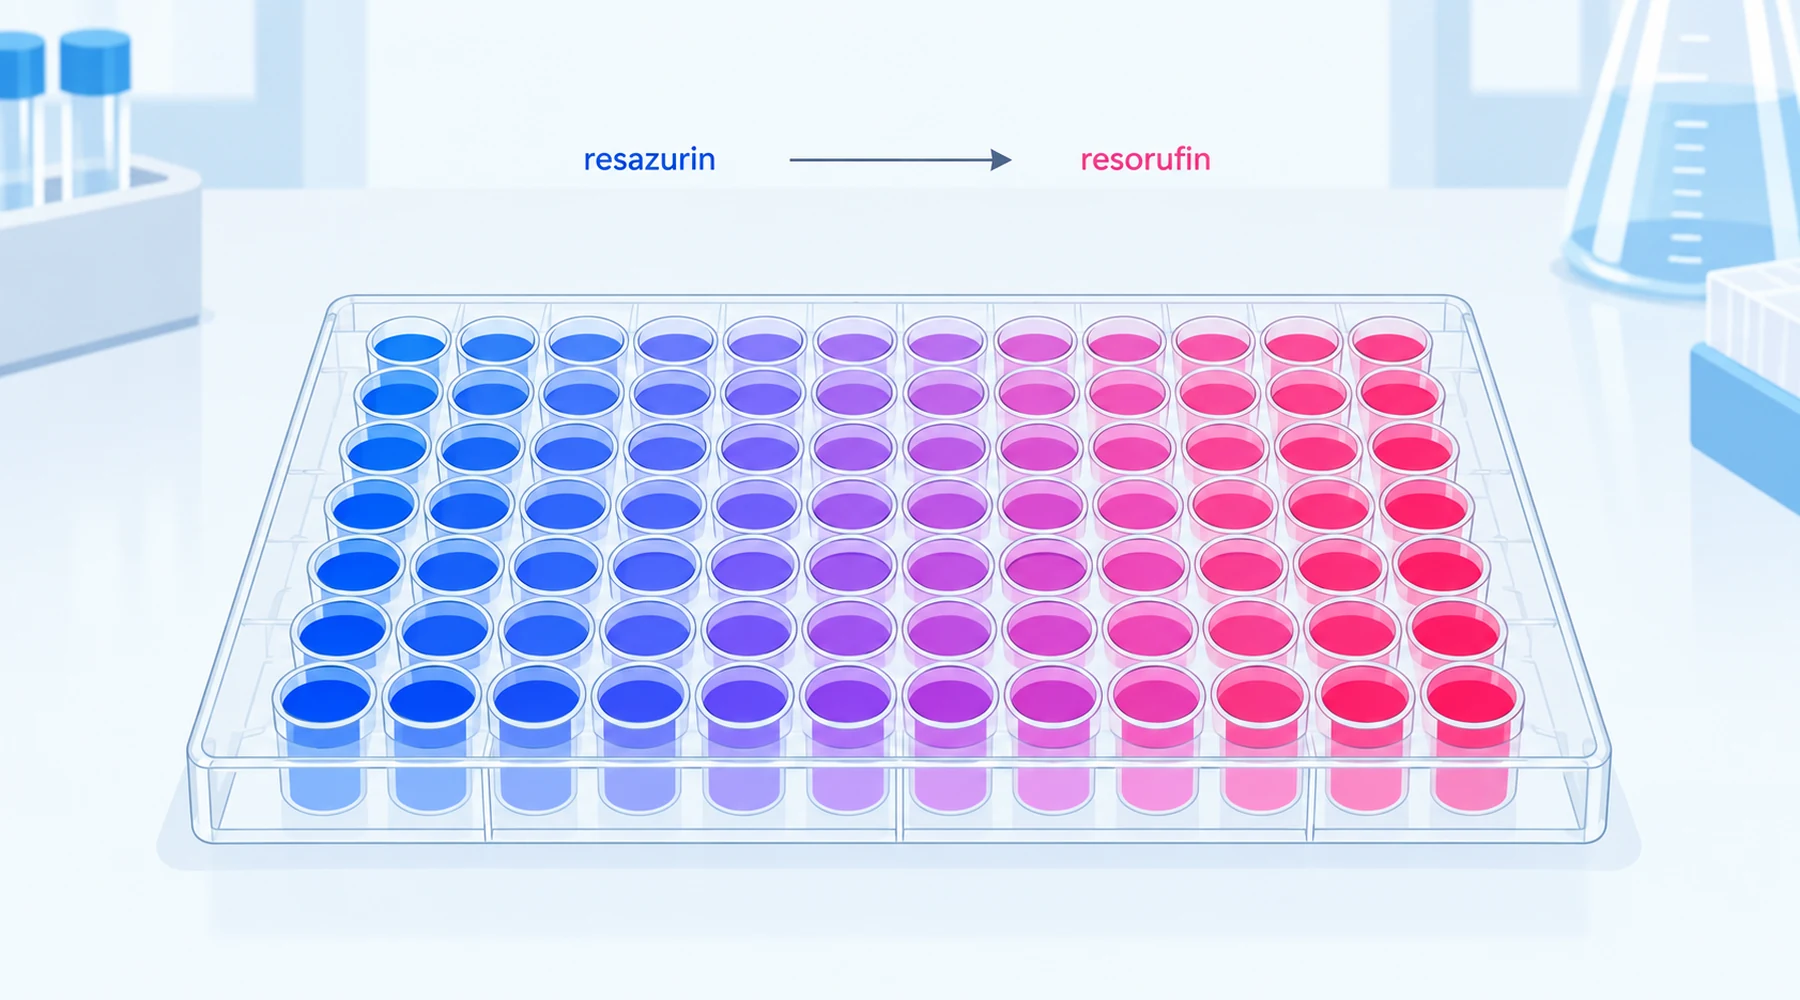
Alamar Blue je trgovački naziv za rastvor resazurina, pa interferencija metilenskog plavog sa Alamar Blue testom i interferencija metilenskog plavog sa resazurinskim testom opisuju isti sukob. Oksidovani resazurin je plav i jedva fluorescira. Metabolički aktivne ćelije redukuju ga u resorufin, koji je ružičast i snažno fluorescira pri ekscitaciji oko 560 nm i emisiji oko 590 nm, sa upotrebljivim opsezima ekscitacije od oko 530 do 570 nm i emisije od 580 do 610 nm, prema protokolu proizvođača za mikrotitarske ploče. Ako se redukcija nastavi, resorufin prelazi u dihidroresorufin, koji slabo fluorescira, pa previše ćelija u bunariću ili preduga inkubacija savijaju kalibracionu krivu naniže na njenom gornjem kraju.
Elektroni uglavnom potiču od NADH i NADPH, preko ćelijskih reduktaza i dijaforaza u citosolu, mikrozomima i mitohondrijama. Zato očitavanje predstavlja ukupni redukcioni kapacitet, a ne broj živih ćelija niti meru mitohondrijske aktivnosti. Jači signal može značiti više ćelija, veći redukcioni fluks po ćeliji ili oboje. Jedinjenje koje preusmerava NADH menja signal, a da pritom ne ubije nijednu ćeliju. Imajte tu rečenicu na umu, jer je preusmeravanje NADH svakodnevni posao metilenskog plavog.
Dva puta interferencije, jedan slabiji signal
Metilensko plavo iskrivljuje resazurinsko očitavanje kroz dva nezavisna mehanizma, a svaki od njih samostalno smanjuje prividnu fluorescenciju.
Put 1 je optički. Metilensko plavo snažno apsorbuje u crvenom delu spektra, sa monomernom trakom oko 660 do 665 nm i dimernim ramenom oko 607 do 610 nm, čiji se rep proteže ka emisiji resorufina oko 590 nm. Boja u optičkoj putanji apsorbuje deo ekscitacione svetlosti i ponovo apsorbuje deo emitovane fluorescencije, što je efekat unutrašnjeg filtera koji slabi signal bunarića čak i kada se proizvodnja resorufina ne menja. Spektar se takođe menja sa stanjem boje: faktorska analiza spektara metilenskog plavog u vodi i rastvorima ciklodekstrina razdvaja monomer, dimer i kompleks domaćin–gost kao tri vrste sa različitim koeficijentima ekstinkcije od 500 do 700 nm, pa se veličina optičke greške menja sa koncentracijom, agregacijom i vezivanjem. U eksperimentu razlikujte obično optičko slabljenje od molekulskog gašenja fluorescencije pomoću testa povraćaja dodatog standarda opisanog u nastavku, jer se načini korekcije razlikuju.
Put 2 je redoks nadmetanje. Oksidovano metilensko plavo prihvata elektrone od NAD(P)H i prelazi u bezbojno leuko-metilensko plavo, koje molekulski kiseonik ponovo oksiduje u plavi oblik, uz nastanak redukovanih proizvoda kiseonika, uključujući vodonik-peroksid. Svaki prolazak kroz taj ciklus troši redukcione ekvivalente koji bi inače redukovali resazurin, a ujedno troši kiseonik i usput stvara peroksid. Slabiji Alamar Blue signal zato može značiti da su elektroni prošli kroz ciklus metilenskog plavog umesto da doprinesu nastanku resorufina, što se na ploči očitava kao smanjen metabolizam bez obzira na to šta su ćelije radile. Ista hemija objašnjava obrnutu zamku u instrumentima za merenje kiseonika: ponovna oksidacija redukovane boje kiseonikom dovodi do hemijske potrošnje kiseonika bez ikakvog biološkog sistema, pa su slepe probe sa bojom potrebne i u respirometriji, kao što poređenje očitavanja kiseonika, ATP i membranskog potencijala objašnjava u kontekstu mitohondrija.
Promenjen signal i biološke promene mogu istovremeno biti stvarni
Studija na zebricama vredna je upravo zato što ne prihvata lako objašnjenje „ili jedno ili drugo“. Biološke promene bile su stvarne: bazalna potrošnja kiseonika porasla je kod embriona starih 1 dan pri obe koncentracije za uzgoj, respiracija povezana sa ATP porasla je pri nižoj koncentraciji, membranski potencijal meren sondom JC-10 porastao je drugog dana, a nivoi transkripata mitohondrijskih kompleksa opali su prvog i četvrtog dana. Artefakt je takođe bio stvaran: ribe isprane tri puta pre koraka sa Alamar Blue i dalje su imale vidljivo plavo obojenje u predelu glave, usta i olfaktorne regije, a bunarići bez ćelija, sa bojom i reagensom, sami su izgubili malu, ali značajnu količinu fluorescencije. Smanjenja Alamar Blue signala kod organizama četvrtog i petog dana bila su veća od efekta bez ćelija, pa su autori rezultat protumačili kao stvarnu metaboličku promenu posmatranu kroz blago iskrivljenu sliku. To je ispravan način razmišljanja. Supstanca koja prolazi kroz redoks ciklus i ujedno apsorbuje kao plava boja obično će istovremeno poremetiti i proučavani put i hemiju signalnog reagensa, a zadatak kontrola je da odrede veličinu svakog doprinosa, ne da jedan od njih proglase izmišljenim. Srodna pouka dolazi iz rada o vezivanju za ciklodekstrin: kada je molekul domaćina vezao boju, obojenje i aktivacija preuzimanja glukoze slabili su zajedno, što je ukazivalo na to da je metabolički efekat zahtevao direktnu interakciju sa bojom, a ne nespecifične redoks promene. Povezivanje fizičkog očitavanja boje sa funkcionalnim očitavanjem upravo je korak koji razdvaja mehanizam od artefakta, a vodič za tumačenje metaboličkih tvrdnji zasnovanih na bojama dalje razvija tu praksu.
Kontrole koje ih razdvajaju
Sprovedite ove kontrole pre tumačenja bilo kog rezultata sa metilenskim plavim dobijenog na resazurinskoj ploči. Koncentracije, medijum, vreme inkubacije i osvetljenje moraju tačno odgovarati ćelijskom eksperimentu, jer svaki prethodno opisani mehanizam zavisi od njih.
| # | Kontrola | Šta otkriva | Kriterijum prihvatljivosti | Ako kriterijum nije ispunjen |
|---|---|---|---|---|
| 1 | Medijum i boja, bez reagensa, bez ćelija | Pozadinski signal boje na talasnim dužinama testa | Pozadinski signal je mali u odnosu na ćelijski signal | Oduzmite slepe probe za svaku koncentraciju, nikada jednu zajedničku slepu probu |
| 2 | Medijum i reagens, bez boje, bez ćelija | Spontanu redukciju reagensa | Nizak, stabilan osnovni signal tokom inkubacije | Skratite inkubaciju, promenite medijum ili prihvatite viši donji prag |
| 3 | Medijum, boja i reagens, bez ćelija | Direktnu hemijsku reakciju boje i reagensa | Isto kao kontrola 2 u granicama šuma | Prijavite odstupanje, ne pripisujte ga ćelijama |
| 4 | Dodavanje poznate količine resorufina u bunariće sa nosačem naspram bunarića sa bojom | Optičko slabljenje ili gašenje fluorescencije | Jednak povraćaj u oba matriksa | Kvantifikujte gubitak za svaku dozu boje i korigujte rezultat ili promenite način očitavanja |
| 5 | Prenošenje ostataka boje bez ćelija, uz ispiranje naspram bez ispiranja | Preostalu boju nakon koraka ispiranja | Ispiranje uklanja efekat bez ćelija | Boja uneta u ćelije ostaje, pa kontrole 3 i 4 i dalje važe |
Kontrole 3 i 4 su par koji većina radova preskače, a koji je potreban većini radova o metilenskom plavom. Kontrola 3 otkriva hemijske efekte, kontrola 4 optičke, a zajedno određuju granice artefakta pre nego što se iznese bilo kakva tvrdnja o biološkom efektu.
Ortogonalna očitavanja, svako sa sopstvenim ograničenjima
Nijedan pojedinačni dodatni test ne potvrđuje pouzdanost prvog. Svako ortogonalno očitavanje izbegava jedan mehanizam, a ostaje izloženo drugom, pa izaberite kombinaciju čije se slepe tačke ne preklapaju. Matrica za izbor testova za redoks-aktivna jedinjenja objašnjava logiku uparivanja, a vodič za sonde membranskog potencijala detaljno obrađuje ograničenja fluorescencije.
Seahorse merenje potrošnje kiseonika prati elektrone do kiseonika umesto do resorufina, čime potpuno zaobilazi hemiju signalnog reagensa, ali boja takođe hemijski troši kiseonik, pa su slepe probe sa bojom bez mitohondrija u kompletnom medijumu obavezne. Testovi za ATP sa luciferazom koriste bioluminiscenciju umesto fluorescencije resorufina i tako izbegavaju i optičko preklapanje i nadmetanje za reduktaze, ali zauzvrat pokazuju bilans raspoloživog ATP, a ne fluks sinteze. Sonde membranskog potencijala kao što su TMRM ili JC-10 pokazuju da li se gradijent naelektrisanja održava, ali fluoresciraju u istom vidljivom opsegu u kom boja apsorbuje, pa i njih komplikuje preostalo plavo obojenje i potrebne su im slepe probe samo sa bojom pri svakoj dozi boje. Merenja transkripata podjedinica respiratornih kompleksa potpuno izbegavaju optičke efekte i objedinjuju promene tokom više sati, čime dopunjuju očitavanja sa ploče na vremenskoj skali od nekoliko minuta.
Minimalni pouzdani skup dokaza za tvrdnju o metaboličkom efektu metilenskog plavog zato obuhvata: resazurinski rezultat sa kontrolama 1 do 4, plus jedan krajnji pokazatelj koji nije zasnovan na resazurinu i koristi drugačiji fizički princip, plus izričit stav o tome da li promena odražava broj ćelija, redukcioni fluks po ćeliji ili oboje. Sve manje od toga ostavlja čitaoca bez mogućnosti da razlikuje slabiji metabolizam od slabijeg signala u bunariću.
Radni list za kontrolu interferencije
Prekopirajte ovaj radni list u laboratorijski dnevnik za svaki eksperiment koji kombinuje boju sa redoks signalnim reagensom. Ovo je originalni praktični materijal uz ovaj članak: popunite po jedan red za svaku koncentraciju boje.
A. Putevi nastanka signala. Za svaku koncentraciju zabeležite: očekivani režim monomera naspram dimera (niske mikromolarne koncentracije naspram desetina mikromola po litru i više), apsorbanciju konačnog sadržaja bunarića na 590 nm u bunariću bez ćelija i procenat povraćaja dodatog resorufina. Ako povraćaj padne ispod oko 90 procenata, sve vrednosti fluorescencije pri toj dozi tretirajte kao optički umanjene, a ne kao biološki tačne.
B. Provera hemijskih efekata. Zabeležite fluorescenciju boje i reagensa bez ćelija kao procenat osnovnog signala samog reagensa u svakom trenutku očitavanja. Ako odstupanje raste sa vremenom, boja tokom testa reaguje sa signalnim sistemom i očitavanja samo na kraju testa biće obmanjujuća. Razmotrite kinetička očitavanja ili drugačiji signalni reagens.
C. Unakrsna provera bioloških efekata. Navedite ortogonalno očitavanje izabrano za ovaj eksperiment, njegovu sopstvenu slepu probu sa bojom i predviđeni ishod ako je resazurinski rezultat stvaran. Stvarno smanjenje metabolizma trebalo bi da pomeri nezavisan krajnji pokazatelj u saglasnom smeru. Ako se ortogonalni pokazatelj ne slaže, još ne verujte nijednom rezultatu i preoblikujte eksperiment umesto da izračunate prosek ta dva rezultata.
D. Rečenica sa zaključkom. Napišite jednu rečenicu u sledećem obliku: pri navedenoj dozi i stadijumu, resazurinski signal promenio se za navedenu vrednost, od čega navedena vrednost predstavlja artefakt bez ćelija, a ortogonalni krajnji pokazatelj je (saglasan ili nije saglasan). Ako je bilo koje polje prazno, eksperiment nije završen.
Metilensko plavo ostaje korisna metabolička sonda, a rad na zebricama pokazuje stvarne mitohondrijske efekte pri dozama koje mnoge ustanove svakodnevno izlivaju u odvod. Boja jednostavno zahteva da se meri instrumentima na koje ne može da utiče. Obezbedite joj bunariće samo sa bojom, test povraćaja dodatog standarda i jedno očitavanje zasnovano na drugačijem fizičkom principu, pa interferencija prestaje da bude zamka i postaje veličina kojoj je pridružena brojčana vrednost.