
Článok
Meranie reaktívnych foriem kyslíka v experimentoch s metylénovou modrou
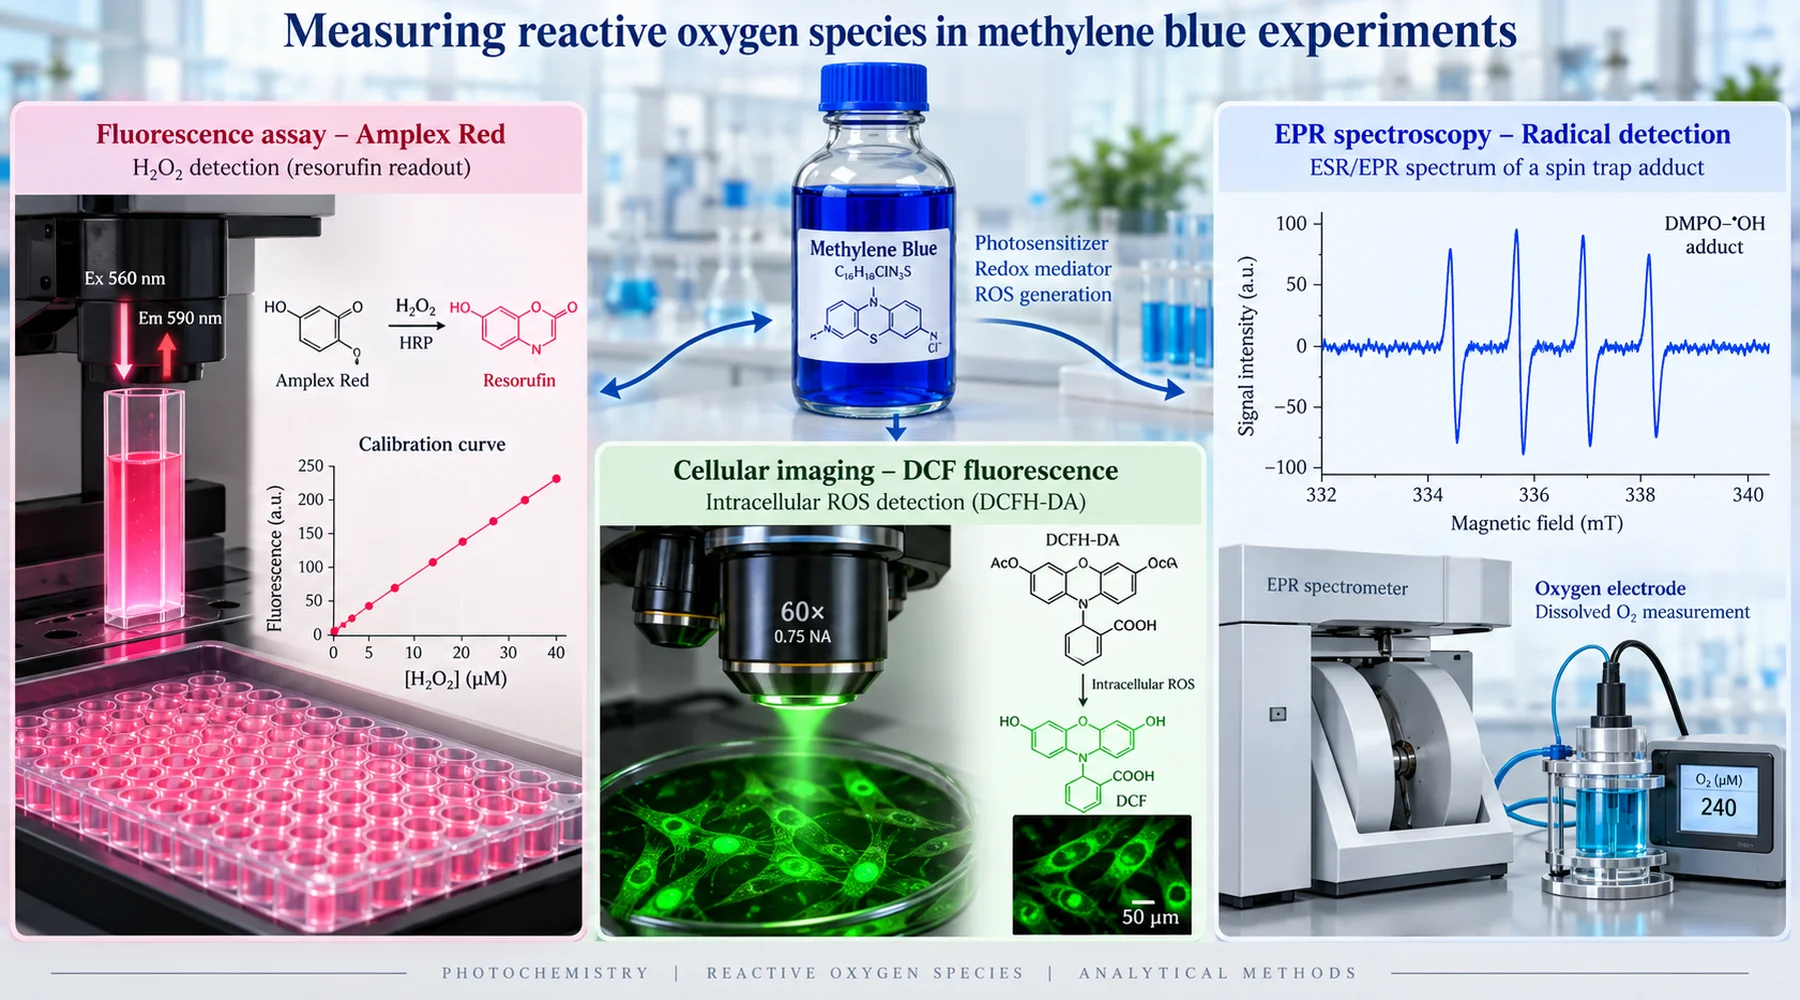
Dve laboratóriá vykonajú experiment, ktorý obe označia za skúmanie antioxidačného pôsobenia metylénovej modrej. Jedno uvádza, že farbivo potláča reaktívne formy kyslíka. Druhé uvádza, že ich vytvára. Obe predložia jednoznačné krivky závislosti odozvy od dávky. Obe sú úprimné. Rozdiel nespočíva v podvode ani v neschopnosti. Ide o to, že tieto dve skupiny merali odlišné veci pri odlišnom osvetlení, pomocou sond, ktoré odpovedajú na odlišné otázky, a potom obe odpovede opísali rovnakým slovom: ROS.
Presné meranie metylénovej modrej je náročné práve preto, že sa zapája do chemických reakcií, ktoré má pomáhať sledovať. V tme prenáša elektróny medzi donormi a akceptormi a vracia sa do svojej východiskovej formy, pripravená na ďalší cyklus. Pri osvetlení sa stáva fotosenzibilizátorom a dosahuje excitovaný tripletový stav, z ktorého môže odovzdať energiu kyslíku a vytvoriť singletový kyslík alebo prenášať elektróny a vytvárať radikály a peroxid vodíka. Každú sondu vloženú do tohto systému môže samotné farbivo oxidovať, redukovať, vybieliť alebo opticky zakryť. Prvá otázka pri každom meraní ROS preto nikdy neznie, aké je výsledné číslo. Znie, čo metóda skutočne deteguje a ako farbivo ovplyvňuje samotné meranie.
Amplex Red: kalibrované stanovenie peroxidu vodíka
Kombinácia metylénovej modrej a Amplex Red je pri správnom nastavení najlepšie obhájiteľnou dvojicou v tejto literatúre. Chemická reakcia je špecifická: chrenová peroxidáza využíva peroxid vodíka na oxidáciu substrátu Amplex na fluorescenčný produkt, resorufín, približne v stechiometrickom pomere jedna k jednej. Peroxid zo vzorky sa v detektore prejaví ako fluorescencia. Žiadna iná látka z bežne vymedzovanej skupiny ROS túto reakciu priamo nevyvoláva.
Rozhodujúcou výhodou je kalibrácia. Dôsledný experimentátor meria známe peroxidové štandardy v rovnakom pufri, pri rovnakých koncentráciách peroxidázy a substrátu, rovnakom čase inkubácie a rovnakých optických nastaveniach a potom vyhodnotí vzorky podľa tejto krivky. V štúdii izolovaných mozgových mitochondrií, o ktorú sa táto metóda opiera, autori postupovali presne takto: na konci každého merania pridali známe množstvá peroxidu a výsledky uviedli ako rýchlosti v pikomóloch za minútu na miligram proteínu, nie v arbitrárnych jednotkách fluorescencie. Práve to mení svetelný signál na meranie.
Tri detaily z tejto štúdie sa oplatí prevziať. Po prvé, autori overili signál pomocou katalázy, ktorá rozkladá peroxid. Nárast fluorescencie vyvolaný metylénovou modrou sa po pridaní katalázy zastavil, čím sa potvrdilo, že signál pochádzal z peroxidu, nie z optického artefaktu. Po druhé, priamo skúmali vplyv osvetlenia prerušovaním excitačného lúča uzávierkou, takže vzorky dostali jednu osminu bežnej svetelnej dávky a signál klesol iba o deväť percent. Viac než deväťdesiat percent nameraného peroxidu nezáviselo od svetla použitého pri meraní. Po tretie, samostatne merali odstraňovanie peroxidu pomocou elektródy a zistili, že farbivo zvyšovalo jeho tvorbu a zároveň spomaľovalo jeho odstraňovanie. Sonda, ktorá zaznamenáva iba výslednú fluorescenciu, by tieto dva účinky zlúčila.
Metóda má aj naďalej svoje úskalia a metylénová modrá odhaľuje hneď niekoľko z nich. Farbivo absorbuje v širokom rozsahu tej istej červenej oblasti, v ktorej resorufín emituje, takže pri vysokých koncentráciách farbiva môže vzorka zakryť vlastný signál v dôsledku efektov vnútorného filtra. Štandardy by preto mali obsahovať rovnakú koncentráciu farbiva ako vzorky. Amplex Red sa môže aj sám fotooxidovať a jeho produkt resorufín sa môže zapojiť do fotoredoxných cyklov, ktoré vytvárajú superoxid a peroxid. To je obzvlášť dôležité, keď experiment zahŕňa aj osvetlenie fotosenzibilizátora. Praktickým riešením je najprv ožiariť vzorky metylénovej modrej a potom analyzovať alikvotné podiely s činidlami Amplex v tme, namiesto spoločného osvetľovania farbiva a sondy. Napokon, superoxiddismutáza signál Amplex jednoducho nepotláča: premena superoxidu na peroxid ho môže zvýšiť. Kontrola so SOD, ktorá zvýši fluorescenciu, nezlyhala. Identifikovala superoxid ako látku vznikajúcu v predchádzajúcom kroku reakcie.
DCFDA: nešpecifický indikátor oxidácie
Kombinácia metylénovej modrej a DCFDA je zdrojom väčšiny nejasností. DCFH-DA je prekurzor používaný na zavedenie sondy do buniek. Esterázy v bunke odstránia jeho acetátové skupiny, čím vznikne nefluorescenčný DCFH, a oxidáciou DCFH vzniká fluorescenčný DCF. Zoznam látok, ktoré ho oxidujú, je dlhý: hydroxylové radikály, medziprodukty peroxidázových a hémových reakcií, oxid dusičitý, kyselina chlórna a radikály odvodené od peroxynitritu. Samotný peroxid vodíka ho priamo neoxiduje prakticky využiteľnou rýchlosťou; fluorescencia závislá od peroxidu spravidla vyžaduje zapojenie železa, hémových proteínov alebo peroxidázových reakcií.
Kritika, ktorú by mala citovať každá metodická časť, pochádza z analýzy DCFH ako sondy od Kalyanar amana a kolegov, zhrnutej v štúdii mozgových mitochondrií, ktorá z tohto dôvodu odmietla DCFDA. Ukázali, že sonda reaguje pomaly, s necharakterizovanou stechiometriou, bez platnej kalibrácie a aj so zlúčeninami, ktoré nie sú ROS. Sonda navyše zosilňuje to, čo meria: jednoelektrónovou oxidáciou DCFH vzniká radikál DCF, ktorý reaguje s kyslíkom za vzniku superoxidu, a ten sa dismutáciou premieňa na ďalší peroxid. Meranie tak čiastočne vytvára chemické procesy, ktoré zaznamenáva.
Nič z toho nerobí DCFDA nepoužiteľnou. Robí z nej skríningový nástroj, nie metódu identifikácie. Nárast fluorescencie DCF znamená, že sa zvýšila oxidácia sondy závislá od oxidantov. Neznamená to, že sa zvýšilo množstvo peroxidu, a už vôbec nie, že sa zvýšilo celkové množstvo ROS, ktoré nedokáže merať žiadna jednotlivá sonda. Staršie práce s metylénovou modrou, ktoré sa pri koncentráciách nad jeden mikromól na liter opierali o oxidáciu DCF, uvádzali prooxidačné účinky, zatiaľ čo iné systémy v tom istom období vykazovali ochranu pred bunkovou smrťou vyvolanou peroxidom. Obe pozorovania môžu platiť pre to isté farbivo v odlišných redoxných podmienkach a samotný výsledok DCF nedokáže určiť, ktorý oxidant bol nositeľom signálu. Význam skoršej práce s mozgovými mitochondriami spočíva v tom, že tento skríning nahradila kalibrovaným meraním peroxidu a jeho záťaž zistila priamo: už sto nanomólov farbiva na liter niekoľkonásobne zvýšilo uvoľňovanie peroxidu pri každom testovanom substráte a respiračnom stave.
DCFDA prináša ešte jednu pascu špecifickú pre metylénovú modrú. Farbivo je intenzívne sfarbené a redoxne aktívne, takže môže vybieliť fluorescenčný signál, zhasiť emisiu alebo oxidovať sondu nezávisle od bunkových ROS. Bezbunková kontrola s farbivom a sondou, ale bez buniek, nie je voliteľným doplnkom. Je to experiment, ktorý ukáže, či farbivo interaguje so sondou.
Zachytávanie spinov a spotreba kyslíka: identita a tok
Kým fluorescenčné sondy zaznamenávajú, že sa objavila látka schopná vyvolať oxidáciu, elektrónová spinová rezonancia so spinovými lapačmi poskytuje informáciu bližšiu tomu, o akú látku išlo. Klasická štúdia fotochémie metylénovej modrej využila ESR na detekciu askorbátového radikálu vznikajúceho pôsobením farbiva, askorbátu a svetla. Následne preukázala tvorbu peroxidu v experimentoch so spotrebou kyslíka a tvorbu hydroxylových radikálov katalyzovanú železom v experimentoch so zachytávaním spinov. Každá technika odpovedala na otázku, na ktorú ostatné odpovedať nedokázali: ESR určila identitu radikálu, spotreba kyslíka ukázala reakčný tok nezávisle od akejkoľvek fluorescenčnej sondy a ich kombinácia preukázala, že v tom istom osvetlenom systéme prebiehali reakčné dráhy zahŕňajúce singletový kyslík aj radikály.
Tento výsledok z roku 1984 stále pôsobí ako varovanie. Pri osvetlení a za prítomnosti redukčného činidla farbivo vytváralo peroxid a za prítomnosti železa systém produkoval hydroxylový radikál, najreaktívnejšiu látku zo skúmanej skupiny. Autori to spojili s askorbátom v oku a spochybnili neuvážené použitie v oftalmológii. Dnešní čitatelia by si mali všimnúť podmienky: svetlo, redukčné činidlo a železo. Odstránením ktorejkoľvek z týchto zložiek sa reakčná dráha oslabí alebo zanikne.
Kyslíkové elektródy majú svoje miesto z iného dôvodu. Elektróda Clarkovho typu meria čistú spotrebu kyslíka, čím preukazuje, že redoxné reakcie poháňané farbivom spotrebúvajú molekulový kyslík, a poskytuje kinetické údaje, ktoré žiadny fluorescenčný artefakt nedokáže napodobniť. Neidentifikuje však produkt. Tvorba peroxidu, superoxidu či vody aj zánik singletového kyslíka sa spájajú so spotrebou kyslíka. Tok bez identity je rovnako neúplný ako identita bez toku, preto kvalitné práce spájajú elektródu s kalibrovaným stanovením peroxidu alebo s lapačom.
Prečo si výsledky o antioxidačnom pôsobení odporujú
Keď tieto tri typy merania postavíme vedľa seba, zdanlivé rozpory v literatúre o metylénovej modrej sa vysvetlia rozdielmi v metódach a tromi biologickými skutočnosťami.
Po prvé, farbivo je prenášačom elektrónov aj zdrojom peroxidu. Odklonením elektrónov z miest respiračného reťazca, kde by sa kyslík inak premieňal na superoxid, môže znížiť jednu formu ROS, zatiaľ čo jeho redukovaná forma priamo redukuje kyslík na peroxid a zvyšuje inú. Laboratórium, ktoré skúma mitochondriálne redoxné reakcie a úlohu farbiva pri vytváraní obchádzkovej dráhy, by preto malo očakávať odpovede závislé od sondy: v tej istej kyvete signál citlivý na superoxid klesá, zatiaľ čo signál peroxidu stúpa.
Po druhé, peroxid pri nízkych dávkach slúži ako signál, nie iba ako zdroj poškodenia. Štúdia mitochondrií myšieho mozgu, ktorá nadviazala na skoršiu prácu, zistila tvorbu peroxidu už pri päťdesiatich nanomóloch farbiva na liter bez poškodenia mitochondriálnej DNA pri terapeutických koncentráciách a po predchádzajúcom pôsobení farbiva pozorovala ochranu pred poškodením vyvolaným rotenónom. Až pri sto mikromóloch na liter, výrazne nad terapeutickým rozsahom, farbivo poškodilo vybrané fragmenty DNA a červené svetlo spolu s dvadsiatimi mikromólmi farbiva na liter vytvorilo singletový kyslík, ktorý poškodil všetky testované fragmenty. Navrhovaný mechanizmus je hormetický: mierna tvorba peroxidu spúšťa antioxidačné obranné mechanizmy spojené s Nrf2 a mitochondriálnu biogenézu, takže krátkodobý prooxidačný výsledok predchádza dlhodobejšiemu antioxidačnému výsledku. Meranie po jednej hodine a meranie po jednom dni sa môžu líšiť, pretože biologické procesy sa medzitým zmenili.
Po tretie, svetlo rozhoduje aj o tom, ktorá molekula je vôbec prítomná. Osvetlenie demetyluje farbivo za vzniku Azure B a príbuzných produktov a na jeho fotosenzibilizáciu stačí aj lampa mikroskopu nad miskou. Experimenty v tme a pri osvetlení sú odlišné experimenty a časť každého protokolu venovaná kontrolám osvetlenia a manipulácii s farbivom by ich tak mala aj posudzovať.
Minimálny súbor kontrol a ako posudzovať akékoľvek tvrdenie
Nasledujúce porovnanie je pôvodným referenčným podkladom tohto článku. Skôr než prijmete akýkoľvek výsledok merania ROS s metylénovou modrou, overte si, ktorý riadok autori splnili a ktorý vynechali.
| Kontrola | Čo vylučuje | Ako ju vykonať |
|---|---|---|
| Tma oproti definovanému osvetleniu | Zámenu redoxných účinkov základného stavu s fotochémiou | Rovnaké farbivo, rovnaká matrica, jedna vetva v tme, druhá pri meranej svetelnej dávke |
| Sonda a svetlo, bez farbiva | Fotochémiu sondy | Osvetlite samotnú sondu; každý signál predstavuje základnú úroveň artefaktu |
| Farbivo a svetlo, bez buniek alebo substrátu | Zámenu bunkových ROS s ROS vznikajúcimi pôsobením samotného farbiva | Bezbunková matrica; určuje, čo vytvára samotné farbivo |
| Kataláza | Signál, ktorý pri meraní Amplex nepochádza z peroxidu | Signál by mal klesnúť; pamätajte, že osvetlené farbivo môže poškodiť samotnú katalázu |
| SOD | Účasť superoxidu | Nárast signálu Amplex poukazuje na superoxid v predchádzajúcom kroku reakcie, nie na zlyhanie metódy |
| Chelátor železa, napríklad deferoxamín | Hydroxylové reakcie Fentonovho typu | Testuje, či je za signálom DCFH alebo lapača redoxne aktívne železo |
| Peroxidové štandardy v kompletnej matrici | Nekalibrovanú fluorescenciu | Prídavky známeho množstva peroxidu pri rovnakej koncentrácii farbiva a rovnakých optických nastaveniach |
Z toho vyplýva praktické pravidlo interpretácie. Kalibrované meranie Amplex s peroxidázou a kontrolou pomocou katalázy poskytuje dôkaz o peroxide. DCFDA poskytuje dôkaz o nešpecifickej oxidácii sondy a o ničom viac. Zachytávanie spinov s kontrolami využívajúcimi vychytávače poskytuje dôkaz o identite radikálu. Spotreba kyslíka poskytuje dôkaz o toku. Veta, ktorá tvrdí viac, než môže jej metóda podložiť, je bez ohľadu na sebavedomosť formulácie vetou o sonde, nie o farbive. Súvisiace diskusie o závislosti od dávky a hormetickom rozsahu, mitochondriálnom toku elektrónov, interferencii pri meraní zafarbených vzoriek a artefaktoch spôsobených osvetlením pri mikroskopii rozvíjajú každý z týchto bodov a každý zostáva platný aj po nahradení jeho zástupného odkazu.