
Článok
Keď metylénová modrá interferuje s experimentom, ktorým sa meria
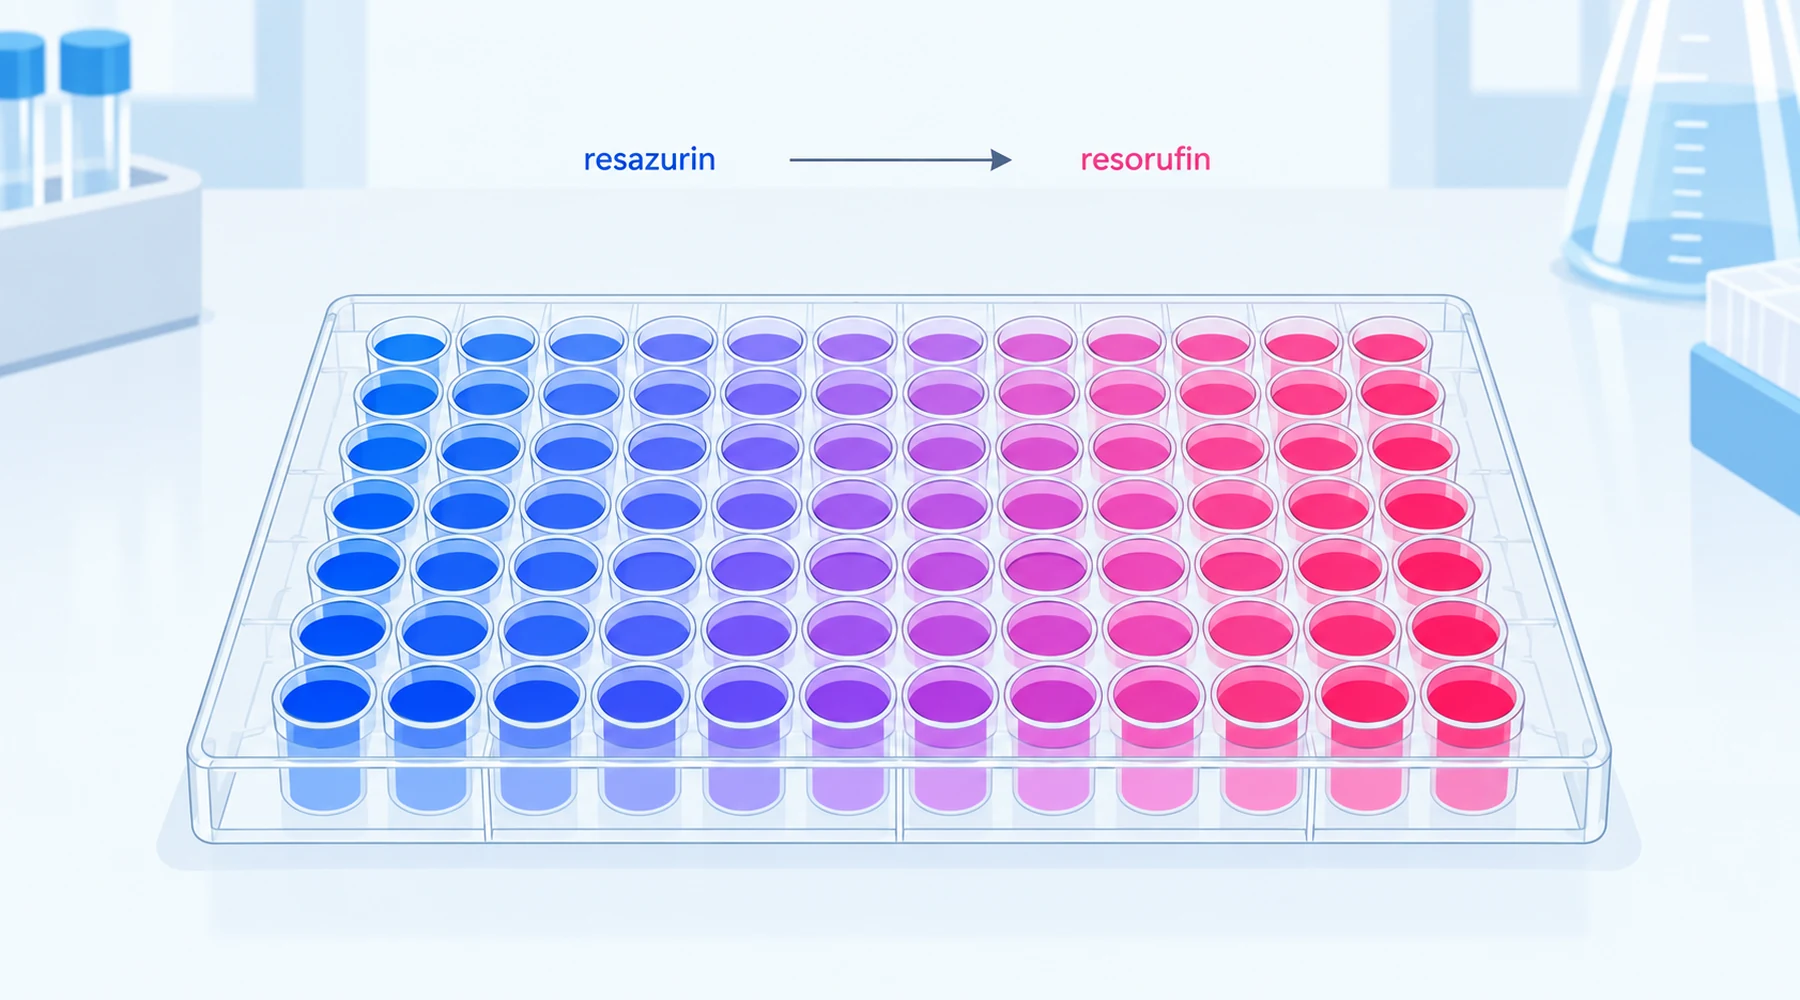
Jedno laboratórium odchováva embryá dania pruhovaného v metylénovej modrej pri štandardnej chovnej koncentrácii a potom meria metabolizmus dvoma spôsobmi. Prvý deň analyzátor Seahorse hlási zvýšenú spotrebu kyslíka. Štvrtý a piaty deň meranie na platni s Alamar Blue hlási znížený energetický výdaj. Rovnaké farbivo, rovnaká línia rýb, opačné závery. Potom prichádza nenápadná kontrola: aj jamky obsahujúce metylénovú modrú a reagenciu Alamar Blue bez akýchkoľvek rýb vykazujú slabší signál než samotná reagencia. Časť výsledku bola biológia. Časť bola tým, že farbivo hodnotilo vlastnú skúšku. Toto rozdelenie, zdokumentované v štúdii z roku 2025 v Communications Biology o metylénovej modrej u vyvíjajúceho sa dania pruhovaného, je typickým prejavom interferencie metylénovej modrej v testoch. Práve preto redoxne aktívne farbivá vyžadujú kontroly, ktoré pri bežných testovaných zlúčeninách nie sú potrebné.
Čo rezazurínový test skutočne ukazuje
Alamar Blue je obchodný názov roztoku rezazurínu, takže interferencia metylénovej modrej s Alamar Blue a interferencia metylénovej modrej v rezazurínovom teste označujú ten istý stret. Oxidovaný rezazurín je modrý a takmer nefluoreskuje. Metabolicky aktívne bunky ho redukujú na rezorufín, ktorý je ružový a silno fluoreskuje pri excitácii približne 560 nm a emisii 590 nm. Podľa protokolu výrobcu pre mikrotitračné platne sú použiteľné rozsahy približne 530 až 570 nm pre excitáciu a 580 až 610 nm pre emisiu. Ak redukcia pokračuje ďalej, rezorufín sa mení na dihydrorezorufín, ktorý fluoreskuje slabo. Príliš veľa buniek v jamke alebo príliš dlhý čas preto ohýba horný koniec kalibračnej krivky nadol.
Elektróny pochádzajú prevažne z NADH a NADPH prostredníctvom bunkových reduktáz a diaforáz v cytosole, mikrozómoch a mitochondriách. Meranie tak vyjadruje súhrnnú redukčnú kapacitu, nie počet životaschopných buniek ani mitochondriálnu aktivitu. Vyšší signál môže znamenať viac buniek, vyšší redukčný tok na bunku alebo oboje. Zlúčenina, ktorá presmeruje NADH, zmení signál bez toho, aby usmrtila jedinú bunku. Túto vetu majte na pamäti, pretože presmerovanie NADH je pre metylénovú modrú bežnou činnosťou.
Dve cesty interferencie, jeden znížený signál
Metylénová modrá skresľuje rezazurínové meranie dvoma nezávislými cestami a každá z nich aj samostatne znižuje zdanlivú fluorescenciu.
Cesta 1 je optická. Metylénová modrá silno absorbuje v červenej oblasti spektra. Jej monomérny pás leží približne pri 660 až 665 nm a dimérne rameno približne pri 607 až 610 nm, pričom jeho chvost siaha späť k emisii rezorufínu okolo 590 nm. Farbivo v optickej dráhe absorbuje časť excitačného svetla a opätovne absorbuje časť emitovanej fluorescencie. Tento efekt vnútorného filtra zoslabuje signál jamky aj vtedy, keď sa tvorba rezorufínu nemení. Spektrum sa mení aj so stavom farbiva: faktorová analýza spektier metylénovej modrej vo vode a v roztokoch cyklodextrínu rozlišuje monomér, dimér a komplex hostiteľ–hosť ako tri formy s odlišnými extinkčnými koeficientmi od 500 do 700 nm. Veľkosť optickej chyby sa preto mení s koncentráciou, agregáciou a väzbou. V experimente odlíšte jednoduché optické zoslabenie od molekulového zhášania pomocou nižšie opísaného testu výťažnosti prídavku štandardu, pretože spôsob nápravy sa líši.
Cesta 2 je redoxná konkurencia. Oxidovaná metylénová modrá prijíma elektróny z NAD(P)H a tvorí bezfarebnú leukometylénovú modrú. Molekulový kyslík ju znovu oxiduje na modrú formu, pričom vznikajú produkty redukcie kyslíka vrátane peroxidu vodíka. Každý obrat tohto cyklu spotrebúva redukčné ekvivalenty, ktoré by inak redukovali rezazurín, a zároveň spotrebúva kyslík, pričom vedľajším produktom je peroxid. Znížený signál Alamar Blue preto môže znamenať, že elektróny prešli cyklom metylénovej modrej namiesto toho, aby smerovali do rezorufínu. Na platni sa to javí ako utlmený metabolizmus bez ohľadu na to, čo bunky skutočne robili. Tá istá chémia vysvetľuje zrkadlovo obrátenú pascu pri prístrojoch merajúcich kyslík: reoxidácia redukovaného farbiva kyslíkom vyvoláva chemickú spotrebu kyslíka aj bez biologického materiálu. Slepé vzorky s farbivom preto patria aj do respirometrie, ako pre mitochondriálny prípad vysvetľuje porovnanie meraní kyslíka, ATP a membránového potenciálu.
Zmenený signál aj zmenená biológia môžu byť skutočné
Štúdia na daniu pruhovanom je cenná práve preto, že odmieta jednoduchú voľbu medzi jedným a druhým. Biológia bola skutočná: bazálna spotreba kyslíka sa u 1-dňových embryí zvýšila pri oboch chovných koncentráciách, respirácia spojená s tvorbou ATP sa zvýšila pri nižšej koncentrácii, membránový potenciál meraný sondou JC-10 sa zvýšil na druhý deň a množstvo transkriptov mitochondriálnych komplexov kleslo na prvý a štvrtý deň. Skutočný bol aj artefakt: ryby trikrát premyté pred krokom s Alamar Blue stále vykazovali viditeľné modré zafarbenie hlavy, úst a čuchovej oblasti. Jamky bez buniek obsahujúce farbivo a reagenciu pritom samy osebe stratili malú, ale významnú časť fluorescencie. Poklesy signálu Alamar Blue u organizmov na štvrtý a piaty deň boli väčšie než efekt v jamkách bez buniek, preto autori interpretovali výsledok ako skutočnú metabolickú zmenu pozorovanú cez mierne skresľujúcu optiku. To je správny spôsob uvažovania. Redoxne cyklujúca látka, ktorá zároveň absorbuje svetlo ako modré farbivo, zvyčajne narúša súčasne skúmanú dráhu aj chémiu indikátora. Úlohou kontrol je určiť veľkosť každého príspevku, nie vyhlásiť jeden z nich za vymyslený. Súvisiace ponaučenie prináša práca o väzbe na cyklodextrín: keď hostiteľská molekula zachytila farbivo, zafarbenie aj aktivácia príjmu glukózy slabli spoločne. To naznačovalo, že metabolický účinok vyžaduje priamu interakciu farbiva, nie rozptýlený redoxný šum. Korelácia fyzikálneho merania farbiva s funkčným meraním je presne tým postupom, ktorý oddeľuje mechanizmus od artefaktu. Sprievodca interpretáciou metabolických tvrdení založených na farbivách tento prístup rozvíja ďalej.
Kontroly, ktoré ich oddeľujú
Tieto kontroly vykonajte skôr, než začnete interpretovať akýkoľvek výsledok metylénovej modrej z rezazurínovej platne. Koncentrácie, médium, čas inkubácie a osvetlenie musia presne zodpovedať experimentu s bunkami, pretože od nich závisí každá z uvedených ciest.
| # | Kontrola | Čo zisťuje | Kritérium splnenia | Ak nie je splnené |
|---|---|---|---|---|
| 1 | Médium a farbivo, bez reagencie, bez buniek | Pozadie farbiva pri vlnových dĺžkach testu | Pozadie je malé oproti bunkovému signálu | Odčítajte slepé vzorky pre každú koncentráciu, nikdy nie jednu spoločnú slepú vzorku |
| 2 | Médium a reagencia, bez farbiva, bez buniek | Spontánna redukcia reagencie | Nízka, stabilná základná hodnota počas inkubácie | Skráťte inkubáciu, zmeňte médium alebo akceptujte vyššiu dolnú hranicu |
| 3 | Médium, farbivo a reagencia, bez buniek | Priama chemická interakcia farbiva s reagenciou | Rovnaký výsledok ako pri kontrole 2 v rámci šumu | Uveďte odchýlku, nepripisujte ju bunkám |
| 4 | Prídavok rezorufínu do jamiek s vehikulom oproti jamkám s farbivom | Optické zoslabenie alebo zhášanie | Rovnaká výťažnosť v oboch matriciach | Vyčíslite stratu pri každej dávke farbiva a vykonajte korekciu alebo zmeňte spôsob merania |
| 5 | Zvyškový prenos bez buniek po premytí oproti stavu bez premytia | Zvyškové farbivo po vašich premývacích krokoch | Premytie odstráni efekt pozorovaný bez buniek | Farbivo prijaté do buniek zostáva, takže kontroly 3 a 4 sú stále potrebné |
Kontroly 3 a 4 sú dvojicou, ktorú väčšina článkov vynecháva a väčšina článkov o metylénovej modrej potrebuje. Kontrola 3 zachytáva chémiu, kontrola 4 optiku a spoločne vymedzujú artefakt skôr, než sa vysloví akékoľvek biologické tvrdenie.
Ortogonálne merania, každé s vlastnými obmedzeniami
Žiadny jediný druhý test nepotvrdí správnosť prvého. Každé ortogonálne meranie obchádza jednu cestu a zostáva vystavené inej. Vyberte preto kombináciu, ktorej slepé miesta sa neprekrývajú. Matica výberu testov pre redoxne aktívne zlúčeniny vysvetľuje logiku ich kombinovania a sprievodca sondami membránového potenciálu podrobne rozoberá obmedzenia fluorescencie.
Meranie spotreby kyslíka pomocou Seahorse sleduje elektróny smerujúce ku kyslíku namiesto rezorufínu, čím úplne obchádza chémiu indikátora. Farbivo však kyslík spotrebúva aj chemicky, preto sú nevyhnutné slepé vzorky s farbivom v kompletnom médiu bez mitochondrií. Luciferázové testy ATP využívajú bioluminiscenciu namiesto fluorescencie rezorufínu, a tak sa vyhýbajú optickému prekryvu aj konkurencii o reduktázy. Cenou za to je, že ukazujú bilanciu zásoby ATP, nie tok jeho syntézy. Sondy membránového potenciálu, ako TMRM alebo JC-10, odpovedajú na otázku, či sa udržiava nábojový gradient. Fluoreskujú však v rovnakej viditeľnej oblasti, v ktorej farbivo absorbuje, takže aj ich meranie komplikuje zvyškové modré zafarbenie. Pri každej dávke farbiva preto potrebujú slepé vzorky obsahujúce iba farbivo. Merania transkriptov podjednotiek respiračných komplexov sa optike úplne vyhýbajú a zachytávajú zmeny v priebehu hodín, čím dopĺňajú merania na platni v minútovom časovom meradle.
Minimálny dôveryhodný súbor podkladov pre tvrdenie o metabolickom účinku metylénovej modrej preto tvorí: rezazurínový výsledok s kontrolami 1 až 4, jeden nerezazurínový ukazovateľ založený na odlišnom fyzikálnom princípe a uvedené stanovisko k tomu, či zmena odráža počet buniek, redukčný tok na bunku alebo oboje. Pri čomkoľvek menšom čitateľ nedokáže rozlíšiť slabší metabolizmus od slabšieho signálu jamky.
Pracovný list na kontrolu interferencie
Tento pracovný list si skopírujte do laboratórneho denníka pre každý experiment, ktorý kombinuje farbivo s redoxným indikátorom. Je to pôvodná pomôcka vytvorená pre tento článok: vyplňte jeden riadok pre každú koncentráciu farbiva.
A. Cesty ovplyvnenia signálu. Pre každú koncentráciu zaznamenajte: očakávané zastúpenie monomérov oproti dimérom (nízke mikromolárne koncentrácie oproti desiatkam mikromolárnych koncentrácií a vyšším), absorbanciu konečného obsahu jamky pri 590 nm v jamke bez buniek a percentuálnu výťažnosť prídavku rezorufínu. Ak výťažnosť klesne pod približne 90 percent, považujte všetky hodnoty fluorescencie pri danej dávke za opticky zoslabené, nie za biologicky presné.
B. Kontrola chémie. Pri každom čase merania zaznamenajte fluorescenciu farbiva s reagenciou bez buniek ako percento základnej hodnoty samotnej reagencie. Ak odchýlka časom rastie, farbivo počas testu reaguje s indikačným systémom a merania iba v koncovom bode budú zavádzajúce. Zvážte kinetické merania alebo iný indikátor.
C. Krížové overenie biológie. Uveďte ortogonálne meranie zvolené pre tento experiment, jeho vlastnú slepú vzorku s farbivom a predpokladaný výsledok, ak je rezazurínový výsledok skutočný. Skutočný útlm metabolizmu by mal posunúť nezávislý ukazovateľ zodpovedajúcim smerom. Ak sa ortogonálny ukazovateľ nezhoduje, zatiaľ neverte ani jednému výsledku a namiesto ich spriemerovania prepracujte experiment.
D. Záverečná veta. Napíšte jednu vetu v tvare: pri uvedenej dávke a štádiu sa rezazurínový signál zmenil o uvedenú hodnotu, z ktorej uvedená časť predstavuje artefakt bez buniek, a ortogonálny ukazovateľ (súhlasí alebo nesúhlasí). Ak je niektorý údaj prázdny, experiment nie je dokončený.
Metylénová modrá zostáva užitočnou metabolickou sondou a práca na daniu pruhovanom ukazuje skutočné mitochondriálne účinky pri dávkach, ktoré mnohé pracoviská denne vylievajú do odpadu. Farbivo jednoducho trvá na tom, aby sa meralo prístrojmi, ktoré nemôže ovplyvniť. Doprajte mu jamky obsahujúce iba farbivo, test výťažnosti prídavku štandardu a jedno meranie založené na odlišnom fyzikálnom princípe. Interferencia potom prestane byť pascou a stane sa veličinou s priradeným číslom.