Статья
Метиленовый синий и NAD+/NADH: интерпретация клеточного редокс-баланса
Сообщения о метиленовом синем и NAD+ склонны смешивать три разных утверждения в одно. Первое утверждение состоит в том, что соотношение NAD+ к NADH сдвинулось в сторону окисленного состояния. Второе состоит в том, что клетка содержит больше общего NAD. Третье состоит в том, что выработка энергии восстановилась. Это звучит как единая история о восстановлении метаболизма. В экспериментах эти результаты регулярно расходятся, и самые интересные результаты возникают именно там, где они различаются.
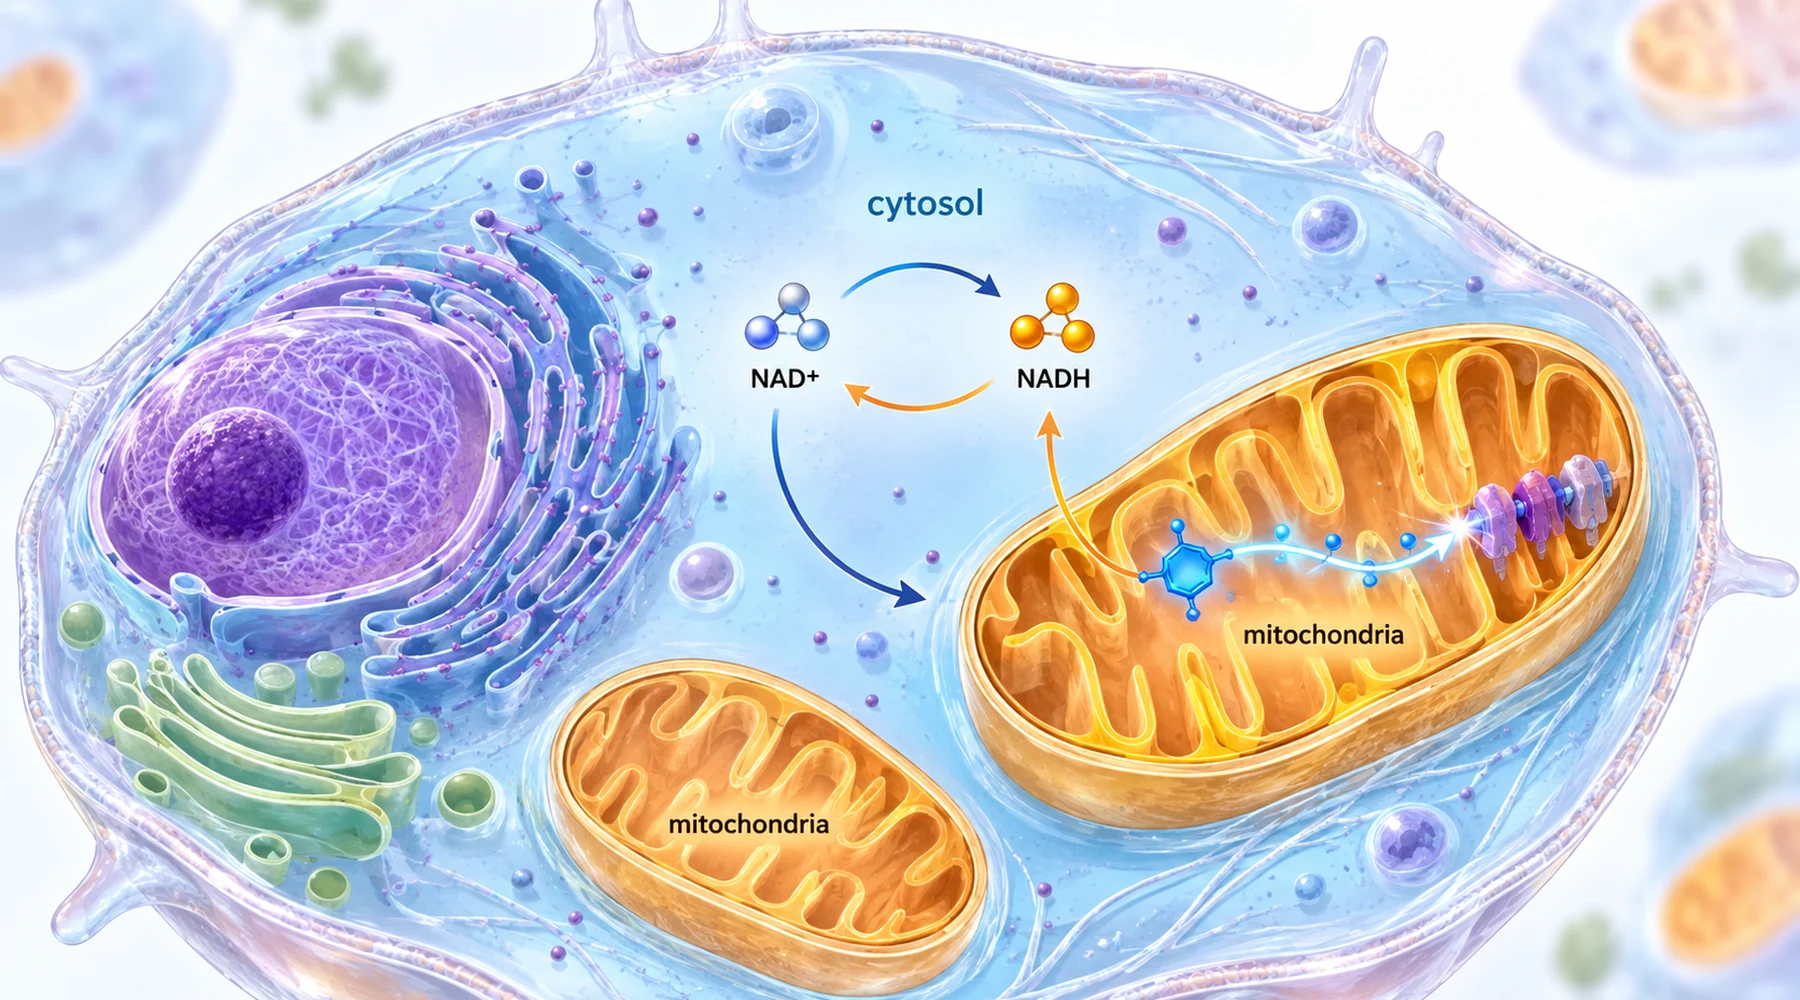
Путаница понятна, поскольку для этих трёх величин используется один словарь. NAD+ принимает электроны в метаболических реакциях и превращается в NADH, затем митохондрии окисляют NADH обратно до NAD+ на комплексе I и используют высвободившуюся энергию для синтеза ATP. Более подробное описание этого пути электронов приведено в объяснении митохондриального транспорта электронов, а энергетическая сторона рассмотрена в статье ATP и энергетический метаболизм. Но соотношение и пул представляют собой разные объекты. Соотношение показывает, как существующий парк молекул-переносчиков распределён между состояниями с грузом и без груза. Пул показывает, сколько молекул-переносчиков вообще существует. Улучшение соотношения при том же пуле означает перераспределение, а не производство.
Два компартмента, два индикатора
Есть и второе различие, которое приводит к незаметным ошибкам интерпретации. Цитозольный и митохондриальный пулы NAD в значительной степени разделены внутренней митохондриальной мембраной, поэтому каждый компартмент может независимо находиться в относительно окисленном или восстановленном состоянии. Единственное число для всей клетки скрывает это.

Исследования печени позволили измерить это разделение компартментов. Равновесие между лактатом и пируватом отражает цитозольное соотношение NAD+ к NADH, поскольку лактатдегидрогеназа связывает эти две пары. Равновесие между 3-гидроксибутиратом и ацетоацетатом отражает митохондриальное соотношение через аналогичное сопряжение. Когда обе пары измеряют в ткани, мгновенно замороженной методом freeze-clamp, как в исследовании хронического кормления крыс этанолом, получают два показателя редокс-состояния одной печени, и соединение может изменять один из них сильнее другого.
Метиленовый синий действует в этой системе как переносчик электронов, а не как топливо. Он принимает электроны от NADH вблизи комплекса I, переходя в восстановленную форму, затем передаёт их дальше по цепи переносчикам, таким как цитохром c. Итоговый эффект состоит в окислении NADH без прохождения полного обычного пути. Этот механизм объясняет как его привлекательность, так и пределы: он может ослабить застой в восстановленном состоянии, но не восстанавливает повреждённый комплекс и не синтезирует новые молекулы NAD.
Пять исследований, одна закономерность расхождения результатов
В таблице ниже пять исследований сопоставлены по ткани, редокс-показателю, энергетическому показателю и тому, что действительно восстановилось. Читайте последние два столбца как пару. В этом сопоставлении и заключается смысл статьи.
| Ткань и повреждающее воздействие | Редокс-показатель при применении метиленового синего | Показатели энергии и сигнализации | Функциональный результат |
|---|---|---|---|
| Печень крысы, хроническая этанольная диета | Цитозольное и митохондриальное соотношения NAD+/NADH в значительной степени восстановлены; глицерол-3-фосфат нормализован | ATP не изменился ни под действием этанола, ни при лечении; небольшое снижение ATP с красителем в поздней временной точке | Жировая инфильтрация не изменилась; липиды и триацилглицерол остались повышенными |
| Гепатоциты и печень мыши на диете с высоким содержанием жиров | Соотношение NAD+/NADH и содержание NAD+ повышены в клетках и печени | SIRT1 повышен, PGC-1alpha деацетилирован, митохондриальная ДНК и потребление кислорода увеличены, SIRT1-зависимая активация AMPK | Накопление жира в печени и стеатогепатит уменьшились |
| Сердце крысы с диабетом | Соотношение NADH/NAD+ снижено при окислении субстратов в изолированных митохондриях | Активность SIRT3 повышена; ацетилирование лизина снижено в 83 участках на 34 белках | Объёмы сердца и фракция выброса улучшились; сам дефект комплекса I не устранён |
| Сетчатка мыши с дефицитом AIF и обработанные ротеноном фоторецепторные клетки | Соотношение NADH/NAD+ нормализовано в клетках; окислительный стресс снижен | Дефицит ATP в клетках не устранён; пути митохондриального стресса подавлены | Толщина сетчатки и маркеры фоторецепторов сохранены; выживаемость клеток улучшилась |
| Ахиллово сухожилие человека и крысы, окислительное и коллагеназное повреждение | Баланс NAD+ и химические показатели общего NAD восстановлены в направлении контрольных значений | ATP повышен и ROS снижены там, где наблюдалось восстановление | Маркеры матрикса улучшились, кроме условий прямой блокады комплекса I, при которых химические показатели изменились, но ткань не восстановилась |
Где коррекция редокс-состояния не восстановила ткань
Самое старое исследование в этой подборке остаётся наиболее убедительным предостережением. У крыс, получавших этанол в количестве 36 процентов энергетической ценности рациона, снизились цитозольное и митохондриальное соотношения NAD+/NADH, измеренные по обеим индикаторным парам, а метиленовый синий в рационе в дозе около 42 mg на kg в день в значительной степени предотвращал эти сдвиги. Однако к поздней временной точке содержание триацилглицерола в печени примерно утроилось независимо от наличия красителя, а гистология показала такое же центролобулярное отложение жира. Авторы прямо сформулировали неудобный вывод: редокс-сдвиг, сопровождающий окисление этанола, сам по себе не является причиной жировой болезни печени. Читатель, который приравнивает исправленное соотношение к восстановленному органу, неверно передаст содержание этой работы. Полный дизайн, включая контрольные группы с парным кормлением и забор проб в полночь на пике интоксикации, изложен в исследовании печени при воздействии этанола.
Сравните это с работой о печени при диете с высоким содержанием жиров, где тот же тип изменения соотношения сопровождался реальным улучшением ткани. В гепатоцитах и в печени мышей после перорального введения метиленовый синий повышал соотношение NAD+/NADH, а сигнальную цепь проследили шаг за шагом: повышение SIRT1, деацетилирование PGC-1alpha, повышение маркеров митохондриального биогенеза и потребления кислорода, затем вовлечение AMPK, CPT-1 и PPARalpha, причём была показана зависимость активации AMPK от SIRT1. У мышей на диете с высоким содержанием жиров в печени накапливалось меньше жира. Предполагаемая логика заключается в том, что здесь редокс-сдвиг разблокировал ось регуляции генов, а не просто изменил химический баланс, как подробно описано в исследовании SIRT1 и AMPK в печени. Та же группа измерений, что и в исследовании этанола, но противоположный вывод о ткани. Различие заключается в последующем сигнальном пути, а не только в соотношении.
Сердце и сетчатка: сиртуины, ацетилирование и защита без восстановления ATP
Исследование сердца при диабете связывает редокс-сдвиг с ацетилированием белков через другой сиртуин. В митохондриях при диабете наблюдается избыточное ацетилирование лизина в метаболических ферментах, которое связано с негибкостью использования субстратов. Метиленовый синий в дозе 10 mg на kg в день облегчал окисление NADH дозозависимым образом в диапазоне от 6 до 18 микромоляр в изолированных митохондриях, повышал активность SIRT3 и широко снижал ацетилирование, а объёмы сердца и фракция выброса улучшались, несмотря на сохранение исходного нарушения комплекса I. В работе прямо описано поведение доз в других публикациях: низкие концентрации благоприятствуют роли переносчика восстановительных эквивалентов, тогда как более высокие могут непродуктивно перенаправлять электроны, поэтому эффект является горметическим, а не монотонным. Протеомное исследование и измерения сердца представлены в исследовании ацетилирования в сердце при диабете. Обоснование с позиции окислительного стресса рассматривается в материале об окислительном стрессе и контроле ROS.
Исследование сетчатки доводит это разделение до предела. У мышей Harlequin с дефицитом AIF, то есть дефектом сборки комплекса I, метиленовый синий сохранял толщину сетчатки, наружные сегменты фоторецепторов и маркеры палочек, колбочек, клеток Мюллера и ганглиозных клеток. В обработанных ротеноном фоторецепторных клетках 661W краситель нормализовал соотношение NADH к NAD+ и снижал активные формы кислорода при концентрации 15 микромоляр, однако ATP оставался сниженным при концентрациях, способствовавших выживанию. Структура и выживаемость сохранялись без восстановления энергетики, одновременно с подавлением митохондриального ответа на несвёрнутые белки и митофагии. Этот результат меняет представление о красителе: он ослабляет восстановительный и окислительный стресс, а не восстанавливает выработку энергии, что задокументировано в исследовании защиты фоторецепторов сетчатки.
Сухожилие: эксперимент, в котором химические показатели изменились, а ткань не восстановилась
Работа об ахилловом сухожилии содержит обе закономерности внутри одной статьи и заслуживает внимательного чтения. Полный разбор каждой ветви эксперимента приведён в анализе исследования ахилловой тендинопатии 2026 года. В поражённом сухожилии наблюдались истощение NAD+, низкое соотношение NAD+ к NADH, слабые маркеры комплекса I, низкий ATP и нарушенная организация коллагена. Метиленовый синий восстанавливал химические показатели NAD и ATP и улучшал маркеры матрикса в препаратах крысиных тканей, эксплантатах человека и клетках.
Затем последовали два вмешательства. При блокаде комплекса I ротеноном краситель по-прежнему защищал химические показатели NAD+ и показатели, связанные с ATP, но не снижал окислительную нагрузку, не восстанавливал баланс коллагена и не сохранял жизнеспособность. При подавлении экспрессии AIF, когда аппарат комплекса I был недостаточно сформирован, а не фармакологически заблокирован, краситель обеспечивал широкое восстановление: баланса NAD, окислительного стресса, мембранного потенциала и маркеров коллагена. Вывод точен. Улучшение показателя NAD возможно даже при блокаде комплекса I, но восстановление ткани в этом препарате зависело от работоспособного пути комплекса I. Изменение соотношения в этой истории необходимо, но недостаточно; этот вопрос подробнее раскрыт в исследовании редокс-состояния сухожилия.
Как читать следующее утверждение о редокс-состоянии
Три проверки позволяют избежать большинства ошибок интерпретации. Во-первых, спросите, к какому компартменту относится соотношение и какая индикаторная пара позволила его получить. Результат по цитозольному соотношению лактата к пирувату ничего напрямую не говорит о митохондриальном матриксе. Во-вторых, спросите, сообщает ли работа о сдвиге соотношения, увеличении общего пула или восстановлении ATP, и рассматривайте каждое как отдельный результат. В-третьих, спросите, что осталось нарушенным: неустранённое накопление жира, неустранённый дефект комплекса I или неустранённый дефицит ATP встречаются в этих работах рядом с реальным улучшением редокс-состояния.
Ничто из этого не является руководством по дозированию. Все пять исследований выполнены на животных, клетках или тканевых препаратах с контролируемыми повреждающими воздействиями: жидкими этанольными диетами, стрептозотоциновым диабетом, генетическими дефектами комплекса I, ротеноном, перекисью, коллагеназой. Концентрации в культуральных чашках нельзя напрямую пересчитать в пероральные дозы, и ни один человек в этих работах не принимал метиленовый синий для редокс-баланса. Общий вывод для редокс-фармакологии и дозирования уже и полезнее любого протокола: метиленовый синий окисляет NADH и изменяет измеряемое соотношение, сиртуины в некоторых тканях преобразуют этот сдвиг в деацетилирование и метаболическое перепрограммирование, а то, последует ли за этим тканевый эффект, зависит от аппарата, который краситель не способен заменить.