
Статья
Метиленовый синий как антиоксидант и прооксидант: что меняет результат?
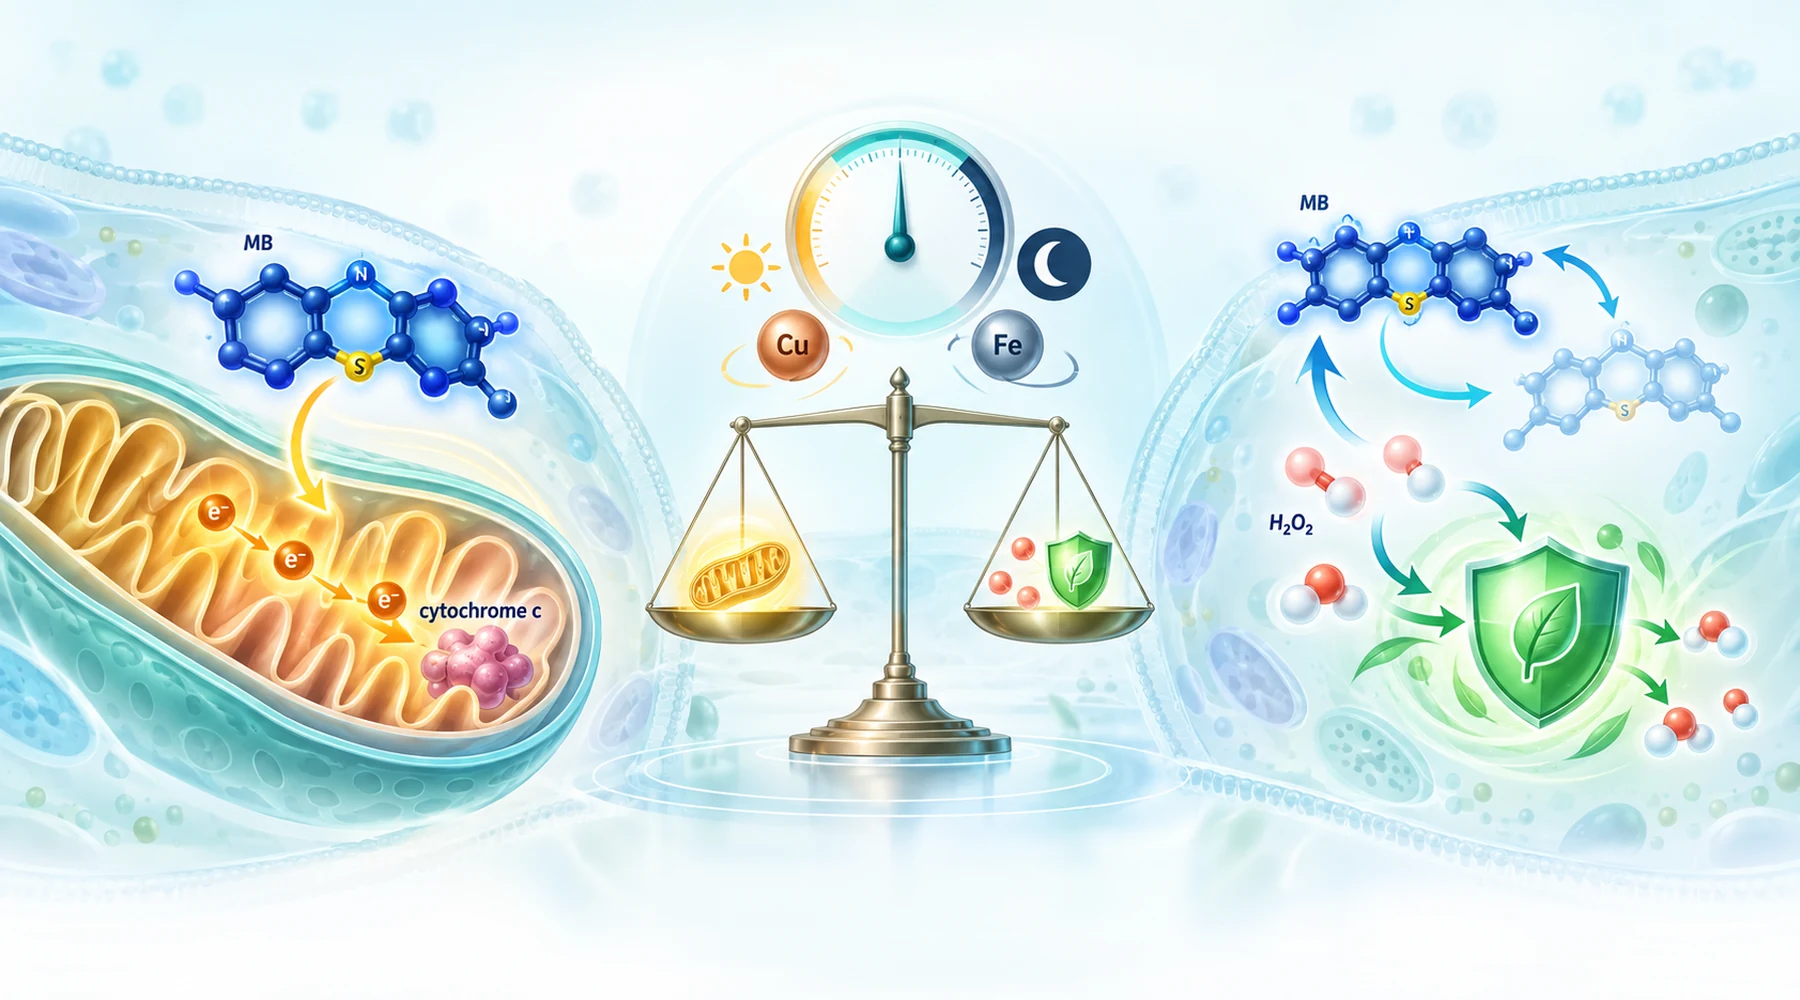
Представьте, что две лаборатории исследуют один и тот же синий краситель и получают противоположные результаты. В первом случае изолированные митохондрии мозга лучше потребляют кислород и производят больше АТФ. Во втором тот же препарат выделяет значительно больше перекиси водорода. Оба отчёта верны. Они описывают один и тот же цикл с двух сторон, а путаница начинается, когда читатели воспринимают одну сторону как всю картину.
Ошибка заключается в вопросе, какая характеристика подходит молекуле. Метиленовый синий является переносчиком электронов, как показывает карта его клеточных биологических мишеней в более широком контексте. Окисленная форма красителя принимает электроны и превращается в бесцветный лейкометиленовый синий (leucoMB). LeucoMB передаёт эти электроны дальше и снова становится синим. То, что вы наблюдаете, зависит от того, кто отдаёт электроны, кто их принимает и может ли система устранить образовавшуюся по пути перекись водорода. Вопрос никогда не заключается только в том, является ли краситель антиоксидантом. Важно, что условия позволяют этому переносчику делать.
Цикл, создающий обе стороны
В темноте основной цикл короткий. NADH, NADPH или переносчики дыхательной цепи восстанавливают краситель. Восстановленный краситель затем имеет несколько возможных путей. Он может передавать электроны цитохрому c и поддерживать поток вокруг повреждённого комплекса, поэтому дыхание и мембранный потенциал частично восстанавливаются при блокировке комплекса I или III. Или он может напрямую передавать электроны кислороду, что восстанавливает синюю форму и создаёт перекись водорода. Поскольку краситель регенерируется, небольшое количество может повторять этот цикл много раз, постоянно расходуя восстановительные эквиваленты и одновременно создавая перекись.
Две дополнительные ветви полностью меняют химию. Свободная медь или железо превращают эту диффундирующую перекись в гораздо более разрушительные локальные окислители через реакции типа Фентона. Красный свет открывает отдельную фотохимическую ветвь, в которой возбуждённый краситель передаёт энергию кислороду и создаёт синглетный кислород — вид, подробно рассмотренный в объяснении фотохимии I и II типа. Тёмное окислительно-восстановительное циклирование, усиленное металлами повреждение и фотодинамическое повреждение — это три разных механизма, которые случайно имеют одну исходную молекулу.
Матрица условий и результатов
Таблица ниже является основным активом. Каждая строка показывает одну переменную, направление её влияния и эксперимент, на котором основан вывод. Положительное означает защитный эффект или улучшение показателя. Неблагоприятное означает больше окислителей, большее истощение или больше повреждений.
| Условие | Направление результата | Что показал эксперимент |
|---|---|---|
| Низкая концентрация, 0.1 до 1 uM, изолированные митохондрии | Положительная биоэнергетика плюс больше перекиси | 0.1 uM улучшала потребление кислорода в здоровых и диабетических митохондриях сердца крыс; 100 nM до 1 uM частично восстанавливали АТФ, мембранный потенциал и поглощение кальция в заблокированных митохондриях мозга, при этом выделение перекиси увеличивалось во всех условиях |
| Более высокая концентрация, выше 5 uM, клетки с дефицитом глюкозы | Неблагоприятный окислительный сигнал | Эндотелиальные клетки окисляли общий ROS-зонд и теряли восстановленный глутатион выше 5 uM при отсутствии глюкозы; добавление глюкозы предотвращало оба эффекта |
| Субстраты комплекса I (глутамат плюс малат) | Больше перекиси | Исследования митохондрий мозга и сердца обнаружили повышенное выделение перекиси с субстратами, связанными с NADH |
| Сукцинат плюс ротенон, митохондрии сердца, 0.1 uM | Меньше перекиси в этом протоколе | Единственный явно антиоксидантный показатель перекиси в наборе; следует учитывать, что протокол включал ротенон и другую ткань, поэтому одного субстрата недостаточно для объяснения результата |
| Красный свет, 20 uM плюс 630 nm | Неблагоприятное повреждение ДНК | При 20 uM в темноте не было значительных повреждений митохондриальной ДНК; та же концентрация с красным светом повреждала каждый проверенный фрагмент |
| Очень высокая тёмная концентрация, 100 uM | Неблагоприятное избирательное повреждение ДНК | Избирательные повреждения митохондриальной ДНК в богатых пуринами последовательностях, резкий переход от наномолярного сигнала перекиси |
| Медь или железо плюс NADH, бесклеточная ДНК | Неблагоприятные окислительные повреждения | Медь направляла повреждение на участок p53; железо EDTA вызывало широкое повреждение; каталаза и хелаторы металлов блокировали соответствующие пути; увеличивалось количество окисленного гуанина |
| Наличие глюкозы, интактные клетки | Защитная буферизация несмотря на более быстрое циклирование | Глюкоза усиливала восстановление красителя, но снижала общий стресс, что соответствует обеспечению NADPH пентозофосфатным путём для восстановления антиоксидантов |
| Клетки с добавлением аскорбата | Смешанный результат: расход аскорбата, буферизация сигнала зонда | Краситель постепенно окислял внутриклеточный аскорбат даже при наличии глюкозы, одновременно частично подавляя окисление зонда; запас защиты оплачивал процесс |
| Животные после предварительной обработки ротеноном, краситель введён первым | Положительный тканевый результат | Предварительная обработка красителем уменьшала индуцированные ротеноном повреждения митохондриальной ДНК в среднем мозге мышей, несмотря на повышение перекиси в изолированных митохондриях |
Смысл всей таблицы именно в этом. Производство перекиси и биологическая защита — отдельные оси. Воздействие может иметь неблагоприятный показатель по первой оси и положительный по второй одновременно.
Почему одна и та же доза даёт разные ответы
Концентрация определяет способность к переносу, а не конечный результат. Выделение перекиси митохондриями мозга заметно возрастало начиная с 50 nM в работе с интактными митохондриями мозга, тогда как выраженное повреждение митохондриальной ДНК требовало 100 uM в темноте. Это примерно двухтысячекратный разрыв между первым сигналом и генотоксичностью, но это не является запасом безопасности. Конечные точки, компартменты и время воздействия различаются, поэтому числа обозначают разные явления, а не точки одной кривой. Обсуждение дозовой зависимости помещает этот разрыв между низким сигналом и высоким повреждением в более широкий контекст гормезиса.
Субстрат определяет, где входят электроны. Топливо, связанное с NADH, даёт красителю много восстановительных эквивалентов для полезного обходного пути и неэффективной реакции с кислородом. Часто цитируемое утверждение, что сукцинат делает краситель антиоксидантом, а глутамат — прооксидантом, чрезмерно упрощает данные, поскольку условие с перекисью в исследовании сердца также содержало ротенон и использовало другую ткань и дозу, чем работа с мозгом, где было обнаружено повышение перекиси при каждом субстрате и состоянии дыхания.
Свет меняет механизм, а не только его силу. Самый чистый контраст в наборе — 20 uM в темноте без заметного воздействия на фрагменты митохондриальной ДНК и 20 uM под красным светом с повреждением всех из них. Сравнивать освещённый эксперимент с тёмным означает сравнивать фотохимию с окислительно-восстановительным циклированием.
Металлы превращают окислитель. Без металлов тёмный цикл красителя создаёт перекись — диффундирующую молекулу, которую клетки также используют как сигнал. При наличии доступной меди или железа восстановленный NADH краситель поддерживает восстановление металлов, а восстановленный металл активирует перекись в гидроксильные или медь-перекисные виды рядом с ДНК. Именно так бесклеточная работа с NADH и ионами металлов показала избирательные и широкие повреждения ДНК из одного и того же исходного красителя. Обработка металлов в конкретном компартменте, а не только сам краситель, определяет значимость этой ветви.
Состояние топлива определяет, может ли клетка оплатить этот процесс. В эндотелиальных клетках, подвергшихся воздействию красителя 2–20 uM, удаление глюкозы выявляло окислительную стоимость процесса, а наличие глюкозы устраняло её, хотя глюкоза также ускоряла восстановление красителя. Более быстрое циклирование при обеспеченных защитных ресурсах лучше, чем медленное циклирование при пустых запасах защиты. Любое утверждение об окислителях без учёта состояния глюкозы или NADPH является неполным.
Ткань определяет оборудование системы. Эндотелиальные клетки восстанавливают NADPH через метаболизм глюкозы и имеют цитозольные антиоксидантные запасы. Изолированные митохондрии этого не имеют. Очищенная ДНК не имеет даже механизмов восстановления. Результат в одном препарате мало что предсказывает о других, поэтому будущая работа о тканеспецифических ответах должна сохранять эти системы раздельными.
Прямое измерение — это не последующая защита
Многие описания объединяют два уровня, которые эксперименты разделяют. Один уровень спрашивает, сколько окислителя появилось. Другой — как клетка на это ответила.
Анализы перекиси типа Amplex ближе всего к первому уровню, и даже они показывают чистый поток, то есть образование минус разрушение минус экспорт. Исследование митохондрий мозга показало движение обеих сторон: образовывалось больше перекиси и замедлялось удаление добавленной порции перекиси. Дальше по цепочке находятся окисление глутатиона, расход аскорбата, окисленный гуанин и повреждения ДНК, блокирующие полимеразу. Каждый этап добавляет биологические процессы между окислителем и измеряемым показателем.
Антиоксидантные ферменты, управляемые Nrf2, и биогенез митохондрий находятся на втором уровне. Это адаптивные программы, которые может запускать умеренный импульс перекиси, и авторы исследования защиты митохондрий мозга предлагают именно такой механизм умеренного стрессового сигнала, отмечая, что причинная цепочка через Nrf2 основана на предыдущих работах, а не на их полной собственной демонстрации. Защита, возникающая через несколько часов благодаря новым белкам, не означает, что исходная химия была антиоксидантной. Это означает, что небольшой прооксидантный сигнал приобрёл большую защиту. Ограничения анализа и различия препаратов подробно рассматриваются в руководстве по чтению исследований метиленового синего.
Почему анализы противоречат друг другу
Общий зонд, такой как дигидрофлуоресцеин, показывает широкое окисление зонда, а не концентрацию перекиси. Он зависит от пероксидазной и гемовой химии и может не заметить повышение перекиси, которое обнаруживает калиброванный анализ Amplex. Исследование митохондрий мозга показало значительно больше перекиси без соответствующего сигнала супероксида, что предупреждает против использования любого отдельного утверждения об антиоксидантном действии красителя. Оптическое перекрытие является важным вопросом контроля, поскольку краситель поглощает видимый свет около распространённых диапазонов возбуждения и эмиссии, но тщательное исследование проводило калибровку по известной перекиси, уменьшало воздействие возбуждения с небольшим изменением сигнала и подтверждало более медленное удаление перекиси отдельным электродом. Интерференция — это контроль, который нужно выполнить, а не автоматическое отрицание результата.
Результат с кальцием показывает ту же необходимость точности. Острый краситель не изменял общий уровень кальция до перехода проницаемости в исследовании сердца, однако улучшал скорость поглощения кальция в заблокированных митохондриях мозга в исследовании митохондрий сердца, ориентированном на диабет. Разные конечные точки, разные системы — противоречия нет.
Проверочный список перед принятием вывода
Рассматривайте любой вывод об антиоксидантном или прооксидантном действии как отчёт о системе и задавайте пять вопросов. При какой концентрации и в каком компартменте. С каким донором электронов и каким конкурирующим акцептором. Был ли свет или темнота, какая длина волны и доза. Какие металлы были доступны и какие запасы топлива и антиоксидантов обеспечены. И какой анализ использовался: измерялся поток окислителей, повреждение или адаптивный ответ. Измените любой один ответ, и одна и та же молекула может переместиться по матрице от защитного действия к повреждающему без какого-либо парадокса.