
Articol
Albastrul de metilen și oxidul nitric: NOS, cGMP și semnalizarea vasculară
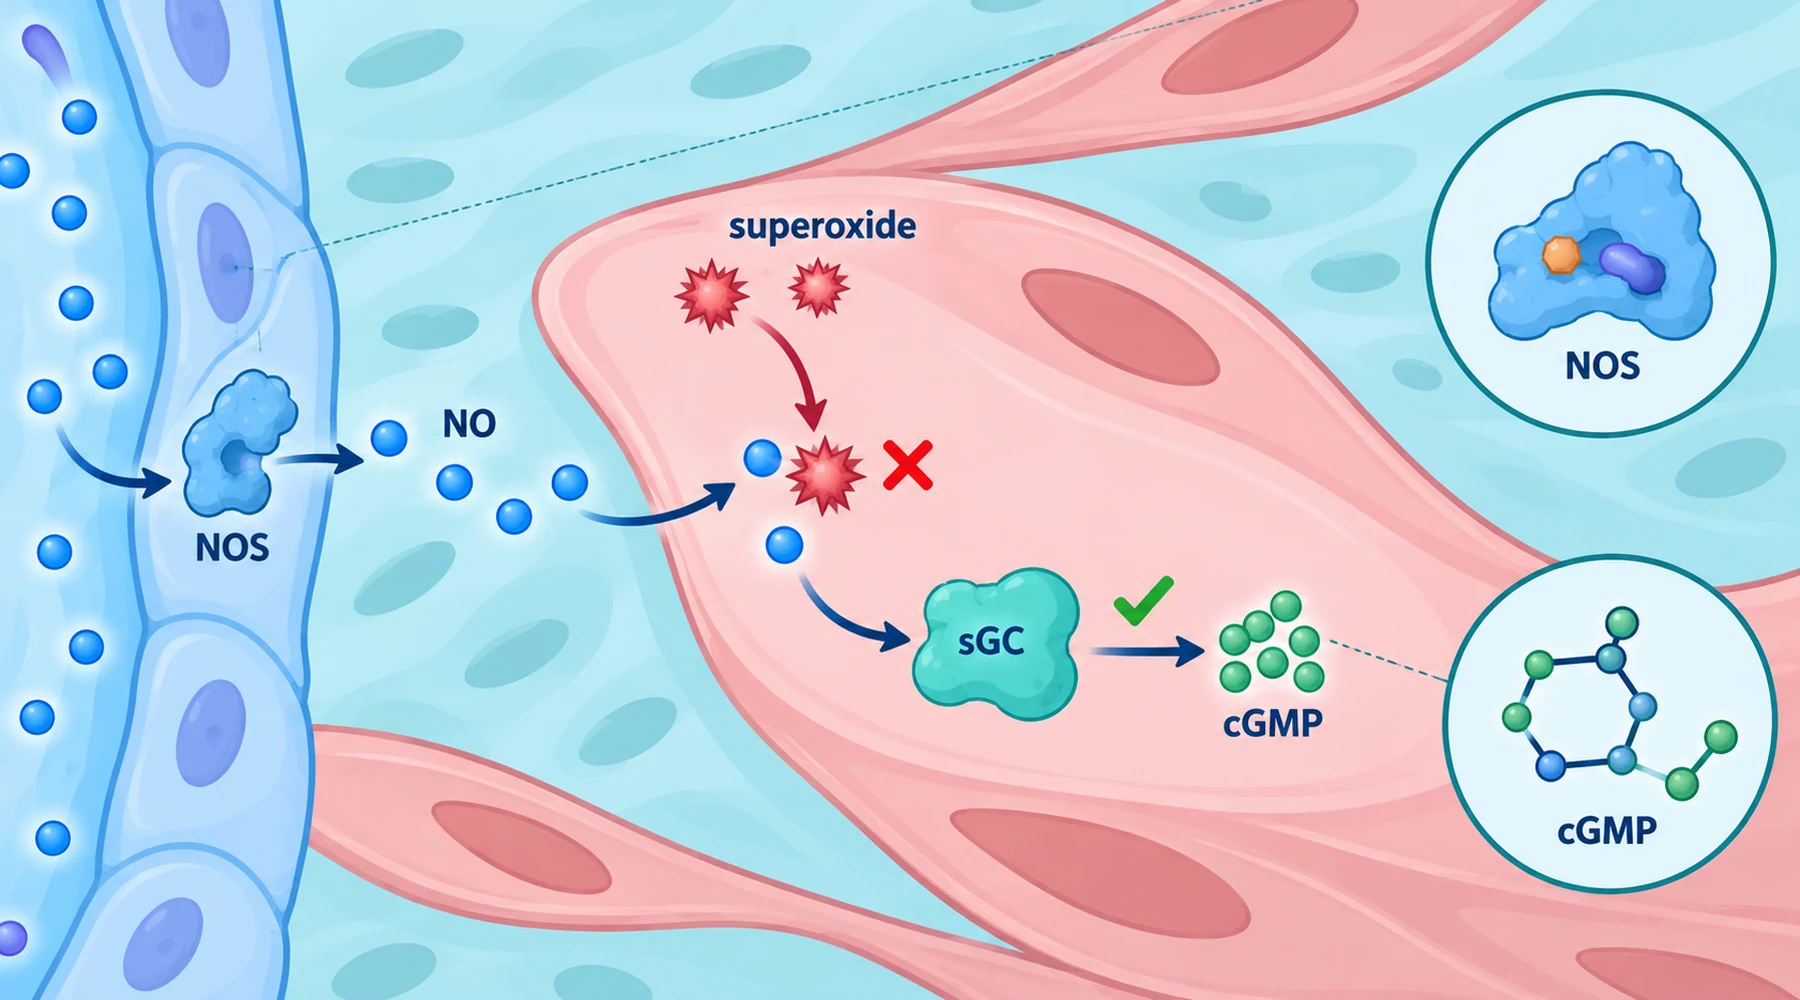
Întrebarea pare simplă: albastrul de metilen inhibă oxidul nitric? În laborator, răspunsul se împarte în patru întrebări distincte, fiecare cu un test experimental diferit. Confundarea lor este principalul motiv pentru care textele despre albastrul de metilen și oxidul nitric par sigure pe ele, dar rămân vagi.
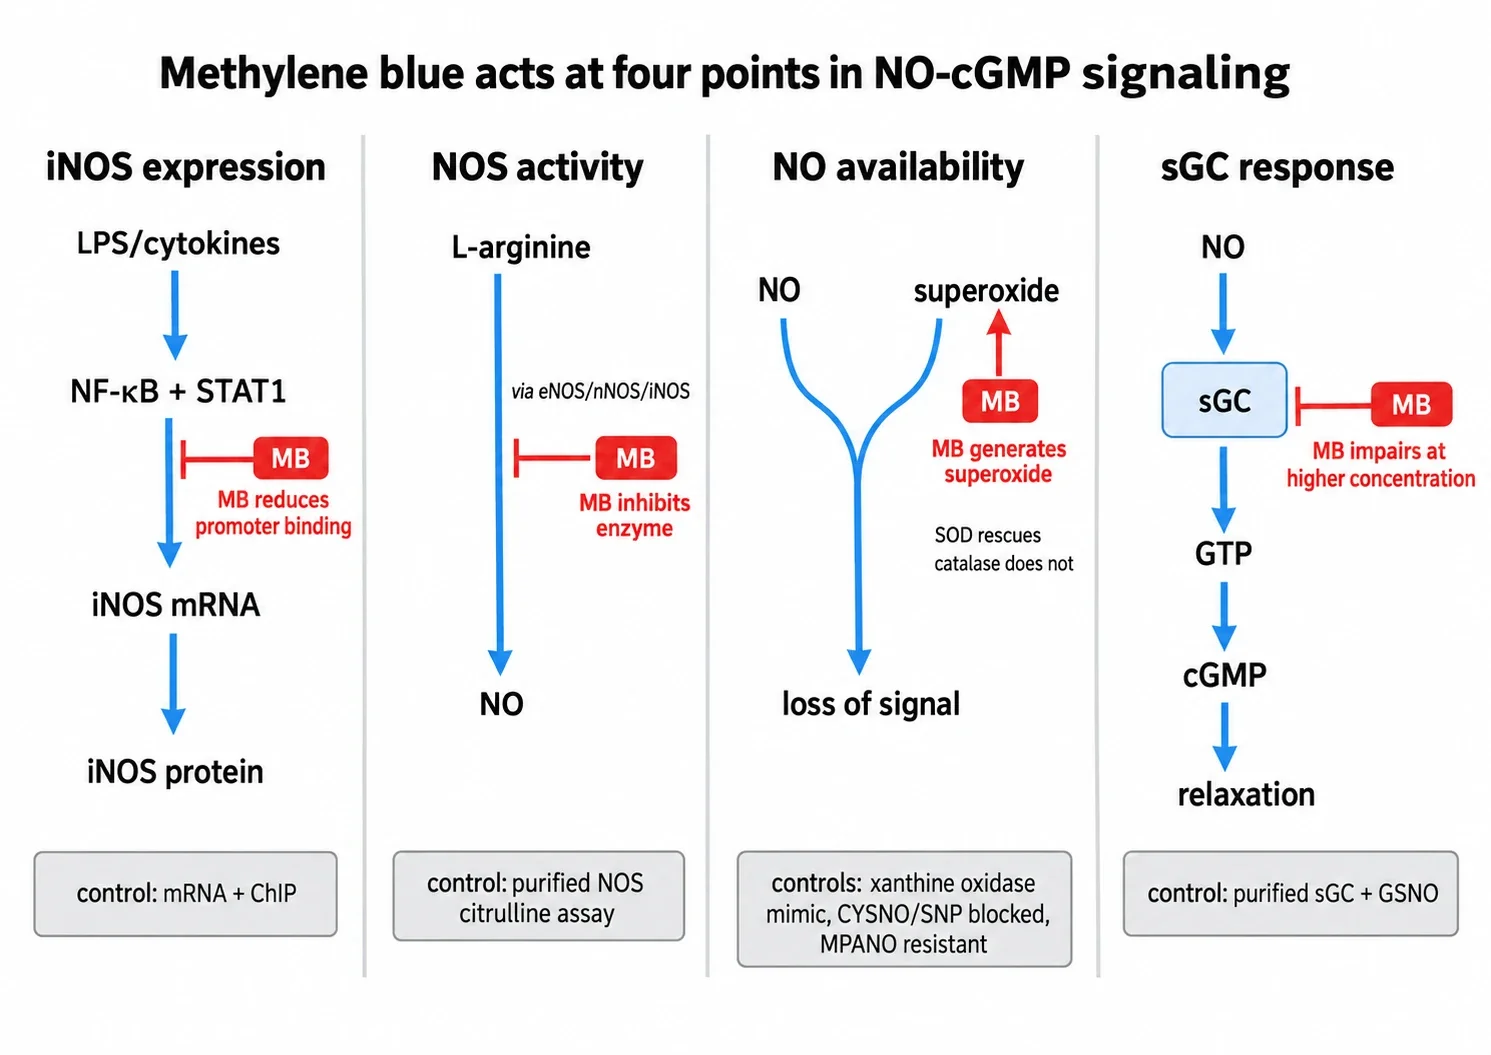
Imaginați-vă semnalul oxidului nitric ca pe un lanț cu patru verigi. O genă este transcrisă pentru a produce sintaza oxidului nitric. Enzima transformă arginina în oxid nitric. Gazul difuzează până la ținta sa înainte de a reacționa cu altceva. Guanilat ciclaza solubilă îl detectează și produce GMP ciclic. Pentru albastrul de metilen au fost publicate efecte asupra fiecărei verigi, dar dovezile provin din preparate diferite, concentrații diferite și izoforme diferite. Un rezultat la o verigă nu dovedește o acțiune la alta.
Lanțul canonic, explicat simplu
În peretele unui vas de sânge, secvența obișnuită se desfășoară astfel. Un stimul acționează asupra unei celule endoteliale. Sintaza endotelială a oxidului nitric, numită eNOS sau NOS3, produce un mic puls de oxid nitric. Gazul difuzează în celula musculară netedă vecină, se leagă de hemul cu fier în stare redusă al guanilat ciclazei solubile și accelerează conversia GTP în GMP ciclic. GMP ciclic activează protein kinaza G, modul de gestionare a calciului se schimbă, iar mușchiul se relaxează.
Există un al doilea lanț care merită păstrat separat. În timpul unei infecții sau al expunerii la citokine, celulele transcriu o enzimă diferită, sintaza inductibilă a oxidului nitric sau iNOS, numită și NOS2. Aceasta produce fluxuri de oxid nitric mai mari și mai persistente decât eNOS. O a treia izoformă, NOS neuronală sau nNOS, aparține unui alt context. Când un articol menționează sintaza oxidului nitric fără a preciza izoforma, opriți-vă și verificați care a fost măsurată. Prezentarea generală a modului în care albastrul de metilen transferă electroni subliniază același aspect pentru țintele redox în general: sistemul de transfer nu face nimic de unul singur, iar partenerul de la fiecare capăt determină rezultatul.
GMP ciclic măsurat este, de asemenea, un indicator integrat, nu o măsurare directă a activității enzimatice. Nivelul său reflectă sinteza prin ciclază minus degradarea prin fosfodiesteraze, în special PDE5 în musculatura netedă vasculară. Prin urmare, o scădere a GMP ciclic înseamnă că mai puțin semnal a ajuns la detector. Ea nu identifică, de una singură, veriga care a cedat.
Veriga 1: se produce mai puțină enzimă iNOS
În macrofage de șoarece stimulate cu lipopolizaharid bacterian, interferon gamma sau ambele, albastrul de metilen a împiedicat creșterea așteptată a proteinei iNOS și a suprimat puternic ARN-ul mesager iNOS în experimentele privind transcripția în macrofage. Partea relevantă este ceea ce nu s-a schimbat. Degradarea inhibitorului I kappa B alfa, fosforilarea NF kappa B și STAT1 și deplasarea acestor factori în nucleu au rămas în mare parte intacte. Ceea ce a scăzut a fost legarea lor de ADN, confirmată prin imunoprecipitarea cromatinei, care a arătat o ocupare redusă a promotorului iNOS.
Acesta este un efect de reglare genică în amonte de abundența enzimei, nu o blocare acută a unei enzime existente. El ține de semnalizarea inflamatorie, în care factorii de transcripție trebuie să se lege de un promotor înainte să apară proteina. Nu spune nimic direct despre eNOS constitutivă dintr-un vas în repaus și ar trebui descris în acești termeni.
Veriga 2: enzima NOS existentă funcționează mai lent
Un studiu pe șobolani a testat un alt nivel. Șobolani masculi conștienți au primit lipopolizaharid intravenos, apoi, după trei ore, au primit fie soluție salină, fie albastru de metilen la 3 mg per kg intravenos, iar activitatea sintazei oxidului nitric din hipotalamusul mediobazal a fost măsurată prin conversia argininei marcate în citrulină în studiul activității NOS hipotalamice. Stresul împreună cu soluția salină, fără lipopolizaharid, au indus o anumită activitate independentă de calciu, iar lipopolizaharidul a crescut-o la aproximativ zece ori nivelul de control. Albastrul de metilen a eliminat ambele componente induse. Activitatea constitutivă dependentă de calciu nu s-a schimbat în acel țesut, la acea doză și la acel moment de evaluare.
Citiți acel rezultat exact așa cum este formulat: activitatea măsurată de tip iNOS a fost suprimată în acele condiții. Nu este o măsurare a expresiei genice și nu dovedește o selectivitate permanentă pentru iNOS față de eNOS sau nNOS. Experimentele cu enzime purificate întăresc această precauție. În teste directe cu sintaza oxidului nitric purificată, albastrul de metilen a blocat complet formarea citrulinei la 30 micromolar, cu o concentrație de inhibare la jumătate de aproximativ 5.3 micromolar fără superoxid dismutază și 9.2 micromolar în prezența acesteia, după cum s-a raportat în comparația dintre NOS purificată și guanilat ciclază. Un studiu separat cu nNOS purificată a indicat implicarea oxidării hemului legat de enzimă. Lecția practică este că inhibarea directă a NOS este reală în sisteme izolate, dar rezultatul din hipotalamus nu poate fi extins la o afirmație generală conform căreia albastrul de metilen lasă neafectate toate formele constitutive de NOS, pretutindeni.
Veriga 3: oxidul nitric se pierde înainte să ajungă la țintă
Cea mai clară demonstrație că altceva decât blocarea enzimei poate explica o scădere a GMP ciclic provine din celule musculare netede ale arterei pulmonare de iepure cultivate în laborator. Protocolul a ocolit complet NOS endogenă prin adăugarea directă a unor donori de oxid nitric, apoi a verificat dacă albastrul de metilen continua să suprime răspunsul GMP ciclic în studiul superoxidului în musculatura netedă vasculară.
Au fost testați trei donori la concentrații de la 1 la 100 micromolar: S-nitrozo-L-cisteină, nitroprusiat de sodiu și un analog dezaminat stabil numit MPANO. Toți au crescut GMP ciclic la valori de aproximativ 1.5 până la 12 ori mai mari. Albastrul de metilen la 10 micromolar a inhibat răspunsurile la primii doi cu 51 până la 100 la sută și a lăsat neschimbat răspunsul la MPANO. Dacă albastrul de metilen ar bloca pur și simplu situsul catalitic al ciclazei, această selectivitate între donori ar fi greu de explicat, deoarece toți trei converg către aceeași enzimă din aval.
Trei controale au stabilit apoi că mecanismul implică superoxidul. În primul rând, generarea superoxidului extracelular cu xantină și xantin oxidază a reprodus același tipar: răspunsurile la CYSNO și nitroprusiat au fost blocate, iar cel la MPANO a rămas neafectat. În al doilea rând, albastrul de metilen a provocat producerea de superoxid de către celulele musculare netede într-un mod dependent de doză și de timp, măsurată prin reducerea citocromului c. În al treilea rând, superoxid dismutaza a prevenit complet inhibarea, în timp ce catalaza nu a făcut-o, ceea ce indică superoxidul, nu peroxidul de hidrogen, drept specia direct responsabilă în acel preparat.
Merită descrisă varianta experimentului în cocultură, deoarece localizează efectul în spațiu. Celule endoteliale aflate pe lamele au fost menținute pentru scurt timp în cocultură cu celule musculare netede, astfel încât factorul endotelial eliberat bazal a crescut GMP ciclic din musculatura netedă de trei până la opt ori. Pretratarea oricăruia dintre compartimente cu albastru de metilen a redus acel semnal, iar superoxid dismutaza a contracarat parțial efectul pretratării endoteliale. Cu alte cuvinte, albastrul de metilen nu trebuie neapărat să acționeze în interiorul celulei musculare netede care detectează semnalul. Îl poate reduce prin eliminarea mesagerului în timpul tranzitului. Ghidul de interpretare a cercetărilor despre albastrul de metilen tratează acest lucru ca pe o regulă generală: precizați compartimentul în care a avut loc intervenția înainte de a numi o țintă moleculară.
Ar fi greșit să numim acest lucru inhibare a NOS. Donorii nu au avut nevoie de nicio etapă catalizată de sintază pentru a funcționa, și totuși semnalul a scăzut.
Veriga 4: detectorul însuși răspunde mai slab
Există efecte directe asupra guanilat ciclazei solubile, dar concentrațiile contează. În comparația cu enzime purificate citată mai sus, ciclaza stimulată de oxid nitric a avut nevoie de aproximativ 60 micromolar albastru de metilen pentru o inhibare la jumătate, față de aproximativ 5 până la 9 micromolar pentru inhibarea la jumătate a NOS, iar chiar și 1 millimolar a produs doar o blocare maximă parțială. Aceasta înseamnă o diferență de aproximativ șase până la unsprezece ori. Prin urmare, un experiment celular la concentrații micromolare mici, care reduce GMP ciclic, nu poate fi etichetat drept inhibare selectivă a ciclazei doar pe baza valorii GMP ciclic.
Un studiu redox ulterior a adăugat o a doua precauție: albastrul de metilen a dezactivat ciclaza activată de oxid nitric printr-un mecanism diferit de simpla oxidare cu aer a fierului din hem. Așadar, funcția detectorului poate fi afectată, dar mecanismul chimic nu este elucidat, iar diferența dintre concentrații înseamnă că efectele superoxidului și ale NOS trebuie excluse mai întâi la expuneri micromolare mici. Tot aici își are locul controlul fosfodiesterazelor. Dacă degradarea nu a fost măsurată sau blocată, acumularea redusă de GMP ciclic este compatibilă cu o sinteză mai mică, o degradare mai rapidă sau ambele.
De ce toate acestea nu se reduc la o singură afirmație despre tensiunea arterială
Fiecare verigă a fost stabilită într-un sistem diferit. Transcripția din macrofage nu este activitatea enzimatică din hipotalamus. Activitatea hipotalamică după lipopolizaharid nu este tonusul endotelial în repaus. Factorul endotelial eliberat bazal în cocultură nu este vasodilatația stimulată de un agonist. Celulele arteriale pulmonare cultivate în laborator, expuse la 10 micromolar albastru de metilen, nu reprezintă circulația umană. Reducerea tuturor acestor rezultate la o afirmație precum „albastrul de metilen crește tensiunea arterială prin blocarea oxidului nitric” elimină tocmai distincțiile pe care controalele au fost concepute să le păstreze.
Trei verificări mențin rigoarea explicației. În primul rând, precizați izoforma: eNOS pentru tonusul vascular în repaus, iNOS pentru fluxul inflamator indus, nNOS pentru contexte neuronale și unele contexte cu enzime purificate. În al doilea rând, precizați modul de furnizare a semnalului oxidului nitric: sinteză endogenă, eliberare endotelială bazală sau un donor specific, precum CYSNO, nitroprusiat ori MPANO, deoarece donorul stabil a rezistat albastrului de metilen, în timp ce cei labili nu. În al treilea rând, precizați concentrația și intervenția care a contracarat efectul: contracararea prin superoxid dismutază indică implicarea superoxidului, lipsa efectului catalazei constituie un argument împotriva implicării peroxidului de hidrogen în acel preparat, reproducerea efectului prin xantin oxidază arată că acest mecanism este suficient, iar testele cu enzime purificate separă efectele directe asupra catalizei de pierderile din timpul tranzitului.
Sinteza pe scurt este următoarea. Albastrul de metilen este mai bine descris ca un agent care perturbă în mai multe puncte semnalizarea de la oxid nitric la GMP ciclic decât ca un blocant selectiv al ciclazei. În funcție de preparat și concentrație, poate reduce legarea factorilor de transcripție la promotorul iNOS, poate inhiba direct enzimele NOS, poate scădea disponibilitatea oxidului nitric prin generarea de superoxid și poate afecta ciclaza activată de oxid nitric. Rolul semnalizării prin GMP ciclic în studiile vasculare și comparația donorilor de oxid nitric utilizați în teste celulare abordează fiecare câte una dintre aceste ramuri mai în detaliu, iar metodele folosite pentru separarea efectelor redox de efectele enzimatice explică de ce combinația dintre superoxid dismutază, catalază și un control cu donor stabil apare atât de des în această literatură.
O valoare mică a GMP ciclic după expunerea la albastru de metilen identifică un lanț întrerupt. Doar controalele arată care verigă a cedat.