
Artigo
Maior consumo de oxigénio significa mais ATP? Lições de estudos com azul de metileno
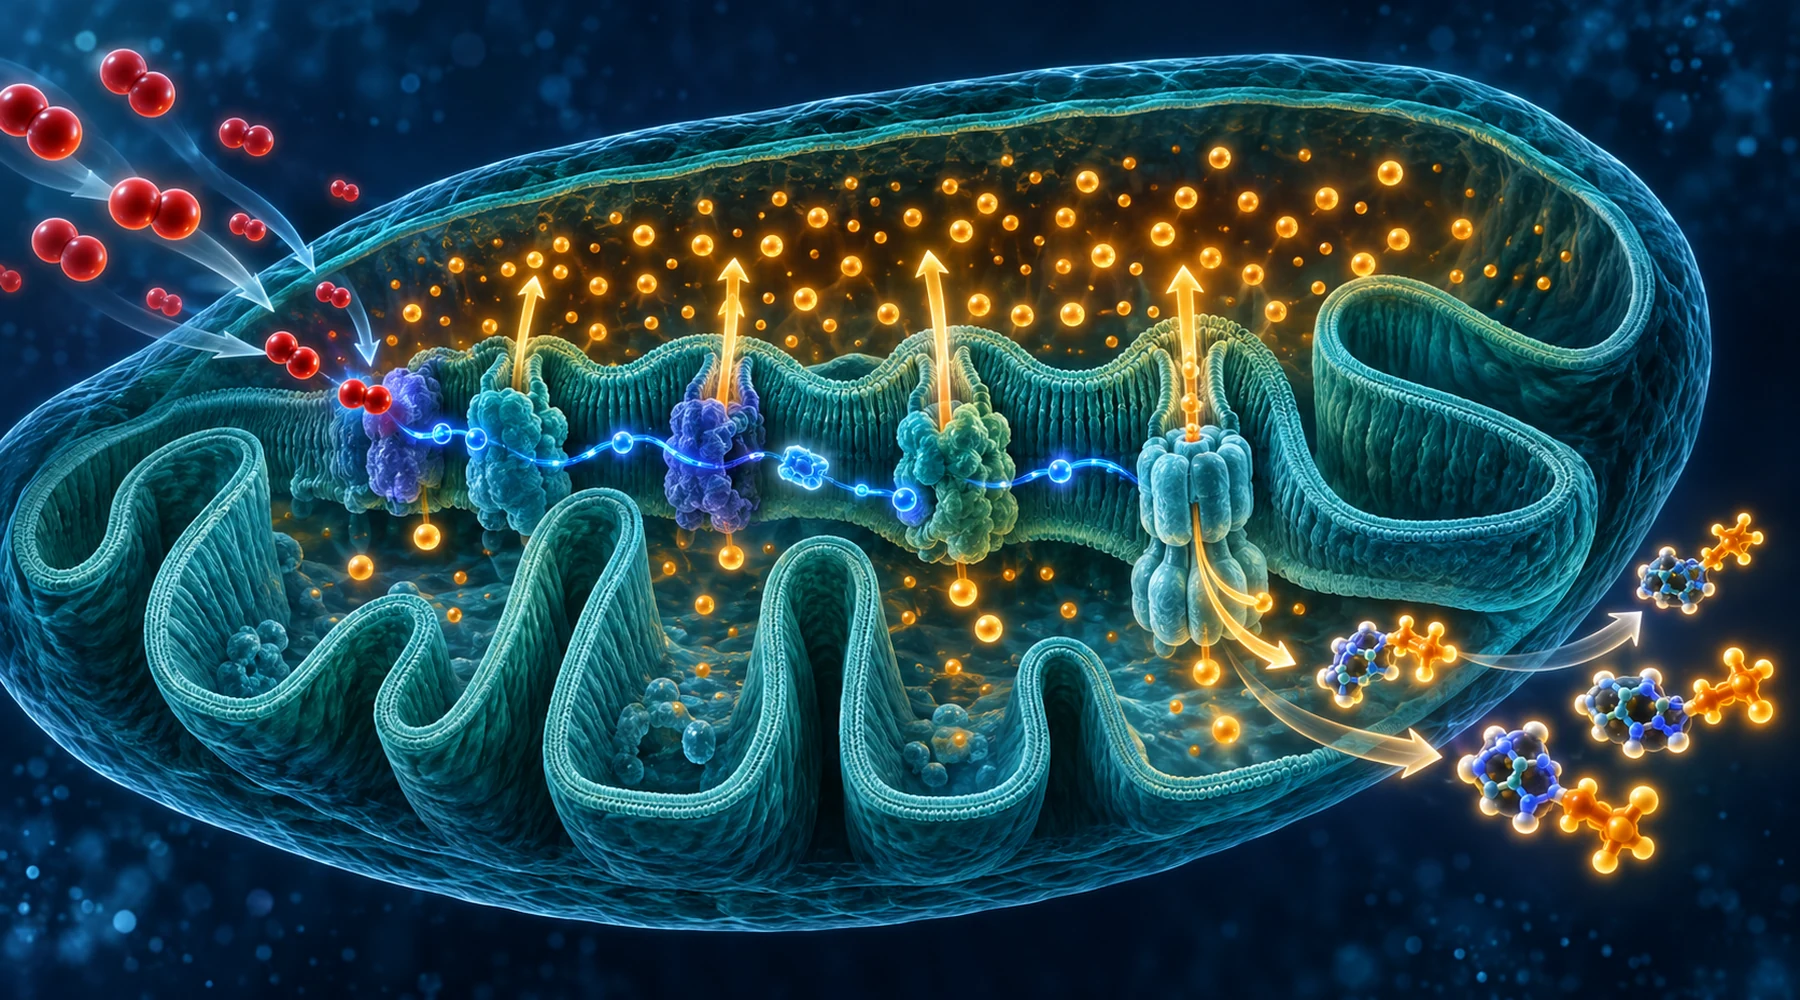
Um mitocôndrio isolado encontra-se numa câmara com combustível, mas sem ADP. Consome oxigénio lentamente. Adicione ADP e o consumo de oxigénio aumenta várias vezes. Aguarde até o ADP se esgotar e o consumo de oxigénio volta a diminuir. O combustível nunca mudou. Mudou apenas a necessidade de ATP.
Esta pequena sequência contém toda a distinção de que trata este artigo. O consumo de oxigénio mede a velocidade a que os eletrões fluem pela cadeia respiratória até ao oxigénio. A produção de ATP mede quanto desse fluxo é captado como energia utilizável. Os dois partilham uma etapa intermédia, o gradiente de protões através da membrana mitocondrial interna, e qualquer fator que altere o grau de acoplamento entre o gradiente e a síntese de ATP pode fazer com que os dois resultados evoluam em direções diferentes. O azul de metileno é particularmente útil para compreender isto porque já foi observado a fazer ambas as coisas: aumentar o consumo de oxigénio juntamente com o ATP em algumas preparações e aumentar o consumo de oxigénio enquanto o ATP se mantém estável ou diminui noutras.
Os leitores que pretendam primeiro uma visão mais ampla deste sistema de transferência podem começar por ver como o azul de metileno transporta eletrões através da cadeia respiratória, e os leitores que pretendam conhecer a terminologia das primeiras experiências com oxigénio podem ler o que as primeiras medições da respiração mostraram realmente.
Respiração, ATP e o gradiente entre ambos
Os eletrões provenientes de NADH e FADH2 entram na cadeia pelos complexos I e II, passam pelo complexo III para o citocromo c e depois pelo complexo IV até ao oxigénio. A energia libertada nos complexos I, III e IV bombeia protões para fora da matriz, para o espaço intermembranar. Essa separação de carga e acidez constitui a força protomotriz, e a sua componente elétrica, o potencial de membrana, é normalmente a componente dominante.
A ATP sintase permite que os protões regressem à matriz e utiliza a energia libertada para unir ADP e fosfato e formar ATP. Assim, a sequência é:
consumo de oxigénio, depois bombeamento de protões, depois gradiente, depois síntese de ATP.
A questão é que os protões podem regressar por outras vias. Qualquer regresso que contorne a ATP sintase é uma fuga de protões. A fuga obriga a cadeia a bombear novamente os mesmos protões para manter estável o potencial de membrana, o que consome mais oxigénio sem produzir mais ATP. Uma fuga suficientemente intensa provoca desacoplamento: o consumo de oxigénio aumenta enquanto o ATP se mantém estável ou diminui, e a energia desperdiçada é libertada sob a forma de calor.
Estado 3, estado 4 e o rácio de controlo respiratório
A terminologia clássica para este fenómeno vem de mitocôndrios isolados. O estado 3 corresponde à respiração com substrato e ADP presentes: a ATP sintase reduz o gradiente, o potencial de membrana diminui, a cadeia acelera para o reconstruir e o consumo de oxigénio é elevado porque está a ser produzido ATP. O estado 4 corresponde à respiração depois de o ADP se esgotar: a ATP sintase fica praticamente inativa, o gradiente aumenta, o elevado potencial de membrana dificulta o bombeamento adicional e o consumo de oxigénio diminui para o nível necessário para compensar a fuga.
O rácio de controlo respiratório, estado 3 dividido pelo estado 4, indica assim o grau de acoplamento da preparação. Um rácio elevado significa que o ADP controla fortemente a respiração. Um rácio em queda acompanhado por um estado 4 crescente significa que a fuga está a assumir maior importância. É através desta perspetiva que os resultados do azul de metileno apresentados abaixo fazem sentido.
Vale a pena reter um modelo mental. Um potencial de membrana elevado abranda a cadeia. Dissipar esse potencial acelera-a. A cadeia responde à dificuldade de bombear, não diretamente ao facto de estar ou não a ser produzido ATP.
Quando os resultados evoluem em conjunto
O exemplo mais claro de acoplamento vem de mitocôndrios cerebrais isolados de porquinho-da-índia com complexos respiratórios bloqueados. Com 100 nanomolar a 1 micromolar de azul de metileno, o consumo de oxigénio em repouso aumentou com glutamato mais malato, succinato ou glicerofosfato como combustível, enquanto a respiração estimulada por ADP permaneceu inalterada. Em mitocôndrios afetados por inibição do complexo I ou do complexo III, o corante aumentou modestamente a produção de ATP, restaurou o potencial de membrana e melhorou a captação de cálcio. A via proposta é um atalho: o corante aceita eletrões a montante do bloqueio e transfere-os para o citocromo c, contornando o complexo danificado.
Um segundo caso de acoplamento utiliza uma fonte de ATP completamente diferente. Em mitocôndrios cerebrais isolados com a ATP sintase inibida, o azul de metileno continuou a estimular a respiração em todos os substratos testados. Mas a síntese de ATP aumentou apenas com alfa-cetoglutarato e glutamato, os dois substratos que formam succinil CoA. Com a oligomicina a bloquear a ATP sintase, o ATP adicional resultou da fosforilação ao nível do substrato pela succinil CoA ligase no ciclo do ácido cítrico, e não da fosforilação oxidativa. O corante também restaurou o potencial de membrana quando o complexo I e a ATP sintase foram inibidos em simultâneo. Aqui, o consumo de oxigénio e o ATP evoluíram em conjunto, mas apenas quando o substrato permitia a segunda via de produção de ATP. Com succinato ou malato, a respiração aumentou sem ATP adicional. O mesmo corante, a mesma câmara, combustível diferente, resposta diferente.
Quando os resultados divergem
Os casos de divergência estão igualmente publicados e são igualmente elucidativos. Num estudo de 1997 com mitocôndrios hepáticos isolados de rato, o azul de metileno acelerou a respiração no estado 4 em mitocôndrios fortemente acoplados que respiravam succinato, fazendo diminuir o rácio de controlo respiratório. O efeito era visível a partir de 0.5 micromolar e forte a 5 micromolar, uma concentração próxima dos níveis plasmáticos após um bólus intravenoso de 100 milligram. A 5 micromolar, os mitocôndrios também incharam, embora o defeito de acoplamento tenha surgido primeiro em concentrações inferiores, o que sugere que a fuga precedeu o dano estrutural em vez de resultar dele. Em mitocôndrios desacoplados, o corante estimulou a respiração de forma saturável e dependente da concentração. O consumo de oxigénio aumentou em ambas as preparações. A síntese de ATP por oxigénio consumido não aumentou. É um exemplo clássico de desacoplamento e transporte de eletrões na mesma molécula.
A divergência mais marcante vem da retina. Em ratinhos deficientes em AIF e células fotorrecetoras tratadas com rotenona, o azul de metileno preservou a espessura da retina, os marcadores dos fotorrecetores e a estrutura mitocondrial, e reduziu o rácio entre NADH e NAD e atenuou vias de stress, incluindo a resposta a proteínas mal dobradas e a mitofagia. Fê-lo sem corrigir o défice de ATP. Proteção sem restabelecimento energético significa que o benefício ocorreu através do equilíbrio redox e da integridade mitocondrial, e não através de ATP adicional. Quem equiparasse a sobrevivência do tecido ao restabelecimento da produção de energia interpretaria esta experiência de forma completamente errada.
O trabalho com mitocôndrios cerebrais acrescenta uma coluna de custos ao mesmo balanço. As mesmas concentrações baixas que melhoraram a bioenergética também aumentaram a produção de peróxido de hidrogénio em todas as condições testadas e reduziram a velocidade da sua eliminação, medida com um ensaio Amplex calibrado em vez de um corante inespecífico. Mais ATP e mais oxidante surgiram em conjunto.
Uma lista prática para interpretar os resultados
Quatro perguntas permitem distinguir um resultado acoplado de um resultado desacoplado.
Primeiro, qual foi o parâmetro efetivamente medido. O consumo de oxigénio, por si só, não permite determinar o ATP. A síntese de ATP, o potencial de membrana e o rácio de controlo respiratório acrescentam, cada um, uma informação que o elétrodo de oxigénio não consegue mostrar. O guia para interpretar alegações de investigação sobre o azul de metileno explica em detalhe esta disciplina na avaliação dos parâmetros medidos.
Segundo, qual foi o substrato que alimentou os mitocôndrios. O resultado com succinil CoA mostra que a escolha do combustível pode determinar se a respiração adicional pode sequer transformar-se em ATP adicional.
Terceiro, qual foi a concentração utilizada. De nanomolar a baixo micromolar, o azul de metileno em mitocôndrios cerebrais produziu ganhos bioenergéticos modestos com um custo oxidante; meio micromolar ou mais em mitocôndrios hepáticos reduziu o acoplamento; 5 micromolar acrescentou inchaço. A concentração faz parte do mecanismo, não é um detalhe secundário.
Quarto, em que modelo foi obtido o resultado. Os mitocôndrios isolados revelam o funcionamento do sistema, mas células e tecidos intactos acrescentam transporte, redução para a forma incolor e vias concorrentes para os eletrões. O trabalho laboratorial sobre dosagem, incluindo a forma como a concentração e o protocolo moldam os efeitos do azul de metileno, constitui a ponte entre os valores medidos numa câmara e qualquer alegação relativa a uma pessoa.
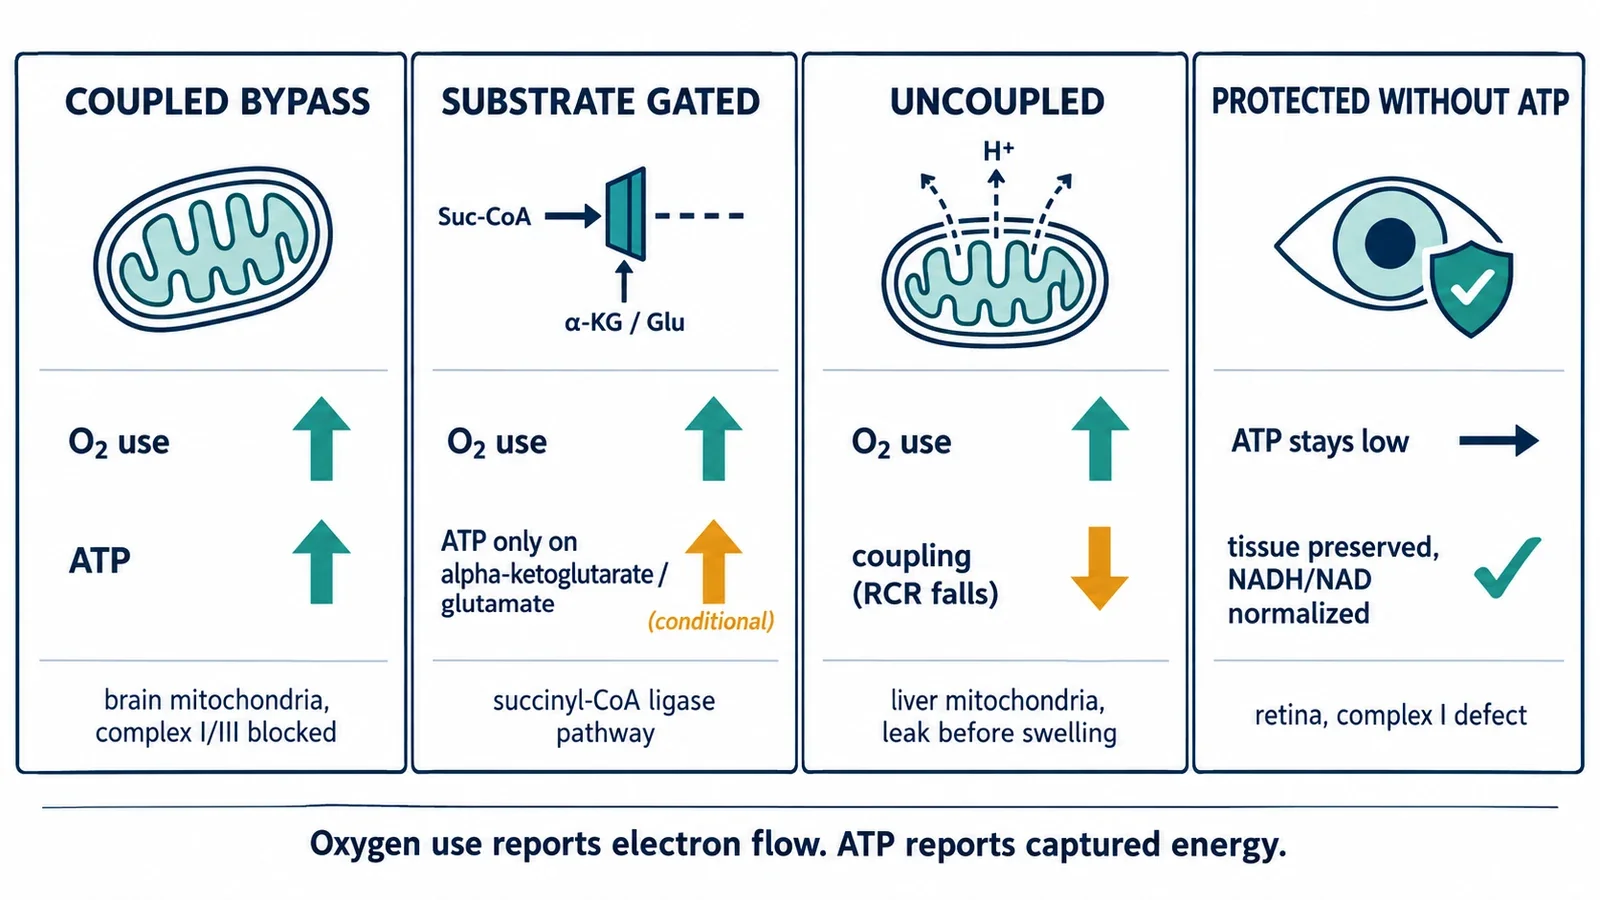
O consumo de oxigénio indica o fluxo de eletrões. O ATP indica quanto desse fluxo foi captado. O azul de metileno pode alterar qualquer um dos dois, e as experiências acima mostram as quatro combinações daí resultantes: ambos aumentam, a respiração aumenta apenas quando o substrato o permite, a respiração aumenta enquanto o acoplamento diminui e o tecido é preservado enquanto o ATP se mantém estável. O valor indicado pelo elétrodo de oxigénio é o início da interpretação, não o fim. :::