Artykuł
Błękit metylenowy a tendinopatia ścięgna Achillesa: co sprawdzono w badaniu z 2026 roku
Wyniki wyszukiwania dotyczące błękitu metylenowego i zapalenia ścięgien mieszają dwa różne twierdzenia. Pierwsze mówi, że błękit metylenowy pomaga ludziom z bólem ścięgien. Drugie — że błękit metylenowy zmienił procesy biochemiczne w ścięgnie w preparacie laboratoryjnym. W badaniu błękitu metylenowego w tendinopatii ścięgna Achillesa z 2026 roku sprawdzono tylko drugie twierdzenie. Żaden pacjent nie przyjmował błękitu metylenowego z powodu bólu ścięgna. To rozróżnienie stanowi podstawę całego poniższego omówienia.
Istotne pytanie jest węższe. W zmienionym chorobowo ścięgnie Achillesa występowało określone zaburzenie metaboliczne. Błękit metylenowy częściowo je skorygował u szczurów, w wyizolowanych fragmentach ludzkiego ścięgna i w hodowanych komórkach ścięgna. W jednym wariancie eksperymentu skorygował procesy biochemiczne, ale nie przywrócił prawidłowego stanu tkanki. Ten rozbieżny wynik jest sednem publikacji.
Trzy części badania, trzy różne twierdzenia
Badanie ma trzy części. Każda odpowiada na inne pytanie, dlatego nie należy przenosić wyników między nimi bez wyraźnego zaznaczenia.

Część dotycząca ludzi ma charakter obserwacyjny. Ścięgna pochodziły z amputacji (wykorzystano je jako tkankę porównawczą) oraz z zerwanych ścięgien Achillesa (wykorzystano je jako tkankę w późnym stadium choroby). Badacze ocenili ich biochemię i strukturę. Nie podawali tym pacjentom błękitu metylenowego.
Drugi eksperyment z ludzką tkanką obejmował interwencję, ale nadal odbywał się poza organizmem. Małe fragmenty ludzkiego ścięgna Achillesa utrzymywano przy życiu w naczyniu hodowlanym, uszkadzano utleniaczem, a następnie poddawano działaniu błękitu metylenowego. Sprawdza to, czy ludzka tkanka może zareagować w takich warunkach. Nie bada dystrybucji, eliminacji, regulacji w całym organizmie ani bólu. Ogólny problem z tym poziomem badań wyjaśniono w artykule jak czytać badania nad błękitem metylenowym.
Część dotycząca szczurów obejmuje interwencję w żywym organizmie. Kolagenaza wstrzyknięta do ścięgna Achillesa powodowała zaburzenie struktury macierzy, następnie podawano błękit metylenowy i oceniano chód, reakcje bólowe, biochemię oraz histologię. Uszkodzenie wywołane kolagenazą jest nagłym uszkodzeniem chemicznym. Choroba ścięgna Achillesa u ludzi zwykle rozwija się stopniowo pod wpływem obciążenia, wieku, krążenia i wcześniejszych urazów. Szczur jest więc modelem uszkodzenia i naprawy, a nie małym człowiekiem z urazem przeciążeniowym.
Część komórkowa bada mechanizm. Pierwotne tenocyty szczura uszkadzano za pomocą TBHP, nadtlenku wywołującego stres oksydacyjny, a następnie poddawano działaniu błękitu metylenowego w stężeniu około 1 mikromolowym. Dwie dodatkowe interwencje pozwoliły wyodrębnić elementy szlaku: rotenon blokował mitochondrialny kompleks I, a siRNA zmniejszało produkcję AIF. Właśnie te dwie interwencje są szczególnie interesującą częścią publikacji.
Jak wyglądało zmienione chorobowo ścięgno
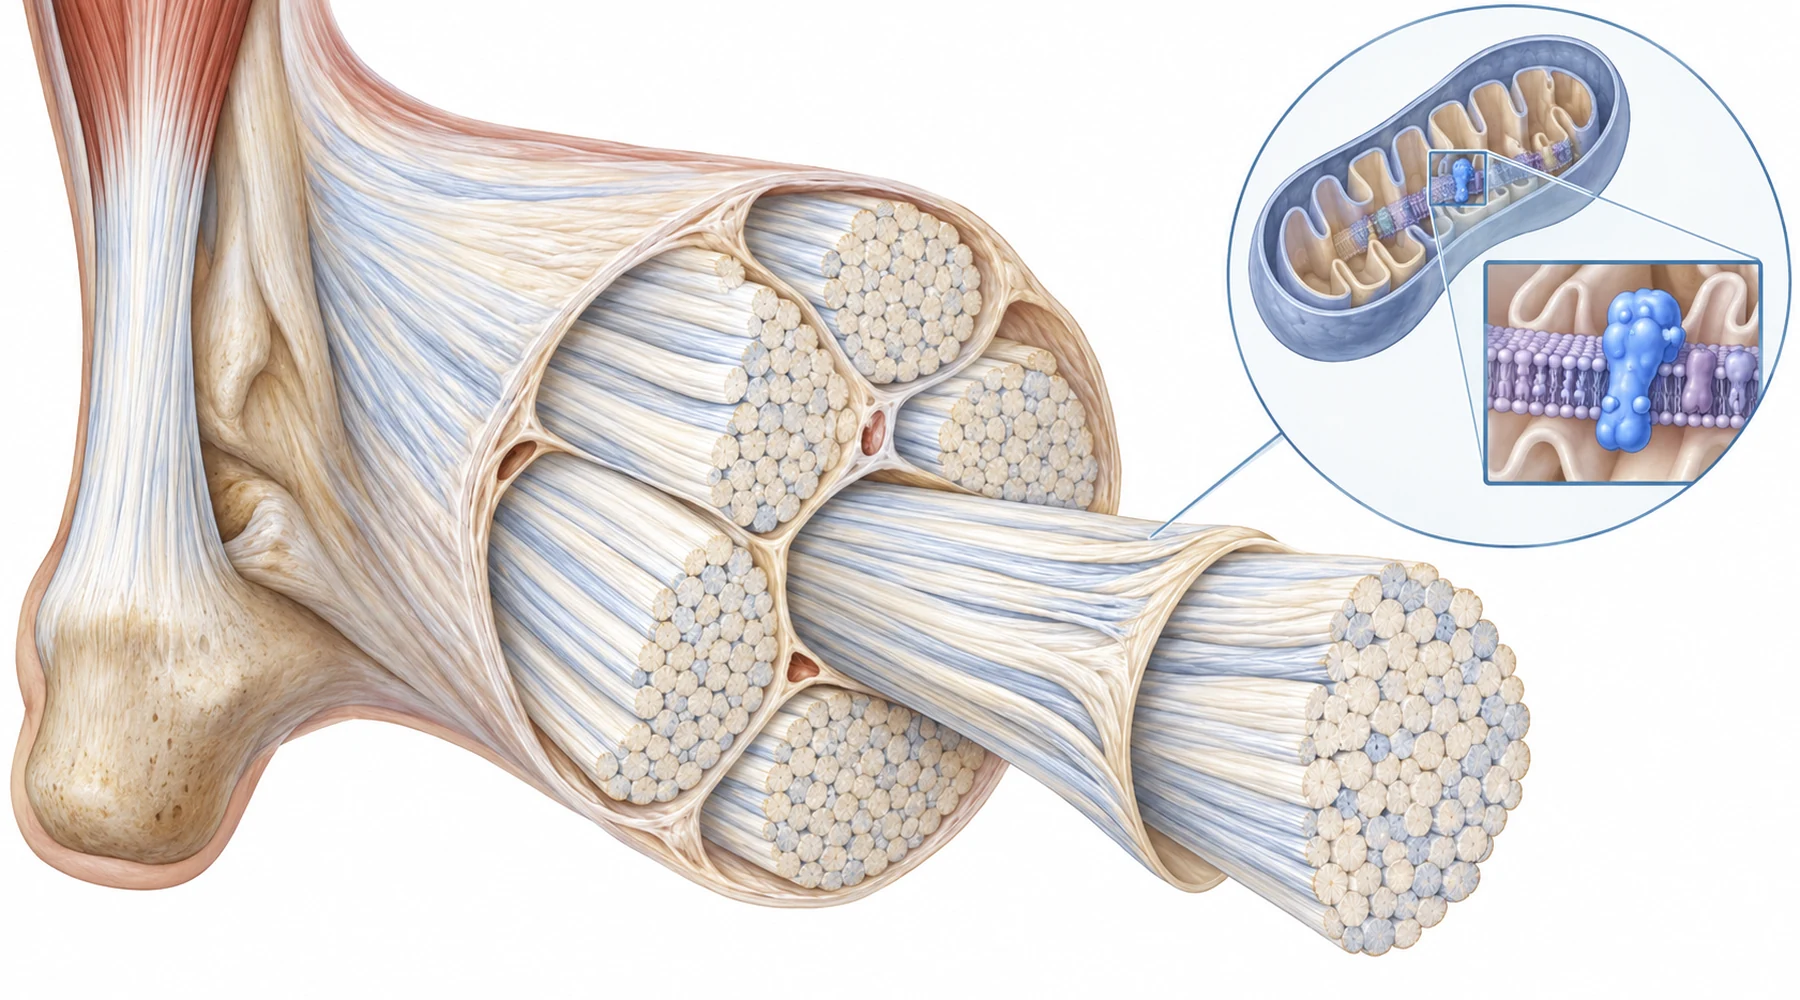
Zdrowe ścięgno składa się głównie z kolagenu typu I ułożonego w długie, równoległe pęczki przystosowane do przenoszenia obciążeń rozciągających. Zmienione chorobowo ścięgno w tym badaniu wykazywało typowe zmiany. Ilość kolagenu typu III wzrosła względem typu I, włókna straciły równoległe ułożenie, nasiliło się barwienie mucyny, pojawiły się naczynia i zaokrąglone komórki, a oceny w skali Bonara osiągnęły stopnie 3 do 4. Wzrosły markery apoptozy. Jest to degeneracja macierzy w sensie strukturalnym: nie rozpuszczenie, lecz zaburzona przebudowa prowadząca do powstania słabszej mieszaniny włókien.
Równolegle zmieniała się biochemia. W zmienionym chorobowo ścięgnie spadły poziom NAD+, stosunek NAD+ do NADH i całkowita pula NAD, a NADH się gromadził. Spadł poziom ATP. Wzrosły poziomy PARP i NOX4, dwóch układów związanych ze zużyciem NAD+ i wytwarzaniem utleniaczy. Dane RNA z pojedynczych komórek wskazywały w tym samym kierunku: w chorobie silniej reprezentowane były programy degradacji, zapalenia i stresu oksydacyjnego, natomiast w zdrowym ścięgnie — programy transportu elektronów, metabolizmu ATP i fosforylacji oksydacyjnej.
Można wyobrazić sobie NAD+ i NADH jako jeden przenośnik w dwóch stanach. NAD+ przyjmuje elektrony w reakcjach metabolicznych i staje się NADH. Następnie mitochondria utleniają NADH z powrotem do NAD+ w kompleksie I i wykorzystują uwolnioną energię do wytworzenia gradientu protonowego napędzającego syntezę ATP. Stosunek tych form ma znaczenie, ponieważ przepływ musi zachodzić w obu kierunkach. Niski stosunek przy jednocześnie zmniejszonej całkowitej puli oznacza, że przenośników jest mniej i utknęły one w stanie załadowanym.
Kompleks I zajmuje centralne miejsce w tym wyjaśnieniu. Dwa markery jego biogenezy i składania, AIF i NDUFB8, miały niższe poziomy w zmienionym chorobowo ludzkim ścięgnie, a bezpośrednia aktywność kompleksu I (mierzona jako aktywność reduktazy NADH–żelazicyjanek) była obniżona. Ten sam wzorzec wystąpił w modelu szczurzym. Osłabienie kompleksu I stanowi więc prawdopodobne ogniwo łączące zaburzenie równowagi redoks, nadmiar reaktywnych form tlenu (ROS), niski poziom ATP i nieprawidłową macierz. Związek między transportem elektronów a dostarczaniem energii jest częścią szerszego zagadnienia mitochondrialnego transportu elektronów, ATP i metabolizmu energetycznego oraz stresu oksydacyjnego i kontroli ROS.
AIF wymaga wyjaśnienia, ponieważ jego nazwa jest myląca. Czynnik indukujący apoptozę brzmi jak białko odpowiedzialne wyłącznie za śmierć komórki. W zdrowych mitochondriach wspiera składanie kompleksu I i fosforylację oksydacyjną. Przy ciężkim uszkodzeniu może opuścić mitochondria i uczestniczyć w śmierci komórki. To lokalizacja decyduje, która rola przeważa.
Co zmienił błękit metylenowy
W szczurzym modelu uszkodzenia kolagenazą błękit metylenowy przywracał równowagę NAD+ do NADH i stan całkowitej puli NAD w kierunku wartości kontrolnych, zwiększał ATP i obniżał ROS. Potencjał błony mitochondrialnej poprawił się w ocenie barwieniem JC-1. Poprawiła się histologia: mniejsze było zaburzenie ułożenia włókien i mniej mucyny wykrywalnej barwieniem, silniejszy był sygnał kolagenu typu I, a słabszy typu III, niższe były sygnały PARP i NOX4 oraz mniej było komórek apoptotycznych. Parametry chodu oceniane na podstawie śladów łap (długość cyklu kroku i długość kroku) zbliżyły się do wartości prawidłowych.
Ludzkie eksplanty zachowywały się podobnie w naczyniu hodowlanym. Po uszkodzeniu utleniaczem błękit metylenowy poprawiał parametry biochemiczne NAD+ i zwiększał ATP, poprawiał oceny histologiczne, przesuwał barwienie kolagenu z powrotem w stronę typu I, obniżał PARP i NOX4 oraz zwiększał AIF i NDUFB8. Hodowane tenocyty szczura wykazywały ten sam wzorzec: lepszą żywotność po uszkodzeniu utleniaczem, przywrócenie parametrów biochemicznych NAD+ i ATP, niższy poziom ROS, lepszy potencjał błonowy, mniej apoptozy i niższy stosunek typu III do typu I.
Żaden z tych wyników nie jest klinicznym wynikiem stosowania błękitu metylenowego w tendinopatii u ludzi. To spójna odpowiedź tkanek i komórek w trzech układach doświadczalnych: poprawa procesów redoks i energetycznych oraz markerów macierzy. Spójność między układami wzmacnia argumentację dotyczącą mechanizmu. Nie ustala dawki, drogi podania ani działania przeciwbólowego u pacjentów.
Gdzie kończył się efekt ochronny
Eksperymenty z rotenonem i wyciszeniem AIF sprawdzają, czy ten mechanizm zależy od proponowanych elementów. Dają przeciwne odpowiedzi, a ten kontrast jest najbardziej informacyjną częścią publikacji.
Rotenon jest selektywnym inhibitorem kompleksu I. Przy farmakologicznej blokadzie kompleksu I błękit metylenowy nadal chronił parametry biochemiczne NAD+ i wskaźniki związane z ATP, ale nie ograniczał gromadzenia ROS, nie przywracał markerów kolagenu i kompleksu I ani nie zachowywał żywotności komórek. Depolaryzacja mitochondriów utrzymywała się. Innymi słowy, parametr biochemiczny się zmieniał, ale wyniki oceny tkanki nie. Czytelnik utożsamiający przywrócenie stosunku NAD+ z poprawą stanu ścięgna błędnie zinterpretowałby ten wariant eksperymentu.
Wyciszenie AIF dało odwrotny wzorzec. Samo obniżenie produkcji AIF zaburzało funkcję kompleksu I, biochemię NAD+ i ATP, zwiększało PARP, NOX4 i ROS, powodowało depolaryzację mitochondriów i nasilało degenerację macierzy. W tym przypadku błękit metylenowy poprawiał wszystkie oceniane obszary: równowagę NAD+, stres oksydacyjny, potencjał błonowy, ekspresję NDUFB8 oraz markery kolagenu I względem III. Zwiększał nawet resztkowy sygnał AIF w warunkach wyciszenia, co jest zgodne ze wspieraniem zależnej od AIF naprawy mitochondriów i biogenezy kompleksu I.
Zestawione obok siebie wyniki rozdzielają dwie koncepcje, które łatwo ze sobą połączyć. Procesy biochemiczne NAD+ można częściowo podtrzymać nawet przy zablokowanym kompleksie I, ale samo to wsparcie nie koryguje obciążenia utleniaczami ani struktury macierzy w tym układzie doświadczalnym. Gdy zaburzenie występuje wcześniej w szlaku, na poziomie AIF, a aparat kompleksu I jest nadal obecny, lecz niedostatecznie zbudowany, wsparcie przez błękit metylenowy współwystępuje z szerszą poprawą. Efekt ochronny na poziomie tkanki w tym szlaku zależy więc od kompleksu I, chociaż jeden wskaźnik biochemiczny od niego nie zależy.
To również wyjaśnia, dlaczego publikacja dokładnie opisuje całkowitą pulę NAD. W niektórych eksperymentach komórkowych błękit metylenowy przywracał stosunek NAD+ do NADH i ATP bez większej zmiany całkowitej puli. Stosunek i pula to różne wielkości. Lepszy stosunek przy tej samej puli oznacza zmianę rozkładu między dwoma stanami, a nie wytwarzanie nowych cząsteczek przenośnika.
Czego nadal nie sprawdzono
Każde podsumowanie powinno uwzględniać cztery ograniczenia.
Po pierwsze, żaden człowiek nie przyjmował błękitu metylenowego z powodu objawów ze strony ścięgna. Dane dotyczące ludzi obejmują tu biochemię i histologię tkanki pobranej podczas zabiegów chirurgicznych oraz eksplanty uszkodzone utleniaczem. Nie badano u ludzi bólu, ryzyka zerwania, powrotu do aktywności ani działań niepożądanych.
Po drugie, uszkodzenia u zwierząt i w komórkach są wywoływane w kontrolowany sposób. Wstrzyknięcie kolagenazy i ekspozycja na TBHP celowo wyodrębniają zaburzenie macierzy i stres oksydacyjny. Pomijają historię stopniowego obciążania, krążenie, kontekst immunologiczny, unerwienie i złożone przyczyny rzeczywistej choroby ścięgna Achillesa.
Po trzecie, stężeń nie można bezpośrednio przekładać na dawki. Badania komórkowe koncentrowały się na około 1 mikromolowym stężeniu błękitu metylenowego przy 50 mikromolowym stężeniu TBHP, z 5 mikromolowym stężeniem rotenonu tam, gdzie go stosowano. Stężenia w naczyniu hodowlanym nie są dawkami doustnymi, a publikacja nie przedstawia twierdzenia dotyczącego dawkowania w przypadku ludzkiego ścięgna.
Po czwarte, błękit metylenowy jest aktywny redoks, a jego własną zależność efektu od dawki opisano w innych publikacjach. To badanie wspiera mechanizm związany z mitochondriami i NAD+ w preparatach ścięgna. Nie dostarcza schematu postępowania domowego, a w przypadku bólu ścięgna istnieją ocenione metody postępowania (zarządzanie obciążeniem, rehabilitacja, opieka pod kierunkiem klinicysty), z którymi ta publikacja nie dokonuje porównania.
Rzetelne podsumowanie jest więc warunkowe. Tam, gdzie tendinopatii ścięgna Achillesa towarzyszyły zaburzenie równowagi NAD+ i osłabienie kompleksu I, błękit metylenowy przywracał procesy redoks i energetyczne oraz poprawiał markery macierzy w ścięgnie szczura, eksplantach ludzkiego ścięgna i hodowanych tenocytach. Przy bezpośredniej blokadzie kompleksu I biochemia poprawiała się bez poprawy stanu tkanki. Gdy obniżano AIF, powracał szerszy efekt ochronny. Ten wzorzec wspiera ukierunkowanie na metabolizm NAD+, AIF i kompleks I jako strategię badawczą. Nie pokazuje, że błękit metylenowy leczy bolesne ścięgna Achillesa u ludzi.