
Artykuł
Błękit metylenowy i NAD+/NADH: interpretacja komórkowej równowagi redoks
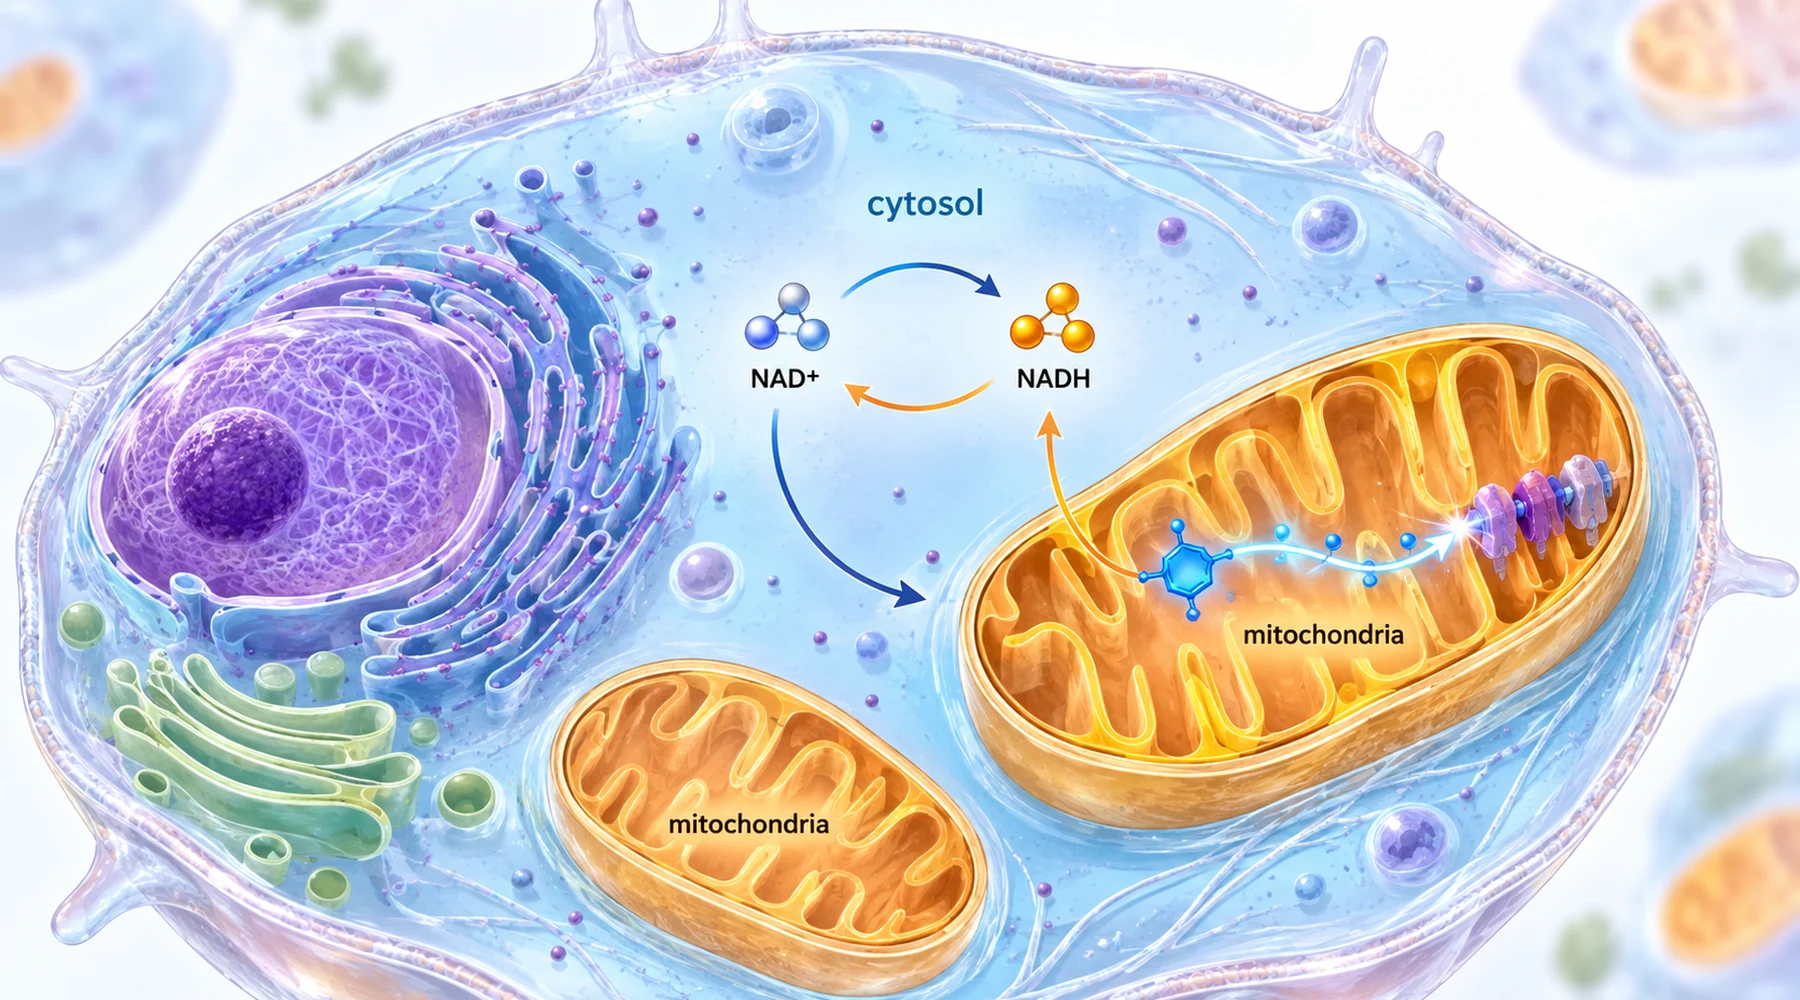
Doniesienia o błękicie metylenowym i NAD+ często zacierają różnice między trzema odrębnymi twierdzeniami. Pierwsze mówi, że stosunek NAD+ do NADH przesunął się w stronę stanu bardziej utlenionego. Drugie — że komórka zawiera więcej NAD ogółem. Trzecie — że produkcja energii została przywrócona. Brzmi to jak jedna opowieść o odbudowie metabolizmu. W doświadczeniach te wyniki regularnie się rozchodzą, a najciekawsze są właśnie przypadki, w których nie idą w parze.
To pomieszanie jest zrozumiałe, ponieważ wszystkie trzy wielkości opisuje się tym samym językiem. NAD+ przyjmuje elektrony w reakcjach metabolicznych i staje się NADH, a następnie mitochondria utleniają NADH z powrotem do NAD+ w kompleksie I i wykorzystują uwolnioną energię do napędzania syntezy ATP. Pełniejsze omówienie tej drogi elektronów znajduje się w wyjaśnieniu mitochondrialnego transportu elektronów, a aspekt energetyczny opisano w artykule ATP i metabolizm energetyczny. Jednak stosunek i pula to różne wielkości. Stosunek pokazuje, jak istniejąca flota przenośników dzieli się na stany załadowane i rozładowane. Pula mówi, ile cząsteczek przenośnika w ogóle istnieje. Korzystniejszy stosunek przy tej samej puli oznacza zmianę rozkładu, a nie wytwarzanie nowych cząsteczek.
Dwa przedziały, dwa wskaźniki
Istnieje jeszcze jedno rozróżnienie, którego pomijanie prowadzi do błędnych interpretacji. Cytosolowa i mitochondrialna pula NAD są w dużej mierze rozdzielone przez wewnętrzną błonę mitochondrialną, dlatego każdy przedział może niezależnie utrzymywać stan względnie bardziej utleniony lub zredukowany. Pojedyncza wartość dla całej komórki zaciera tę różnicę.

Badania wątroby pozwoliły mierzyć tę różnicę między przedziałami. Równowaga między mleczanem a pirogronianem odzwierciedla cytosolowy stosunek NAD+ do NADH, ponieważ dehydrogenaza mleczanowa sprzęga ze sobą te dwie pary. Równowaga między 3-hydroksymaślanem a acetooctanem odzwierciedla stosunek mitochondrialny dzięki podobnemu sprzężeniu. Gdy obie pary mierzy się w tkance błyskawicznie zamrożonej przez zaciśnięcie między schłodzonymi zaciskami, jak w badaniu przewlekłego podawania etanolu w diecie szczurów, otrzymuje się dwa odczyty redoks z jednej wątroby, a dany związek może zmieniać jeden z nich silniej niż drugi.
Błękit metylenowy działa w tym układzie jako przenośnik elektronów, a nie paliwo. Przyjmuje elektrony z NADH w pobliżu kompleksu I, ulegając redukcji, a następnie przekazuje je dalej przenośnikom takim jak cytochrom c. Efektem netto jest utlenianie NADH bez przechodzenia przez całą standardową drogę. Ten mechanizm wyjaśnia zarówno jego potencjał, jak i ograniczenia: może zmniejszać zator wynikający z nadmiernej redukcji, ale nie odbudowuje uszkodzonego kompleksu ani nie syntetyzuje nowych cząsteczek NAD.
Pięć badań, jeden wzorzec rozbieżnych wyników
Poniższa tabela zestawia pięć badań według tkanki, wskaźnika redoks, wskaźnika energetycznego oraz tego, co rzeczywiście uległo poprawie. Dwie ostatnie kolumny należy czytać łącznie. To zestawienie stanowi sedno artykułu.
| Tkanka i czynnik uszkadzający | Wskaźnik redoks przy zastosowaniu błękitu metylenowego | Wskaźnik energetyczny i sygnalizacyjny | Wynik funkcjonalny |
|---|---|---|---|
| Wątroba szczura, przewlekła dieta z etanolem | W dużej mierze przywrócone cytosolowe i mitochondrialne stosunki NAD+/NADH; znormalizowany poziom glicerolo-3-fosforanu | ATP bez zmian pod wpływem etanolu lub interwencji; niewielki spadek ATP przy podawaniu barwnika w późnym punkcie czasowym | Naciek tłuszczowy bez zmian; poziomy lipidów i triacylogliceroli pozostały wysokie |
| Hepatocyty i wątroba myszy na diecie wysokotłuszczowej | Zwiększony stosunek NAD+/NADH i zawartość NAD+ w komórkach i wątrobie | Wzrost SIRT1, deacetylacja PGC-1alpha, wzrost ilości mitochondrialnego DNA i zużycia tlenu, aktywacja AMPK zależna od SIRT1 | Zmniejszone gromadzenie tłuszczu w wątrobie i stłuszczeniowe zapalenie wątroby |
| Serce szczura z cukrzycą | Obniżony stosunek NADH/NAD+ podczas utleniania substratów w izolowanych mitochondriach | Zwiększona aktywność SIRT3; mniejsza acetylacja lizyny w 83 miejscach na 34 białkach | Poprawa parametrów objętościowych serca i frakcji wyrzutowej; sam defekt kompleksu I nie został skorygowany |
| Siatkówka myszy z niedoborem AIF i komórki fotoreceptorowe poddane działaniu rotenonu | Znormalizowany stosunek NADH/NAD+ w komórkach; obniżony stres oksydacyjny | Niedobór ATP w komórkach nie został skorygowany; wyciszone szlaki odpowiedzi na stres mitochondrialny | Zachowana grubość siatkówki i markery fotoreceptorów; poprawa przeżywalności komórek |
| Ludzkie i szczurze ścięgno Achillesa, uszkodzenie wywołane utleniaczami i kolagenazą | Równowaga NAD+ i stan biochemiczny całkowitej puli NAD przywrócone w kierunku wartości kontrolnych | Wzrost ATP i spadek ROS tam, gdzie wystąpił efekt ochronny | Poprawa markerów macierzy z wyjątkiem bezpośredniej blokady kompleksu I, przy której zmieniły się parametry biochemiczne, ale nie stan tkanki |
Kiedy korekta redoks nie poprawiła stanu tkanki
Najstarsze badanie w tym zestawieniu pozostaje najwyraźniejszym ostrzeżeniem. U szczurów otrzymujących etanol stanowiący 36 procent energii w diecie obniżyły się cytosolowe i mitochondrialne stosunki NAD+/NADH, mierzone za pomocą obu par wskaźnikowych, a błękit metylenowy podawany w diecie w ilości około 42 mg na kg na dobę w dużej mierze zapobiegał tym zmianom. Mimo to w późnym punkcie czasowym poziom triacylogliceroli w wątrobie wzrósł mniej więcej trzykrotnie, niezależnie od obecności barwnika, a badanie histologiczne wykazało takie samo stłuszczenie w centralnych częściach zrazików. Autorzy wprost wyciągnęli niewygodny wniosek: zmiana redoks towarzysząca utlenianiu etanolu sama w sobie nie jest przyczyną stłuszczenia wątroby. Czytelnik utożsamiający skorygowany stosunek z poprawą stanu narządu błędnie przedstawiłby wyniki tej pracy. Pełny schemat doświadczenia, obejmujący grupy kontrolne otrzymujące dopasowaną ilość pokarmu oraz pobieranie próbek o północy, w szczycie działania etanolu, opisano w badaniu wątroby przy podawaniu etanolu.
Warto porównać to z badaniem wątroby przy diecie wysokotłuszczowej, w którym podobna zmiana stosunku współwystępowała z rzeczywistą poprawą stanu tkanki. W hepatocytach oraz w wątrobie myszy po podaniu doustnym błękit metylenowy zwiększał stosunek NAD+/NADH, a łańcuch sygnalizacyjny prześledzono krok po kroku: wzrost SIRT1, deacetylacja PGC-1alpha, wzrost markerów biogenezy mitochondriów i zużycia tlenu, a następnie zaangażowanie AMPK, CPT-1 i PPARalpha, przy czym wykazano zależność aktywacji AMPK od SIRT1. U myszy na diecie wysokotłuszczowej gromadziło się mniej tłuszczu w wątrobie. Proponowane wyjaśnienie zakłada, że zmiana redoks odblokowała tutaj oś regulacji genów, zamiast jedynie przywrócić równowagę biochemiczną, co szczegółowo opisano w badaniu SIRT1 i AMPK w wątrobie. Ta sama grupa pomiarów co w badaniu etanolu, lecz przeciwna ocena stanu tkanki. Różnicę stanowi szlak uruchamiany dalej, a nie sam stosunek.
Serce i siatkówka: sirtuiny, acetylacja i ochrona bez przywrócenia ATP
Badanie serca w cukrzycy łączy zmianę redoks z acetylacją białek za pośrednictwem innej sirtuiny. W mitochondriach w cukrzycy występuje nadmierna acetylacja lizyny w enzymach metabolicznych, która współwystępuje z ograniczoną elastycznością wykorzystania substratów. Błękit metylenowy podawany w ilości 10 mg na kg na dobę ułatwiał utlenianie NADH, a w izolowanych mitochondriach efekt ten był zależny od stężenia w zakresie od 6 do 18 mikromoli na litr. Zwiększał aktywność SIRT3 i szeroko obniżał acetylację, podczas gdy parametry objętościowe serca i frakcja wyrzutowa poprawiały się mimo utrzymywania się pierwotnego zaburzenia kompleksu I. Autorzy wyraźnie omawiają zależność efektu od dawki opisaną w innych pracach: niskie stężenia sprzyjają roli przenośnika elektronów w warunkach redukcyjnych, natomiast wyższe mogą kierować elektrony na nieproduktywne tory, więc efekt ma charakter hormetyczny, a nie monotoniczny. Analizę proteomiczną i pomiary sercowe przedstawiono w badaniu acetylacji w sercu w cukrzycy. Kontekst tych wyników omówiono w materiale o stresie oksydacyjnym i kontroli ROS.
Badanie siatkówki pokazuje tę rozbieżność najdobitniej. U myszy Harlequin z niedoborem AIF, powodującym defekt składania kompleksu I, błękit metylenowy pozwalał zachować grubość siatkówki, segmenty zewnętrzne fotoreceptorów oraz markery pręcików, czopków, komórek Müllera i komórek zwojowych. W komórkach fotoreceptorowych 661W poddanych działaniu rotenonu barwnik w stężeniu 15 mikromoli na litr normalizował stosunek NADH do NAD+ i obniżał poziom reaktywnych form tlenu, jednak ATP pozostawało obniżone przy stężeniach sprzyjających przeżyciu. Struktura i przeżywalność zostały zachowane bez przywrócenia poziomu energii, czemu towarzyszyło wyciszenie mitochondrialnej odpowiedzi na niesfałdowane białka i mitofagii. Ten wynik każe postrzegać barwnik raczej jako czynnik łagodzący stres redukcyjny i oksydacyjny niż przywracający produkcję energii, co udokumentowano w badaniu ochrony fotoreceptorów siatkówki.
Ścięgno: doświadczenie, w którym zmieniła się biochemia, ale nie stan tkanki
Praca dotycząca ścięgna Achillesa zawiera oba wzorce w jednym badaniu i warto czytać ją uważnie. Pełne omówienie poszczególnych wariantów doświadczenia znajduje się w analizie badania tendinopatii Achillesa z 2026 roku. W zmienionym chorobowo ścięgnie stwierdzono niedobór NAD+, niski stosunek NAD+ do NADH, obniżone markery kompleksu I, niski poziom ATP i zaburzoną organizację kolagenu. Błękit metylenowy przywracał parametry biochemiczne NAD i poziom ATP oraz poprawiał markery macierzy w modelach szczurzych, ludzkich eksplantach i preparatach komórkowych.
Następnie zastosowano dwa rodzaje zaburzeń. Przy blokadzie kompleksu I rotenonem barwnik nadal chronił parametry biochemiczne NAD+ i odczyty związane z ATP, ale nie zmniejszał obciążenia oksydacyjnego, nie przywracał równowagi kolagenu ani nie zachowywał żywotności. Po wyciszeniu AIF, gdy aparat kompleksu I był niedostatecznie zbudowany, a nie zablokowany farmakologicznie, barwnik przynosił szeroką poprawę: równowagi NAD, stresu oksydacyjnego, potencjału błonowego i markerów kolagenu. Wniosek jest precyzyjny. Korzystniejszy wynik pomiaru NAD można uzyskać nawet przy zablokowanym kompleksie I, ale poprawa stanu tkanki w tym modelu zależała od funkcjonalnej drogi przez kompleks I. Zmiana stosunku jest w tej pracy konieczna, lecz niewystarczająca — ten wątek rozwinięto w badaniu redoks w ścięgnie.
Jak czytać kolejne twierdzenia o redoks
Trzy pytania pozwalają uniknąć większości błędnych interpretacji. Po pierwsze, którego przedziału dotyczy stosunek i za pomocą jakiej pary wskaźnikowej go uzyskano? Cytosolowy wynik dla mleczanu i pirogronianu nie mówi niczego bezpośrednio o macierzy mitochondrialnej. Po drugie, czy praca opisuje zmianę stosunku, większą całkowitą pulę, czy przywrócenie poziomu ATP? Każde z nich należy traktować jako osobny wynik. Po trzecie, co nadal pozostawało zaburzone? Utrzymujące się stłuszczenie, nieskorygowany defekt kompleksu I lub niewyrównany niedobór ATP pojawiają się w tych pracach obok rzeczywistej poprawy redoks.
Żadna z tych informacji nie stanowi przewodnika dawkowania. Wszystkie pięć badań przeprowadzono na zwierzętach, komórkach lub preparatach tkankowych z kontrolowanymi czynnikami uszkadzającymi: płynnymi dietami z etanolem, cukrzycą wywołaną streptozotocyną, genetycznymi defektami kompleksu I, rotenonem, nadtlenkiem i kolagenazą. Stężeń stosowanych w hodowlach nie da się po prostu przeliczyć na dawki doustne, a w żadnej z tych prac ludzie nie przyjmowali błękitu metylenowego w celu uzyskania równowagi redoks. Wspólny wniosek dla farmakologii redoks i dawkowania jest węższy i bardziej użyteczny niż jakikolwiek protokół: błękit metylenowy utlenia NADH i zmienia mierzony stosunek, sirtuiny w niektórych tkankach przekładają tę zmianę na deacetylację i przeprogramowanie metabolizmu, a to, czy stan tkanki również się poprawi, zależy od aparatu, którego barwnik nie może zastąpić.