
Artykuł
Błękit metylenowy a sygnalizacja zapalna: inflamasomy, IL-6 i STAT3
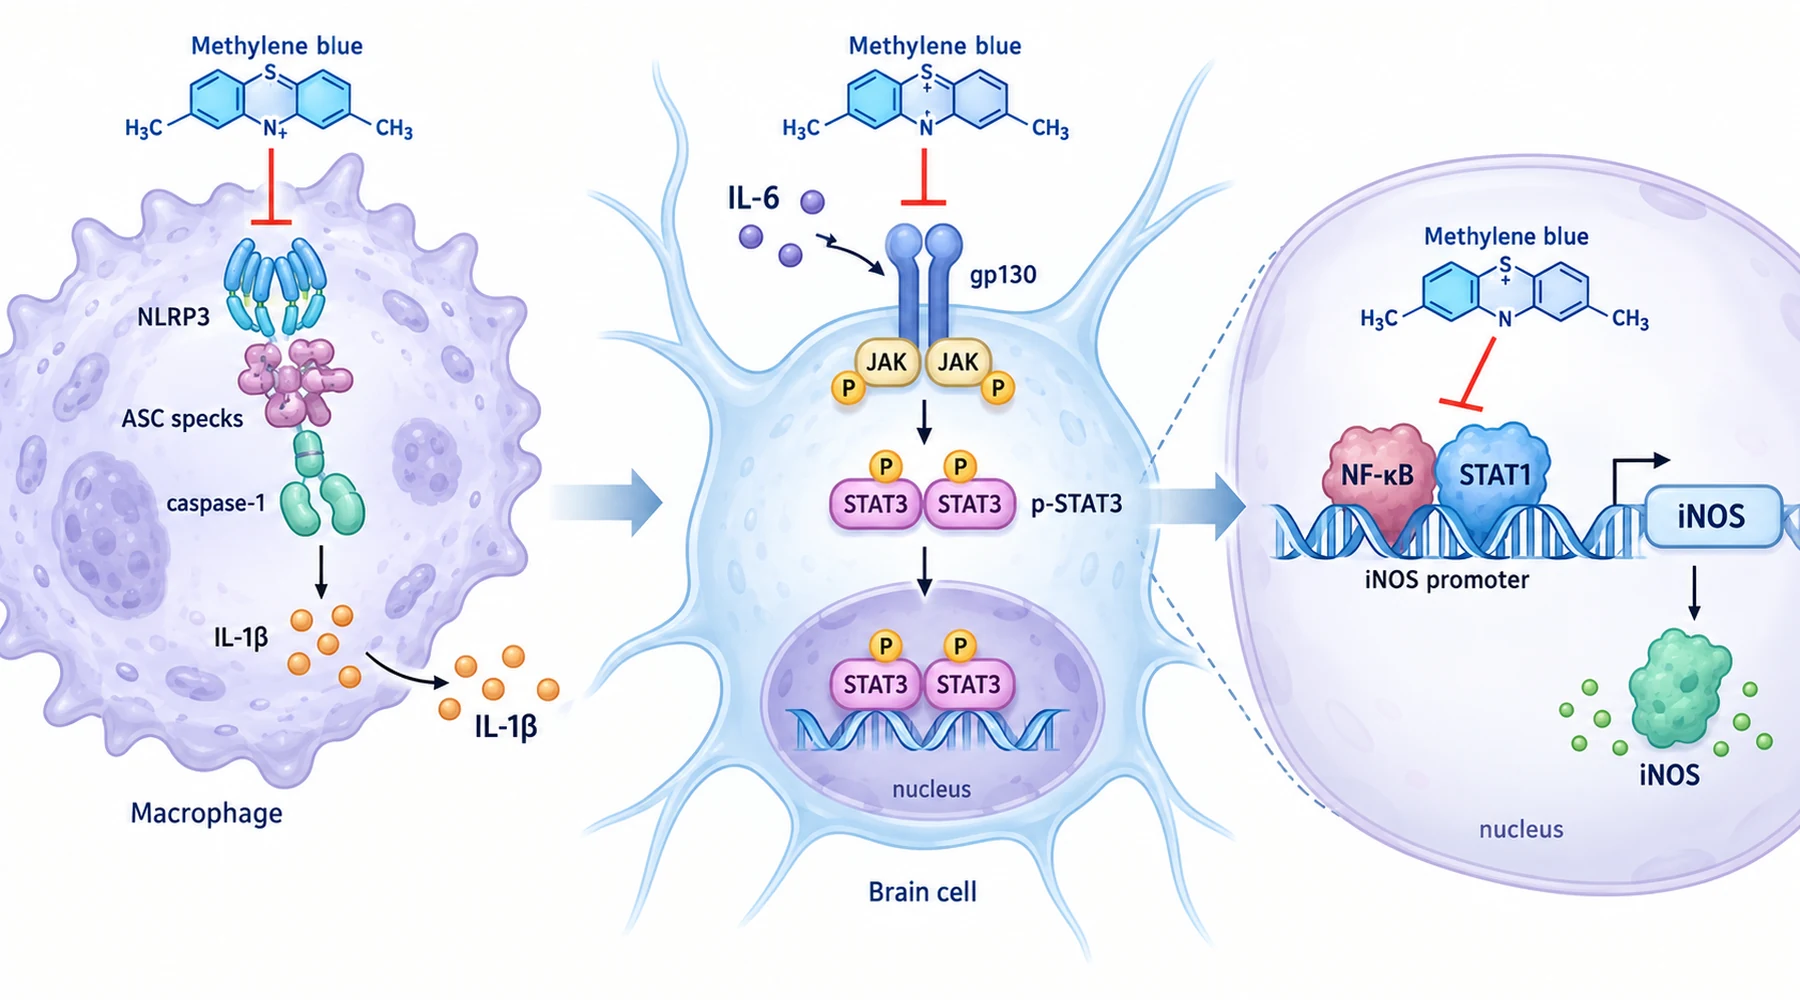
Załóżmy, że trzy laboratoria donoszą o przeciwzapalnym działaniu tego samego niebieskiego związku. Jedno wykazuje mniej IL-1beta uwalnianej przez makrofagi. Drugie wykazuje mniej enzymu iNOS w tym samym typie komórek. Trzecie wykazuje mniej IL-6 we krwi i mniejszą aktywność STAT3 w mózgu. Pojawia się pokusa połączenia tych trzech wyników w jedno twierdzenie. Takie połączenie zaciera istotę odkryć.
Każdy wynik dotyczy innego mechanizmu sygnalizacji, z własnym bodźcem, etapem tworzenia kompleksu i mierzonym parametrem. Błękit metylenowy oddziałuje na każdy z tych mechanizmów w innym punkcie. To, czy którykolwiek z nich przekłada się na poprawę wyników zdrowotnych, jest odrębną kwestią, omówioną w naszym przeglądzie dotyczącym błękitu metylenowego i zapalenia. Ten artykuł skupia się na szlakach.
Szlak 1: tworzenie inflamasomu i kaspaza-1
Inflamasom to rusztowanie białkowe powstające w razie potrzeby wewnątrz komórki mieloidalnej. Jego elementami są czujnik, białko adaptorowe zwane ASC oraz enzym efektorowy zwany kaspazą-1. Po utworzeniu kompleksu kaspaza-1 rozcina pro-IL-1beta i pro-IL-18 do form wydzielanych i może wywołać piroptozę, zapalną formę śmierci komórkowej. Czujnik określa typ inflamasomu: NLRP3 reaguje na kryształy oraz toksyny tworzące pory, takie jak nigerycyna i ATP, NLRC4 reaguje na flagelinę bakteryjną, AIM2 reaguje na dwuniciowy DNA w cytozolu, a szlak niekanoniczny reaguje na wewnątrzkomórkowy lipopolisacharyd.
Aktywacja wymaga dwóch sygnałów. Pierwszy sygnał to przygotowanie: ligand receptora Toll-podobnego uruchamia zależną od NF-kB transkrypcję NLRP3 i pro-IL-1beta, zapewniając dostępność elementów. Drugi sygnał to tworzenie kompleksu: kolejny bodziec powoduje oligomeryzację ASC w skupiska, rozcięcie kaspazy-1 z wytworzeniem fragmentu p20 oraz uwolnienie dojrzałej IL-1beta p17. Wiadomo, że mitochondrialne reaktywne formy tlenu i pobieranie kryształów przyczyniają się do drugiego sygnału w przypadku NLRP3.
W badaniu makrofagów z 2017 roku dotyczącym szerokiego hamowania inflamasomów sprawdzono działanie błękitu metylenowego na oba sygnały. W mysich makrofagach szpiku kostnego przygotowanych lipopolisacharydem nigerycyna, ATP i kryształy moczanu monosodowego wywoływały uwalnianie IL-1beta i kaspazy-1 oraz tworzenie skupisk ASC. Błękit metylenowy w stężeniach od 20 do 200 mikromoli na litr zmniejszał wszystkie trzy parametry w sposób zależny od dawki, nie zabijając komórek. Taki sam wzorzec zaobserwowano dla flageliny i Salmonella w przypadku NLRC4, dwuniciowego DNA i Listeria w przypadku AIM2 oraz lipopolisacharydu wprowadzonego przez transfekcję lub żywych E. coli w przypadku szlaku niekanonicznego. Sam związek nie wywoływał uwalniania, a płytki kontrolne nie wykazały działania przeciwbakteryjnego, więc wynik dotyczy odpowiedzi gospodarza.
Na wcześniejszych etapach szlaku oceniono trzy punkty oddziaływania. Pod wpływem błękitu metylenowego zmniejszała się ilość mitochondrialnego anionorodnika ponadtlenkowego indukowanego rotenonem, a wraz z nią zmniejszało się uwalnianie IL-1beta wywołane rotenonem. Zmniejszało się pobieranie fluorescencyjnych kulek, co odpowiada ograniczeniu fagocytozy przed wykrywaniem kryształów. Reporter kontrolowany przez promotor NLRP3 z dwoma miejscami wiązania NF-kB wykazywał mniejszą aktywność w obecności błękitu metylenowego, natomiast skrócony promotor bez tych miejsc nie reagował. W probówce bez komórek błękit metylenowy również bezpośrednio zmniejszał aktywność rekombinowanej ludzkiej kaspazy-1. Dodanie związku wyłącznie na etapie przygotowania lub wyłącznie na etapie aktywacji nadal zmniejszało uwalnianie IL-1beta, IL-18 i kaspazy-1, co wskazuje na udział obu etapów.
Badania na myszach potwierdzały tę selektywność. Śmiertelna dawka lipopolisacharydu powodowała śmierć zwierząt kontrolnych w ciągu kilku godzin, natomiast błękit metylenowy poprawiał przeżywalność; stężenie IL-1beta w płynie otrzewnowym zmniejszało się, ale stężenie IL-6 w tym samym płynie nie. W modelu zapalenia otrzewnej wywołanego przez Listeria stężenie IL-1beta w płynie otrzewnowym zmniejszało się, podczas gdy całkowita liczba komórek pozostawała bez zmian. Ludzkie monocyty THP-1 zachowywały się podobnie do mysich makrofagów we wszystkich czterech typach inflamasomów. Wynik dotyczący inflamasomu wyjaśnia dojrzewanie IL-1beta i IL-18, a nie każdej cytokiny. Dlatego też kształt komórek odpornościowych mózgu w eksperymentach z mikroglejem i astrocytami odpowiada na inne pytanie niż tworzenie rusztowania.
Szlak 2: transkrypcja iNOS poprzez wiązanie NF-kB i STAT1
Indukowalna syntaza tlenku azotu, czyli iNOS, jest niemal nieobecna w stanie spoczynku, a jej transkrypcja zachodzi w razie potrzeby. Lipopolisacharyd uruchamia ją głównie przez degradację IkB-alpha, po której następują fosforylacja NF-kB i jego przejście do jądra. Interferon-gamma uruchamia ją głównie przez fosforylację STAT1 przez kinazę Janusową, po której następuje przejście STAT1 do jądra. Każdy z czynników wiąże się następnie ze swoim miejscem w promotorze iNOS. Aktywność enzymu i indukcja genu to odrębne punkty kontroli, a lek może działać na jeden z nich lub na oba.
Badanie indukcji iNOS w makrofagach i u myszy z endotoksemią z 2015 roku wskazało na działanie na poziomie mRNA. W komórkach RAW 264.7 i pierwotnych makrofagach mysich błękit metylenowy w stężeniu 1 mikromola na litr, podany 30 minut przed lipopolisacharydem, interferonem-gamma lub oboma bodźcami, zmniejszał ilość białka i mRNA iNOS w okresie od 8 do 24 godzin, przy mniejszej ilości azotynów w pożywce i bez utraty żywotności komórek. U myszy, którym podano 25 mg na kg lipopolisacharydu, pojedyncza dawka 5 mg na kg błękitu metylenowego podana godzinę wcześniej zmniejszała ilość białka i mRNA iNOS w płucach, wątrobie i sercu.
Charakterystyczne jest to, co nie uległo zmianie. Degradacja IkB-alpha, fosforylacja NF-kB, fosforylacja STAT1 i gromadzenie się obu czynników w jądrze przebiegały bez zmian. Zakłócenie pojawiało się o jeden etap później: w ekstraktach jądrowych wykazano słabsze wiązanie NF-kB z jego elementem DNA po podaniu lipopolisacharydu i słabsze wiązanie STAT1 po podaniu interferonu-gamma. Immunoprecypitacja chromatyny potwierdziła mniejsze wiązanie obu czynników z promotorem iNOS wewnątrz komórek. Zmniejszała się również ilość czynnika martwicy nowotworów alfa, którego promotor także wykorzystuje NF-kB. Czynniki były aktywowane i docierały do jądra, ale słabiej wiązały się z docelowym DNA.
Warto zauważyć różnicę względem szlaku 1. Ten mechanizm dotyczy wiązania czynnika z DNA, wykorzystuje STAT1 zamiast STAT3, a mierzone parametry to mRNA, białko i azotyny, nie zaś skupiska ASC i fragmenty kaspazy-1. Nasza mapa celów działania błękitu metylenowego w modelach komórkowych oddziela ten poziom transkrypcji od bezpośrednich pomiarów dotyczących enzymów i mitochondriów.
Szlak 3: IL-6 w surowicy i aktywacja STAT3 w tkankach
IL-6 przekazuje sygnał przez rodzinę receptorów gp130 do kaskady kinaz Janusowych i STAT3. Fosforylowany STAT3 tworzy dimery, przechodzi do jądra i uruchamia programy zapalne, natomiast sama IL-6 jest celem NF-kB. W ten sposób powstaje pętla sprzężenia zwrotnego, często nazywana osią IL-6–STAT3. Standardowo mierzy się stężenie IL-6 w surowicy na wcześniejszym etapie szlaku, stosunek fosforylowanego STAT3 do całkowitego STAT3 oraz enzymy efektorowe, takie jak iNOS i COX2, na późniejszych etapach.
W badaniu IL-6 i STAT3 po podaniu lipopolisacharydu u myszy z 2023 roku oceniono tę oś w różnych przedziałach organizmu. Samce myszy C57BL/6 otrzymywały 1 mg na kg lipopolisacharydu codziennie przez trzy dni oraz 5 lub 10 mg na kg błękitu metylenowego 30 minut po każdej dawce. Trzeciego dnia stężenie IL-6 w surowicy było mniejsze w obu grupach otrzymujących błękit metylenowy niż w grupie otrzymującej sam lipopolisacharyd, natomiast większość pozostałych cytokin w panelu nie zmieniała się pod wpływem podawania związku. Stosunek fosforylowanego STAT3 do całkowitego STAT3 był mniejszy w korze mózgowej, hipokampie i skórze ucha. Obserwowano również słabsze barwienie mikrogleju na Iba-1, mniejsze ilości iNOS i COX2 oraz częściowo ograniczoną utratę masy ciała.
Należy tu uwzględnić dwa zastrzeżenia. Mniejsze stężenie IL-6 w surowicy wraz z mniejszą fosforylacją STAT3 w tkankach odpowiada modulacji osi, ale nie wskazuje jednoznacznie głównego punktu oddziaływania. Mniejsza ilość cytokiny na wcześniejszym etapie, słabsza sygnalizacja receptorowa lub zmieniona aktywność fosfataz mogą bowiem dawać ten sam stosunek. Ponadto masa ciała podczas trzech dni ostrej stymulacji jest parametrem dotyczącym całego zwierzęcia, a nie oceną objawów czy remisji. Dostarcza kontekstu wykraczającego poza wynik analizy metodą blot, ale nie przekształca wyniku dotyczącego sygnalizacji w twierdzenie o leczeniu. Odrębne procesy chemiczne związane z mitochondrialnymi reakcjami redoks zachodzą równolegle do opisanych mechanizmów cytokinowych i nie należy ich z nimi łączyć.
Porównanie szlaków: punkty oddziaływania i mierzone parametry

| Szlak | Bodziec w tych publikacjach | Gdzie działa błękit metylenowy | Parametr, który uległ zmianie |
|---|---|---|---|
| Tworzenie inflamasomu | Nigerycyna, ATP, kryształy moczanów, flagelina, DNA, lipopolisacharyd w cytozolu | Mniejsza transkrypcja na etapie przygotowania, mniej mitochondrialnych ROS, słabsza fagocytoza, słabsze tworzenie kompleksów ASC, bezpośrednie hamowanie kaspazy-1 | Mniej kaspazy-1 p20, mniej dojrzałych IL-1beta i IL-18, mniej skupisk ASC |
| Transkrypcja iNOS | Lipopolisacharyd przez NF-kB; interferon-gamma przez STAT1 | Słabsze wiązanie NF-kB i STAT1 z DNA promotora mimo prawidłowej aktywacji i przejścia do jądra | Mniej mRNA i białka iNOS, mniej azotynów |
| Oś IL-6–STAT3 | Podawanie lipopolisacharydu myszom przez trzy dni | Mniejsze stężenie IL-6 w surowicy wraz z mniejszą fosforylacją STAT3 w tkankach | Mniejszy stosunek pSTAT3 do STAT3 w korze mózgowej, hipokampie i skórze; mniej iNOS, COX2, Iba-1 |
Tabela wskazuje trzy nieuprawnione przeniesienia wniosków. Wynik dotyczący skupisk ASC nie dowodzi wyniku dotyczącego STAT3. Wynik dotyczący wiązania STAT1 z promotorem iNOS nie dowodzi wyniku dotyczącego STAT3, choć oba białka należą do rodziny STAT. Wynik dotyczący IL-6 w surowicy nie dowodzi ograniczenia tworzenia inflamasomów: w eksperymencie dotyczącym otrzewnej ilość IL-1beta zmniejszała się, podczas gdy ilość IL-6 nie. Każdy wiersz wymaga własnego bodźca i mierzonego parametru. Dlatego podczas czytania badań komórkowych, zwierzęcych i klinicznych nad błękitem metylenowym trzeba dopasować każde twierdzenie do poziomu, na którym wykonano pomiary.
Żaden z tych wyników nie ustala dawkowania, bezpieczeństwa ani korzyści u ludzi. Modele z lipopolisacharydem wykorzystują kontrolowane bodźce do badania mechanizmu, a nie odtwarzają choroby przewlekłej. Podawanie związku w związku czasowym z bodźcem sprawdza zapobieganie wywołanej zmianie, a nie odwracanie rozwiniętej choroby. Należy oddzielać ten opis mechanizmów od wyników u pacjentów i oceniać każde twierdzenie dotyczące zdrowia na podstawie badania z udziałem pacjentów, które za nim stoi.