
Artykuł
Błękit metylenowy do barwienia DNA i RNA: zastosowania w żelach i na membranach
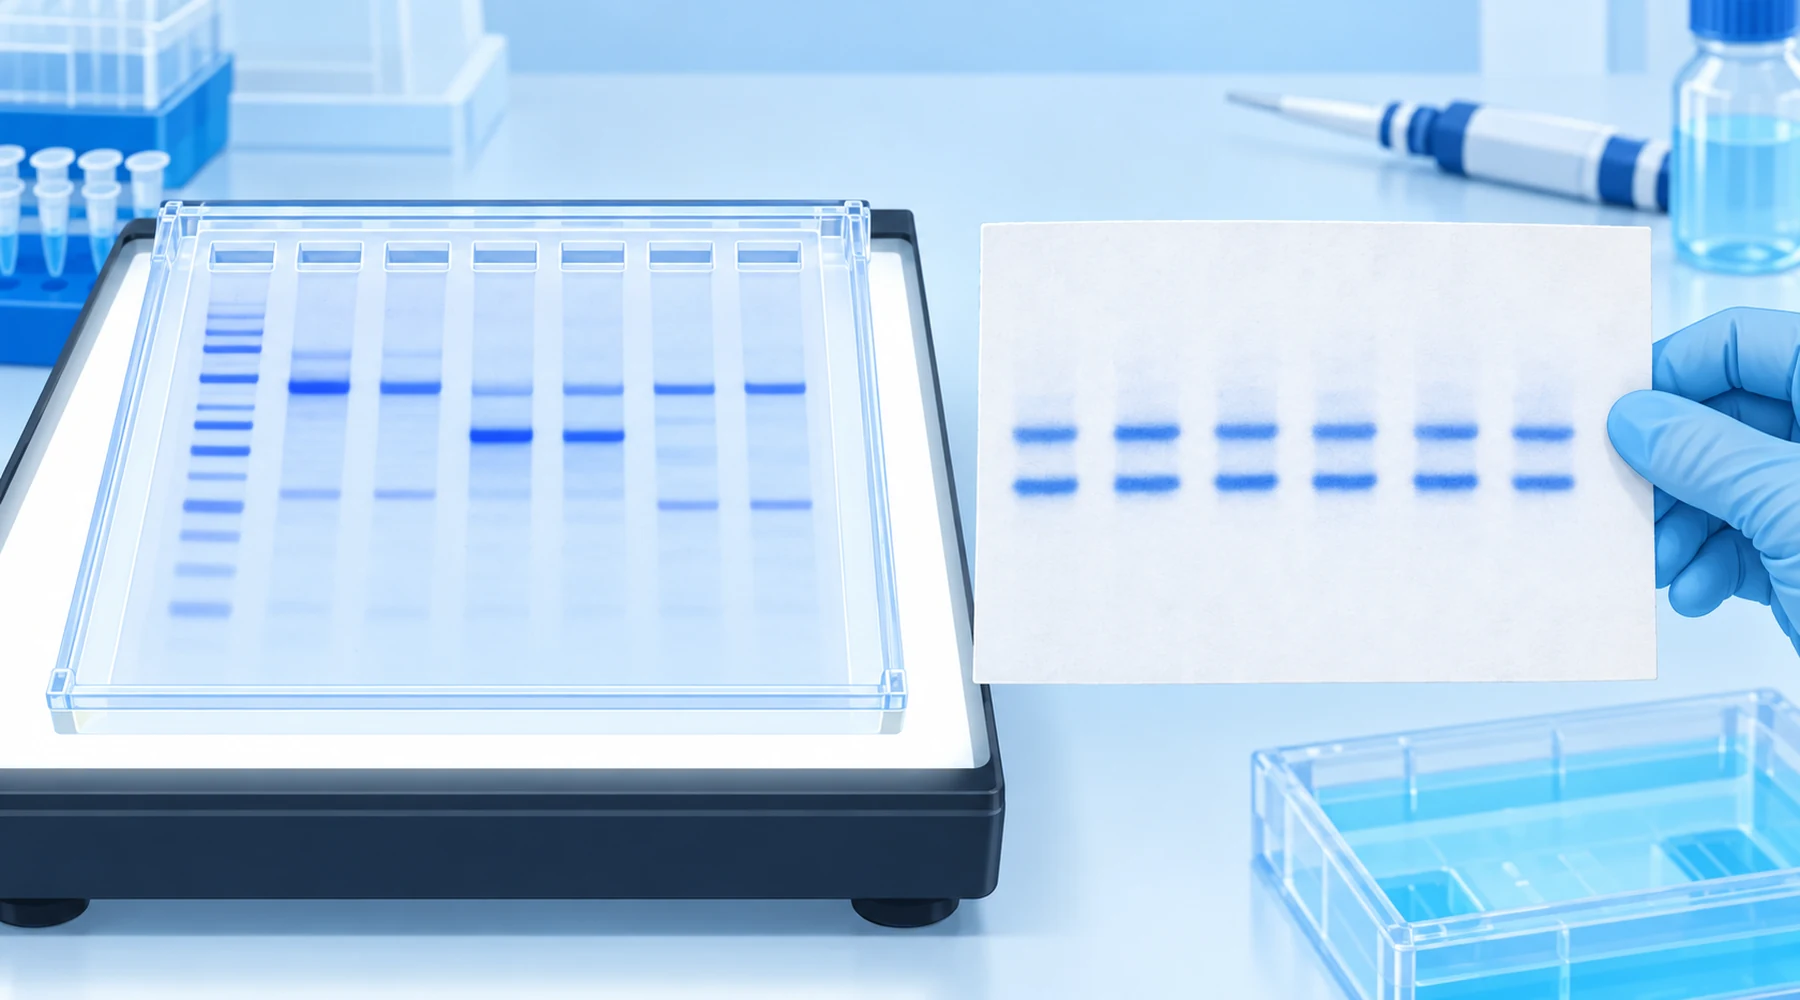
Student przeprowadza elektroforezę w żelu agarozowym, barwi go błękitem metylenowym i nie widzi niczego w miejscu, w którym spodziewał się wyraźnego prążka. Przy sąsiednim stanowisku badacz na stażu podoktorskim barwi membranę Northern blot barwnikiem z tej samej niebieskiej butelki i w trzy minuty uzyskuje ostre prążki rybosomalne. Student uznaje, że elektroforeza się nie udała. Tymczasem wszystko przebiegło prawidłowo. Były to dwa różne zadania, a ten sam barwnik odpowiada na nie z różną czułością, różnym tłem i różnymi zasadami dotyczącymi dalszych etapów.
Barwienie DNA i barwienie RNA błękitem metylenowym opierają się na tej samej chemii, lecz służą różnym celom. W żelu barwnik wskazuje, ile kwasu nukleinowego znajduje się wewnątrz porowatej matrycy. Na membranie pokazuje, czy transfer się powiódł i czy ścieżki zostały równomiernie obciążone próbkami. Gdy to rozróżnienie jest jasne, protokoły, granice wykrywalności i ograniczenia zgodności z dalszymi etapami stają się zrozumiałe.
Krótka odpowiedź
Błękit metylenowy to płaski barwnik kationowy, który wiąże kwasy nukleinowe niekowalencyjnie i odwracalnie poprzez połączenie przyciągania elektrostatycznego do grup fosforanowych, interkalacji między parami zasad oraz oddziaływania z małym rowkiem. Ta odwracalność jest kluczowa. Prążki można wybarwić i obejrzeć w świetle widzialnym, udokumentować, a następnie odbarwić lub oczyścić materiał do klonowania, hybrydyzacji albo ponownej hybrydyzacji z sondą.
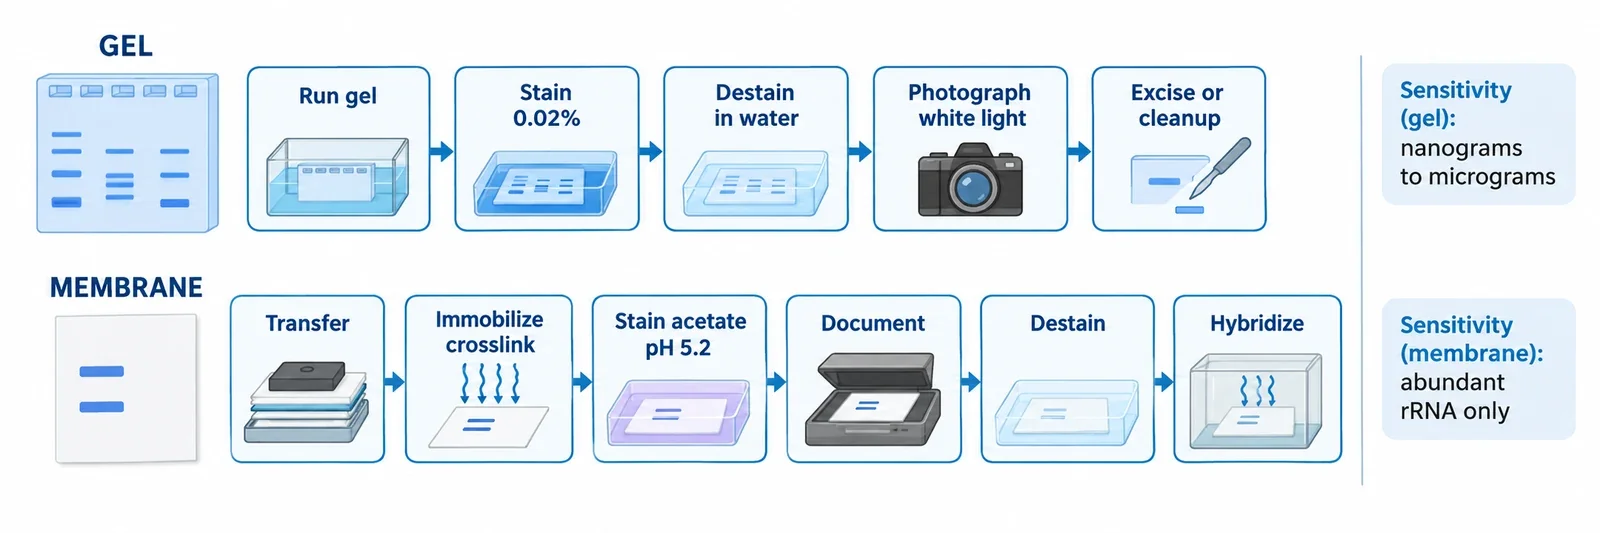
W przypadku barwienia dwuniciowego DNA błękitem metylenowym w żelu agarozowym standardowy szybki przepis to 0.02 procent w/v (200 mikrogramów na mL) w wodzie, około 15 minut barwienia i około 15 minut odbarwiania wodą, z obserwacją na podświetlarce emitującej światło białe. Dla membran klasyczny przepis do Northern blot przewiduje 0.02 do 0.04 procent barwnika w octanie sodu przy pH około 5.2, kilka minut barwienia po transferze i immobilizacji, a następnie płukanie wodą i pełne odbarwienie przed hybrydyzacją. Czułość jest umiarkowana: w dobrych warunkach od dziesiątek do setek nanogramów na prążek w żelu, a zachowawcze wytyczne podają 0.5 do 1 mikrograma. To ilości o rzędy wielkości większe niż w przypadku bromku etydyny i barwników SYBR. Na membranach nie ma użytecznej pojedynczej granicy wykrywalności transkryptu, ponieważ barwnik uwidacznia głównie obficie występujące rybosomalne RNA i całkowitą ilość naniesionego materiału. W żadnym z tych przepisów nie należy zastępować barwnika roztworem suplementu dostępnym w sprzedaży detalicznej. Zwalidowane metody zakładają użycie barwnika czystości analitycznej, określonych buforów i pracę w warunkach wolnych od RNaz, gdy materiałem jest RNA.
Jak działa wiązanie i kiedy może wprowadzać w błąd
Przydatny model składa się z trzech części. Po pierwsze, dodatnio naładowany układ pierścieniowy jest przyciągany do ujemnie naładowanego szkieletu fosforanowego. Badania spektroskopowe wskazują, że przy niskim stężeniu soli dominuje ten składnik elektrostatyczny, natomiast modelowanie i dynamika molekularna wskazują interkalację oraz wiązanie w małym rowku jako stabilne sposoby oddziaływania z dwuniciowym DNA, co podsumowano w badaniu spektroskopowym wiązania błękitu metylenowego z DNA. Po drugie, istnieje pewna preferencja względem GC: modelowanie wskazuje na uprzywilejowanie układów CpG i GpC, a eksperymenty wykazują preferencyjne wiązanie z dupleksami bogatymi w GC w pracy dotyczącej preferencji interkalacyjnych błękitu metylenowego, ale dupleksy AT również wiążą barwnik. Rutynowe barwienie nie jest swoiste względem sekwencji. Po trzecie, jednoniciowe DNA i RNA wiążą barwnik głównie poprzez oddziaływania elektrostatyczne oraz oddziaływania warstwowe z dostępnymi zasadami i regionami dwuniciowymi, dlatego intensywność barwienia zależy od długości, sekwencji i struktury drugorzędowej.
Wynikają z tego dwie konsekwencje. Ponieważ wiązanie jest niekowalencyjne, barwnik się wypłukuje. Prążki w poliakrylamidzie szybko bledną, o ile nie zostaną celowo utrwalone, a specjalny wariant trwałego utrwalania istnieje właśnie dlatego, że zwykłe barwienie jest tymczasowe, jak opisali Soto i Draper dla żeli PAGE. Ponieważ barwnik jest fotouczulaczem, długie, intensywne oświetlanie wybarwionego DNA w obecności tlenu może utleniać guaninę i z czasem powodować nacięcia nici; mechanizm ten szczegółowo opisano w pracy dotyczącej utleniania guaniny fotouczulanego błękitem metylenowym. Krótka obserwacja w świetle białym pozwala uniknąć dobrze znanych uszkodzeń powodowanych przez UV w klasycznych procedurach z bromkiem etydyny, co stanowi rzeczywistą zaletę przy odzyskiwaniu materiału do celów preparatywnych. Światło widzialne jest łagodniejsze, ale nie nieszkodliwe. Jeśli DNA ma zostać użyte do klonowania, należy ograniczyć czas oświetlania. Szersze podstawy fotochemiczne tego zalecenia opisano w artykule o dwóch szlakach fotochemii błękitu metylenowego. Informacje o parze redoks i stanach ładunku wyjaśniających, dlaczego forma utleniona wiąże się z kwasami nukleinowymi, a zredukowana nie, znajdują się w artykule o chemii, strukturze i właściwościach błękitu metylenowego.
Zadanie pierwsze: barwienie wewnątrz żeli
Barwienie żelu odpowiada na jedno pytanie: czy w danym prążku znajduje się wystarczająco dużo kwasu nukleinowego, aby zobaczyć go gołym okiem. Najlepiej scharakteryzowanym przypadkiem jest dwuniciowe DNA w agarozie. Oryginalna metoda barwienia żeli błękitem metylenowym opracowana przez Floresa i współpracowników zwalidowała szybki protokół z użyciem 0.02 procent barwnika w 1 procent agarozie i wykazała możliwość późniejszego skutecznego odzyskania materiału i klonowania. Ten sam protokół dostawcy znajduje się na stronie produktu błękit metylenowy firmy IBI Scientific, która obok siebie przedstawia przepis z 0.04 procent barwnika dla membran oraz szybki wariant dla żeli.
Praktyczna procedura:
- Przeprowadź elektroforezę w żelu w zwykły sposób. Barw po elektroforezie, nie podczas niej, chyba że transfer lub rozdzielczość zostały zwalidowane dla zmodyfikowanej metody.
- Zanurz żel w roztworze błękitu metylenowego o stężeniu 0.02 procent w/v w wodzie destylowanej, delikatnie mieszając, na około 15 minut.
- Odbarwiaj, kilkakrotnie wymieniając wodę, łącznie przez około 15 minut, aż tło matrycy osłabnie, a prążki staną się wyraźne.
- Niezwłocznie wykonaj zdjęcie na podświetlarce emitującej światło białe.
Agaroza i poliakrylamid zachowują się inaczej. Agaroza zatrzymuje barwnik w matrycy, dlatego odbarwianie jest powolnym etapem. Cienkie żele poliakrylamidowe szybko się barwią, ale równie szybko tracą barwnik, co ułatwia preparatywne wycinanie prążków, lecz utrudnia tworzenie dokumentacji archiwalnej. Syntetyczne oligonukleotydy w poliakrylamidzie można zlokalizować z użyciem tego samego przepisu z 0.02 procent barwnika w ciągu 20 do 30 minut, wielokrotnie płucząc wodą, zgodnie z uznanymi metodami PAGE typu Current Protocols. Opisywano bardzo rozcieńczone warianty, około 0.0002 procent w rozcieńczonym TBE, stosowane przez kilka godzin do oligonukleotydów preparatywnych, ale baza dowodowa jest słabsza.
Rozróżnienie DNA i RNA ma znaczenie. Dwuniciowe DNA zapewnia najsilniejsze wiązanie wynikające z jego struktury. RNA i jednoniciowe DNA również się barwią, lecz słabiej i mniej przewidywalnie. W przypadku agarozowych żeli RNA z formaldehydem większość laboratoriów pomija barwienie błękitem w żelu i najpierw przenosi RNA na membranę, a dopiero potem je barwi. W ten sposób słaby sygnał w żelu zostaje zastąpiony wyraźniejszym sygnałem na membranie i dokumentacją ilości naniesionego materiału.
Zadanie drugie: barwienie na membranach
Barwienie membrany odpowiada na inne pytanie: czy transfer się powiódł i czy ścieżki są porównywalne. Klasycznym zastosowaniem jest odwracalne barwienie Northern blot według Herrina i Schmidta, pierwotnie z użyciem 0.04 procent barwnika w 50 mM octanie sodu przy pH 5.0 przez 2 do 3 minut, z płukaniem wodą i usuwaniem barwnika rozcieńczonym SDS w SSPE przed hybrydyzacją.
Powszechnie stosowany współczesny wariant przebiega następująco:
- Przenieś RNA lub zdenaturowane DNA na nylon albo nitrocelulozę, a następnie unieruchom je przez sieciowanie UV lub wygrzewanie, aby próbka nie została utracona podczas barwienia.
- Opcjonalnie, lecz często stosowane: zwilż membranę w 5 procent kwasie octowym przez około 15 minut.
- Barw przez 5 do 10 minut w roztworze błękitu metylenowego o stężeniu 0.02 do 0.04 procent w 0.3 do 0.5 M octanie sodu przy pH około 5.2.
- Płucz i odbarwiaj w wodzie przez 5 do 15 minut, wykonaj dokumentację, a następnie usuń pozostałości barwnika przed hybrydyzacją.
W analizach Northern blot dominuje nylon o dodatnim ładunku. Nitroceluloza również sprawdza się w tej samej procedurze z kwasem octowym i octanem. Obraz służy do potwierdzania transferu, porównywania prążków 28S i 18S (lub 23S i 16S w przypadku bakteryjnego RNA), oznaczania drabinek i wzorców oraz prowadzenia przybliżonej dokumentacji normalizacji względem całkowitego RNA. Opublikowane metody Northern blot obejmują ilościową analizę wybarwionych prążków rybosomalnych w celu kontroli ilości naniesionego materiału, w tym badania z zakresu nauki o mleczarstwie, w których wykorzystano prążki rybosomalne wybarwione błękitem metylenowym do normalizacji. Membrany Southern blot można wizualizować w ten sam sposób, ale barwnik jest znacznie lepiej ugruntowany jako narzędzie kontroli ilości materiału i transferu w Northern blot. Ponadto DNA do Southern blot jest denaturowane przed transferem, więc wartości czułości dla żeli nie mają tu bezpośredniego zastosowania.
Granice wykrywalności i tło: gdzie błękit przegrywa
Poniższe porównanie jest celowo przybliżone. Skuteczność barwienia zależy od stężenia żelu, szerokości prążków, optyki i staranności odbarwiania. Każdą liczbę należy traktować jako rząd wielkości, a nie specyfikację.
| Barwnik i format | Przybliżona wykrywalność na prążek | Interpretacja |
|---|---|---|
| Błękit metylenowy, dsDNA w agarozie | 40 do 250 ng po optymalizacji; zachowawczo 0.5 do 1 mikrograma | Wystarczający przy preparatywnych ilościach materiału i do żeli dydaktycznych. Słaby przy śladowych ilościach w prążkach. |
| Błękit metylenowy, krótkie ssDNA, RNA lub oligonukleotydy w PAGE | Około 0.1 do 0.5 mikrograma | Zależy od długości i struktury. Brak uniwersalnej granicy. |
| Bromek etydyny, dsDNA w agarozie | Około 1 do 10 ng | Około czterokrotnie czulszy niż zoptymalizowane barwienie błękitem w porównaniu Floresa. Wymaga UV. |
| SYBR Green I, dsDNA | Około 60 pg | Wymagane obrazowanie fluorescencyjne. |
| SYBR Gold, DNA i RNA | Około 25 pg | W kilku formatach ponad dziesięciokrotnie czulszy niż bromek etydyny. |
| Barwienie srebrem, kwasy nukleinowe w PAGE | Około 0.3 do 0.9 ng; opisano 100 pg RNA w zoptymalizowanej sekwencji barwienia błękitem, a następnie srebrem | Bardzo czułe, lecz złożone chemicznie i niekorzystne dla odzyskiwania materiału. |
| Błękit toluidynowy, RNA i oligonukleotydy w PAGE | Robocze ilości rzędu setek ng, udokumentowano około 250 ng | Światło widzialne, podobnie jak przy błękicie metylenowym, ale brak ustandaryzowanej granicy porównywalnej ze specyfikacjami SYBR. |
Kontrola tła decyduje o tym, czy umiarkowany sygnał będzie użyteczny. Wolny barwnik jest intensywnie zabarwiony, więc kontrast uzyskuje się przez usunięcie niezwiązanego barwnika bez wypłukiwania związanego. Większe stężenie barwnika rzadko zwiększa czułość. Przede wszystkim wydłuża odbarwianie. Przeprowadź analizę serii rozcieńczeń z użyciem konkretnego żelu, membrany i aparatu, a następnie wykorzystuj wyłącznie zakres, w którym zintegrowana gęstość optyczna pozostaje proporcjonalna do ilości naniesionego materiału. Błękit metylenowy umożliwia półilościową normalizację ilości naniesionego materiału. Nie jest to analiza ilościowa o dużym zakresie dynamicznym, ponieważ pojemność membrany, wydajność transferu, nasycenie i odbarwianie różnią się między ścieżkami.
Ograniczenia zgodności: co można zrobić po barwieniu
Możliwość klonowania po barwieniu błękitem została wykazana. Flores i współpracownicy wycinali wybarwione prążki agarozowe, odzyskiwali DNA, przeprowadzali ligację i transformację, uzyskując lepsze wyniki klonowania niż po barwieniu bromkiem etydyny z użyciem UV. Prawdopodobną przyczyną jest mniejsze uszkodzenie światłem, a nie korzystne działanie samego barwnika. Ogranicz ekspozycję na światło białe i oczyść odzyskane DNA standardową metodą ekstrakcji z żelu.
Dowody dotyczące PCR i sekwencjonowania są skromniejsze. Pozostałości barwnika wiążą kwasy nukleinowe, dlatego przed etapami enzymatycznymi należy odbarwić materiał i go oczyścić. Można oczekiwać, że prawidłowo oczyszczone DNA z żelu barwionego błękitem będzie odpowiednie, ale tolerancja na bezpośrednio przeniesione pozostałości barwnika nie została dobrze określona dla różnych polimeraz i metod sekwencjonowania. Nie należy jej zakładać.
Hybrydyzacja na membranie jest zgodna z barwieniem pod warunkiem ścisłego zachowania kolejności: transfer, immobilizacja, barwienie, dokumentacja, odbarwianie, hybrydyzacja. Na tej sekwencji opiera się metoda Herrina i Schmidta. Barwienie przed transferem lub pominięcie odbarwiania stanowi inną metodę i wymaga osobnej walidacji. Po usunięciu barwnika standardowe usuwanie sondy i ponowna hybrydyzacja przebiegają normalnie. Informacje o barwieniu na poziomie komórkowym z użyciem tej samej rodziny barwników oraz o tym, dlaczego zasady dotyczące utrwalonych rozmazów nie mają zastosowania do metod pracy z żywymi komórkami, można znaleźć w atlasie barwienia mikroskopowego.
Wycinanie prążków sprawdza się w preparatywnych żelach agarozowych i w przypadku oligonukleotydów rozdzielanych metodą PAGE, zlokalizowanych za pomocą błękitu, pod warunkiem unikania wariantu trwałego utrwalania. Elektroelucja po odbarwieniu jest chemicznie uzasadniona dla barwnika wiążącego odwracalnie, ale kontrolowanych danych o wydajności dotyczących konkretnie błękitu metylenowego jest niewiele. Po elucji należy odsolić materiał lub go wytrącić.
Powtarzające się problemy
Słabe prążki w żelu zwykle oznaczają zbyt małą masę materiału dla barwienia kolorymetrycznego, szczególnie w przypadku krótkich jednoniciowych kwasów nukleinowych lub RNA. Nanieś więcej materiału, użyj świeżego barwnika, wydłuż barwienie przed zwiększeniem stężenia i wcześniej zakończ odbarwianie. Jednolicie niebieski żel bez kontrastu zwykle oznacza nadmierne barwienie lub zbyt mało wymian wody. Blaknięcie prążków PAGE jest spodziewanym zjawiskiem chemicznym, a nie oznaką nieudanego barwienia. Fotografuj szybko. Nierównomierne tło membrany wskazuje na zagięcia, pęcherzyki, odciski palców, nierównomierne mieszanie lub nierównomierny transfer. Bez kontroli hybrydyzacji nie należy interpretować tego jako różnic w ilości naniesionego materiału. Rozmyty, słaby wzór prążków rybosomalnych może oznaczać degradację, ale także niepełny transfer, zbyt małą ilość całkowitego RNA (typowo na ścieżkę nanosi się od kilku do kilkudziesięciu mikrogramów) lub nadmierne odbarwianie. Barwnik uwidacznia obficie występujące rybosomalne RNA. Nie wskazuje konkretnego transkryptu. To zadanie sondy.
Bezpieczeństwo i postępowanie bez przesadnych deklaracji
Błękit metylenowy jest prostszy w użyciu niż bromek etydyny, ale nie jest nieszkodliwy. Aktualna karta charakterystyki MilliporeSigma klasyfikuje barwnik jako substancję o ostrej toksyczności doustnej kategorii 4, szkodliwą po połknięciu, z wymogiem usuwania odpadów zatwierdzoną drogą zgodnie z kartą charakterystyki błękitu metylenowego Sigma-Aldrich. Bromek etydyny ma poważniejsze ostrzeżenia dotyczące genotoksyczności, w tym podejrzenie wpływu na komórki rozrodcze, wskazane w jego karcie charakterystyki Sigma-Aldrich, a zawierające go żele i roztwory są zwykle wydzielane jako niebezpieczne odpady chemiczne, jak zaznaczono w przewodniku Thermo Fisher po barwnikach kwasów nukleinowych. W obu przypadkach należy przestrzegać kart charakterystyki i zasad obowiązujących w instytucji. Suchy barwnik przechowuj szczelnie zamknięty i chroń przed wilgocią, roztwór roboczy wykorzystuj ponownie tylko w zakresie dopuszczonym przez protokół, wybarwione membrany przechowuj na sucho między arkuszami bibuły filtracyjnej, a żele fotografuj, zanim prążki rozmyją się wskutek dyfuzji.
Zapamiętaj prostą zasadę przy stanowisku laboratoryjnym. Żele służą do sprawdzania widoczności dużych ilości materiału w świetle białym. Membrany służą do sprawdzania transferu i ilości naniesionego materiału, zanim sonda wykona czułą detekcję. Jeden barwnik służy obu celom, z umiarkowaną czułością, odwracalnym wiązaniem i ścisłą kolejnością czynności.