
Artikel
Methyleenblauw voor DNA- en RNA-kleuring: toepassingen in gels en op membranen
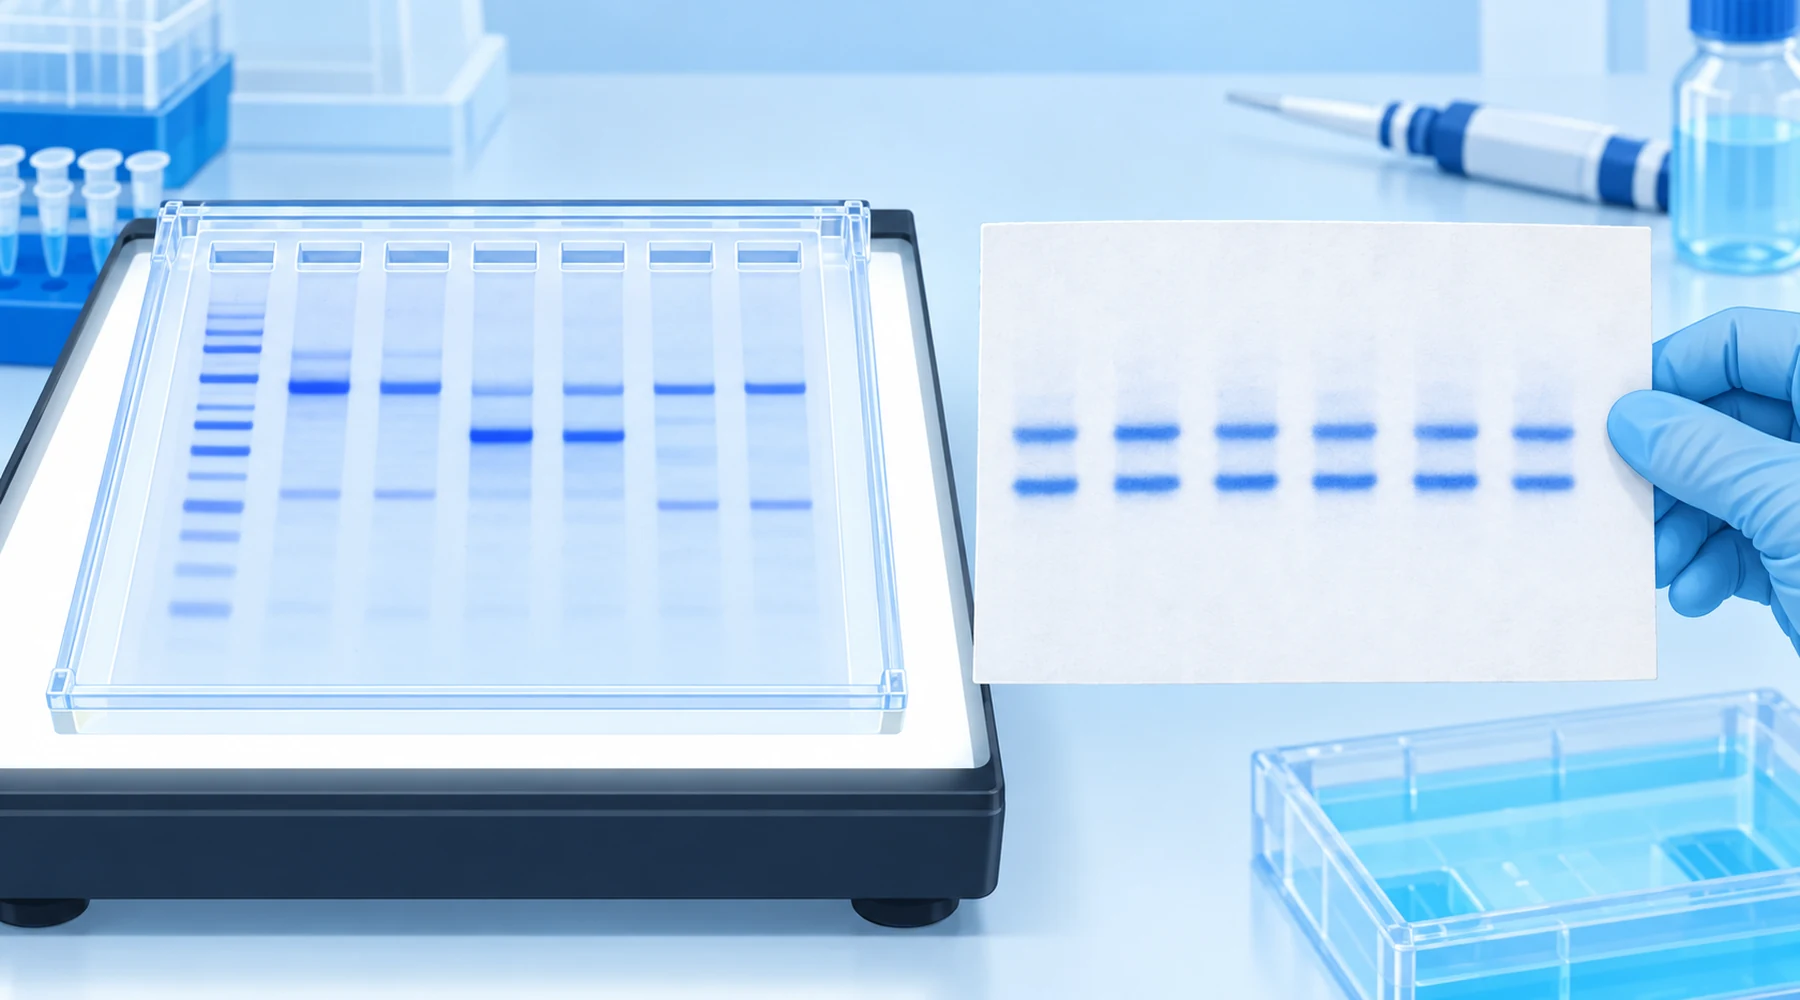
Een student voert een elektroforese op een agarosegel uit, kleurt de gel met methyleenblauw en ziet niets waar een duidelijke band werd verwacht. Aan de volgende werkplek kleurt een postdoc een Northern-membraan met hetzelfde blauwe flesje en krijgt binnen drie minuten scherpe ribosomale banden. De student concludeert dat de gel mislukt is. De gel is niet mislukt. De twee toepassingen verschilden, en dezelfde kleurstof beantwoordt die verschillende vragen met een andere gevoeligheid, een andere achtergrond en andere regels voor wat daarna gebeurt.
DNA-kleuring en RNA-kleuring met methyleenblauw delen dezelfde chemie, maar niet hetzelfde doel. In een gel laat de kleurstof zien hoeveel nucleïnezuur zich in een poreuze matrix bevindt. Op een membraan laat de kleurstof zien of de overdracht is gelukt en of de banen gelijkmatig zijn beladen. Zodra dat onderscheid duidelijk is, vallen de protocollen, detectiegrenzen en compatibiliteitsgrenzen op hun plaats.
Het korte antwoord
Methyleenblauw is een vlakke, kationische kleurstof die niet-covalent en reversibel aan nucleïnezuren bindt, via een combinatie van elektrostatische aantrekking tot fosfaat, intercalatie tussen basenparen en binding in de kleine groeve. Die reversibiliteit is essentieel. Banden kunnen met zichtbaar licht worden bekeken na kleuring, worden vastgelegd en vervolgens worden ontkleurd, of het materiaal kan worden gezuiverd voor klonering, hybridisatie of een nieuwe probing.
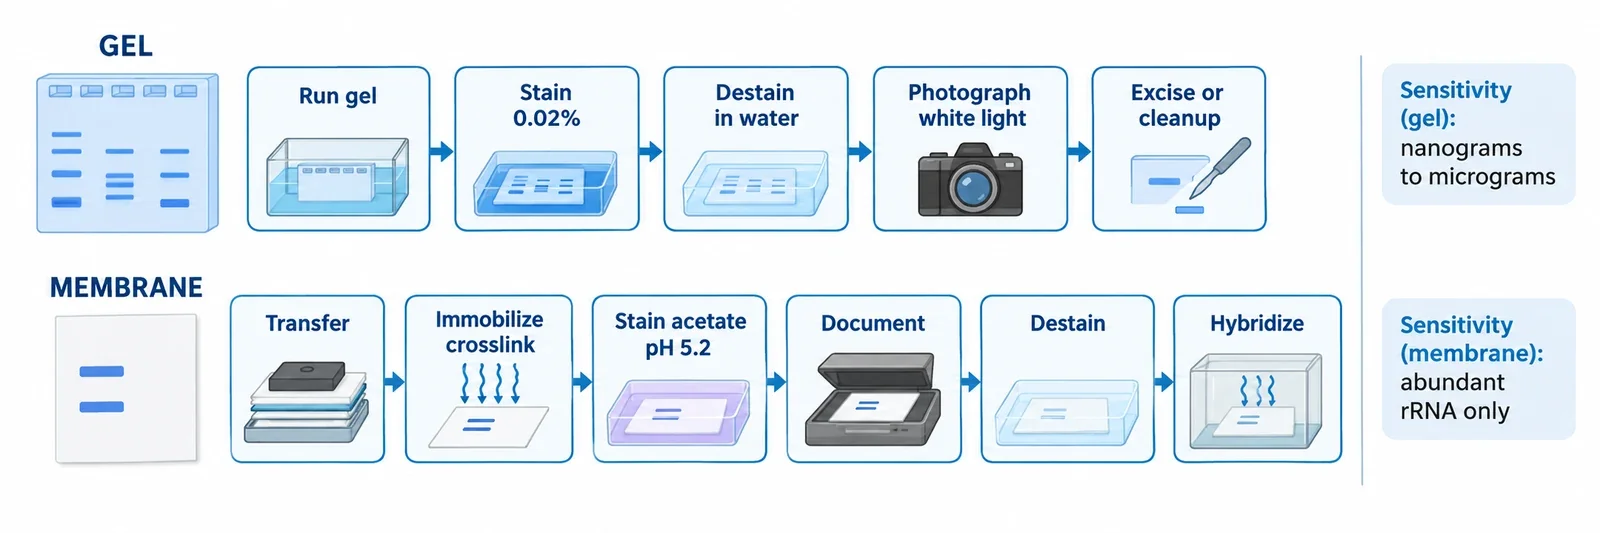
Voor kleuring van dubbelstrengs DNA met methyleenblauw in agarosegels bestaat het standaard snelle protocol uit 0.02 procent w/v (200 microgram per mL) in water, ongeveer 15 minuten kleuren en ongeveer 15 minuten ontkleuren met water, met beoordeling op een lichtbak met wit licht. Voor membranen gebruikt het klassieke Northern-blotprotocol 0.02 tot 0.04 procent kleurstof in natriumacetaat rond pH 5.2, enkele minuten kleuren na overdracht en immobilisatie, gevolgd door spoelen met water en volledige ontkleuring vóór hybridisatie. De gevoeligheid is beperkt: tientallen tot honderden nanogram per gelband onder goede omstandigheden, terwijl conservatieve richtlijnen 0.5 tot 1 microgram vermelden. Dat ligt orden van grootte boven de detectiegrenzen van ethidiumbromide en SYBR-kleurstoffen. Op membranen is er geen bruikbare detectiegrens voor een afzonderlijk transcript, omdat de kleuring vooral het overvloedige ribosomale RNA en de totale beladen hoeveelheid materiaal laat zien. Gebruik in geen van beide protocollen een vrij verkrijgbare supplementoplossing als vervanging. Gevalideerde methoden gaan uit van kleurstof van analytische kwaliteit, buffers met een vastgelegde samenstelling en RNase-vrij werken wanneer RNA wordt gebruikt.
Hoe de binding werkt en waar die misleidend kan zijn
Het bruikbare model bestaat uit drie onderdelen. Ten eerste wordt het positief geladen ringsysteem aangetrokken door de negatief geladen fosfaatruggengraat. Spectroscopisch onderzoek wijst erop dat deze elektrostatische component bij lage zoutconcentraties overheerst, terwijl modellering en moleculaire dynamica intercalatie en binding in de kleine groeve als stabiele bindingswijzen voor dubbelstrengs DNA ondersteunen, zoals samengevat in een spectroscopische studie van de binding van methyleenblauw aan DNA. Ten tweede bestaat er enige voorkeur voor GC: modellering geeft de voorkeur aan CpG- en GpC-stappen, en experimenten melden een voorkeursbinding aan GC-rijke duplexen in onderzoek naar intercalatievoorkeuren van methyleenblauw, maar ook AT-duplexen binden de kleurstof. Routinematige kleuring is niet sequentiespecifiek. Ten derde binden enkelstrengs DNA en RNA voornamelijk via elektrostatische interacties en stapeling met toegankelijke basen en duplexregio's. Daarom varieert de kleuringsintensiteit met de lengte, sequentie en secundaire structuur.
Daaruit volgen twee consequenties. Omdat de binding niet-covalent is, wordt de kleurstof uitgewassen. Banden in polyacrylamide vervagen snel tenzij ze doelbewust worden gefixeerd. Er bestaat juist een speciale variant met permanente fixatie omdat gewone kleuring tijdelijk is, zoals beschreven door Soto en Draper voor PAGE-gels. Omdat de kleurstof een fotosensibilisator is, kan langdurige, sterke belichting van gekleurd DNA in aanwezigheid van zuurstof guanine oxideren en uiteindelijk enkelstrengsbreuken veroorzaken. Dit mechanisme wordt uitvoerig beschreven in onderzoek naar door methyleenblauw gesensibiliseerde guanineoxidatie. Kort bekijken onder wit licht vermijdt de bekende UV-schade van klassieke werkwijzen met ethidiumbromide. Dat is een daadwerkelijk voordeel bij preparatieve terugwinning. Zichtbaar licht is milder, niet onschadelijk. Houd de belichting kort als het DNA wordt gekloneerd. Zie voor de bredere fotochemische achtergrond van die waarschuwing de twee routes in de fotochemie van methyleenblauw. Zie voor het redoxpaar en de ladingstoestanden die verklaren waarom de geoxideerde vorm bindt en de gereduceerde vorm niet de chemie van de structuur en eigenschappen van methyleenblauw.
Toepassing één: kleuring in gels
Gelkleuring beantwoordt één vraag: zit er voldoende nucleïnezuur in deze band om die met het blote oog te zien? Dubbelstrengs DNA in agarose is het best onderzochte geval. De oorspronkelijke gelmethode met methyleenblauw van Flores en collega's valideerde het snelle protocol met 0.02 procent op 1 procent agarose en toonde aan dat succesvolle terugwinning en klonering daarna mogelijk waren. Hetzelfde leveranciersprotocol staat op de productpagina voor methyleenblauw van IBI Scientific, waar het membraanprotocol met 0.04 procent en de snelle gelvariant naast elkaar worden vermeld.
Praktische werkwijze:
- Voer de gelelektroforese zoals gebruikelijk uit. Kleur na de elektroforese, niet tijdens de elektroforese, tenzij de overdracht of resolutie voor een aangepaste methode is gevalideerd.
- Dompel de gel onder in 0.02 procent w/v methyleenblauw in gedestilleerd water en beweeg deze voorzichtig gedurende ongeveer 15 minuten.
- Ontkleur met meerdere verversingen van het water, in totaal ongeveer 15 minuten, totdat de achtergrondkleuring van de matrix afneemt en de banden duidelijk zichtbaar zijn.
- Fotografeer direct op een lichtbak met wit licht.
Agarose en polyacrylamide gedragen zich verschillend. Agarose houdt kleurstof vast in de matrix, waardoor ontkleuren de trage stap is. Dunne polyacrylamidegels kleuren snel, maar verliezen de kleurstof ook snel. Dat helpt bij preparatief uitsnijden, maar bemoeilijkt archivering. Synthetische oligonucleotiden in polyacrylamide kunnen met hetzelfde protocol met 0.02 procent in 20 tot 30 minuten zichtbaar worden gemaakt door herhaaldelijk met water te wassen, volgens gevestigde PAGE-methoden zoals beschreven in Current Protocols. Er zijn zeer verdunde varianten rond 0.0002 procent in verdunde TBE beschreven voor preparatieve oligo's gedurende enkele uren, maar de onderbouwing daarvan is zwakker.
Het verschil tussen DNA en RNA is belangrijk. Dubbelstrengs DNA geeft de sterkste structuurgebonden binding. RNA en enkelstrengs DNA worden ook gekleurd, maar zwakker en minder voorspelbaar. Bij formaldehyde-agarosegels voor RNA slaan de meeste laboratoria de blauwe kleuring in de gel over en brengen ze het RNA eerst over op een membraan, dat vervolgens wordt gekleurd. Daarmee wordt een zwak gelsignaal ingeruild voor een scherper membraansignaal en een registratie van de belading.
Toepassing twee: kleuring op membranen
Membraankleuring beantwoordt een andere vraag: is de overdracht gelukt en zijn de banen vergelijkbaar? De klassieke toepassing is de reversibele Northern-blotkleuring van Herrin en Schmidt, oorspronkelijk met 0.04 procent kleurstof in 50 mM natriumacetaat bij pH 5.0 gedurende 2 tot 3 minuten, gevolgd door spoelen met water. De kleurstof kan vóór hybridisatie worden verwijderd met verdunde SDS in SSPE.
De veelgebruikte moderne variant verloopt als volgt:
- Breng RNA of gedenatureerd DNA over op nylon of nitrocellulose en immobiliseer het vervolgens door UV-crosslinking of verhitting, zodat het monster niet verloren gaat tijdens de kleuring.
- Optioneel, maar gebruikelijk: bevochtig het membraan ongeveer 15 minuten in 5 procent azijnzuur.
- Kleur 5 tot 10 minuten in 0.02 tot 0.04 procent methyleenblauw in 0.3 tot 0.5 M natriumacetaat rond pH 5.2.
- Spoel en ontkleur 5 tot 15 minuten in water, leg het resultaat vast en verwijder vervolgens de resterende kleurstof vóór hybridisatie.
Bij Northern-blots wordt vooral positief geladen nylon gebruikt. Nitrocellulose werkt ook met dezelfde werkwijze met azijnzuur en acetaat. Het beeld wordt gebruikt om de overdracht te bevestigen, 28S- en 18S-banden te vergelijken (of 23S en 16S bij bacterieel RNA), ladders en standaarden te markeren en een ruwe registratie voor normalisatie op totaal RNA bij te houden. Gepubliceerde Northern-methoden kwantificeren gekleurde ribosomale banden als controle van de belading, waaronder zuivelwetenschappelijk onderzoek dat ribosomale banden gekleurd met methyleenblauw voor normalisatie gebruikte. Southern-membranen kunnen op dezelfde manier zichtbaar worden gemaakt, maar de kleurstof is veel beter ingeburgerd als controle van belading en overdracht bij Northern-blots. Bovendien wordt DNA voor Southern-blots vóór de overdracht gedenatureerd, waardoor gevoeligheidswaarden voor gels niet rechtstreeks van toepassing zijn.
Detectiegrenzen en achtergrond: waar blauw tekortschiet
De onderstaande vergelijking is bewust bij benadering. De prestaties van een kleuring hangen af van het gelpercentage, de bandbreedte, de optiek en zorgvuldig ontkleuren. Beschouw elk getal als een orde van grootte, niet als een specificatie.
| Kleuring en toepassing | Geschatte detectie per band | Interpretatie |
|---|---|---|
| Methyleenblauw, dsDNA in agarose | 40 tot 250 ng bij optimalisatie; 0.5 tot 1 microgram conservatief | Voldoende voor preparatieve hoeveelheden en gels voor onderwijs. Zwak bij banden met zeer weinig materiaal. |
| Methyleenblauw, kort ssDNA of RNA of oligo's in PAGE | Ongeveer 0.1 tot 0.5 microgram | Afhankelijk van lengte en structuur. Geen universele grens. |
| Ethidiumbromide, dsDNA in agarose | Ongeveer 1 tot 10 ng | Ongeveer viermaal gevoeliger dan geoptimaliseerd blauw in de vergelijking van Flores. Vereist UV. |
| SYBR Green I, dsDNA | Ongeveer 60 pg | Fluorescentiebeeldvorming vereist. |
| SYBR Gold, DNA en RNA | Ongeveer 25 pg | In verschillende toepassingen meer dan tienmaal gevoeliger dan ethidiumbromide. |
| Zilverkleuring, nucleïnezuren in PAGE | Ongeveer 0.3 tot 0.9 ng; 100 pg RNA gemeld bij een geoptimaliseerde opeenvolging van blauw- en zilverkleuring | Zeer gevoelig, maar chemisch bewerkelijk en ongeschikt voor terugwinning. |
| Toluidineblauw, RNA en oligo's in PAGE | Werkbare hoeveelheden van honderden ng, ongeveer 250 ng gedocumenteerd | Zichtbaar licht zoals bij methyleenblauw, maar geen gestandaardiseerde grens die vergelijkbaar is met SYBR-specificaties. |
Achtergrondbeheersing bepaalt of het beperkte signaal bruikbaar is. Vrije kleurstof is intens gekleurd, dus contrast ontstaat door ongebonden kleurstof te verwijderen zonder de gebonden kleurstof weg te nemen. Een hogere kleurstofconcentratie levert zelden meer gevoeligheid op. Ze verlengt vooral de ontkleuringstijd. Test een verdunningsreeks met precies de gebruikte gel, het membraan en de camera, en gebruik alleen het bereik waarin de geïntegreerde dichtheid evenredig blijft met de ingebrachte hoeveelheid. Methyleenblauw ondersteunt semikwantitatieve normalisatie van de belading. Het is geen kwantitatieve bepaling met een groot dynamisch bereik, omdat membraancapaciteit, overdrachtsefficiëntie, verzadiging en ontkleuring per baan variëren.
Compatibiliteitsgrenzen: wat na kleuring mogelijk blijft
Klonering na blauwe kleuring is aangetoond. Flores en collega's sneden gekleurde agarosebanden uit, wonnen het DNA terug en voerden ligatie en transformatie uit. Zij rapporteerden betere klonering dan na kleuring met ethidiumbromide en UV-belichting. De waarschijnlijke reden is minder lichtschade, niet een voordeel van de kleurstof zelf. Houd de blootstelling aan wit licht kort en zuiver het teruggewonnen DNA met een gebruikelijke gelextractiemethode.
Voor PCR en sequencing is de onderbouwing beperkter. Achtergebleven kleurstof bindt aan nucleïnezuren, dus ontkleur en zuiver vóór enzymatische stappen. Naar verwachting werkt goed gezuiverd DNA uit een blauw gekleurde gel, maar de tolerantie voor directe carry-over is voor verschillende polymerasen en sequencingchemieën niet goed gekwantificeerd. Ga daar niet zonder meer van uit.
Blothybridisatie is compatibel als de volgorde strikt wordt aangehouden: overdragen, immobiliseren, kleuren, vastleggen, ontkleuren, hybridiseren. Die volgorde vormt het ontwerp van Herrin en Schmidt. Kleuren vóór overdracht of het overslaan van de ontkleuring is een andere methode en vereist eigen validatie. Na verwijdering van de kleurstof kunnen standaardprocedures voor het verwijderen van probes en opnieuw proben normaal worden uitgevoerd. Zie voor kleuring op celniveau met dezelfde kleurstoffamilie, en waarom de logica voor gefixeerde preparaten niet overdraagbaar is op methoden voor levende cellen, de atlas voor microscopische kleuring.
Het uitsnijden van banden werkt voor preparatieve agarose en voor PAGE-oligo's die met blauw zichtbaar zijn gemaakt, mits de variant met permanente fixatie wordt vermeden. Elektro-elutie na ontkleuring is chemisch aannemelijk voor een reversibel bindende stof, maar gecontroleerde opbrengstgegevens specifiek voor methyleenblauw zijn schaars. Ontzout of precipiteer na elutie.
Terugkerende problemen
Zwakke gelbanden betekenen meestal dat er te weinig massa aanwezig is voor een colorimetrische kleuring, vooral bij korte enkelstrengs doelmoleculen of RNA. Breng meer materiaal aan, gebruik verse kleurstof, verleng de kleuring voordat je de concentratie verhoogt en stop eerder met ontkleuren. Een volledig blauwe gel zonder contrast wijst meestal op overmatige kleuring of te weinig verversingen van het water. Vervagende PAGE-banden zijn een verwacht chemisch verschijnsel, geen mislukte kleuring. Fotografeer snel. Een ongelijkmatige membraanachtergrond wijst op vouwen, luchtbellen, vingerafdrukken, ongelijkmatige beweging of plaatselijk onvolledige overdracht. Interpreteer dit zonder hybridisatiecontrole niet als ongelijke belading. Een uitgesmeerd, zwak ribosomaal patroon kan op afbraak wijzen, maar ook op onvolledige overdracht, te weinig totaal RNA (gebruikelijke banen bevatten enkele tot tientallen microgram) of te sterke ontkleuring. De kleurstof toont het overvloedige ribosomale RNA. Ze toont geen specifiek transcript. Dat is de taak van de probe.
Veiligheid en omgang zonder overdreven claims
Methyleenblauw is eenvoudiger te hanteren dan ethidiumbromide, maar het is niet onschadelijk. Een actueel veiligheidsinformatieblad van MilliporeSigma deelt de kleurstof in bij acute orale toxiciteit, categorie 4: schadelijk bij inslikken. Afvoer moet via een goedgekeurde afvalroute plaatsvinden, volgens het veiligheidsinformatieblad voor methyleenblauw van Sigma-Aldrich. Voor ethidiumbromide gelden strengere waarschuwingen voor genotoxiciteit, waaronder vermoedelijke effecten op kiemcellen in het veiligheidsinformatieblad voor ethidiumbromide van Sigma-Aldrich. Gels en oplossingen ervan worden doorgaans apart ingezameld als gevaarlijk chemisch afval, zoals vermeld in de gids voor nucleïnezuurkleuringen van Thermo Fisher. Volg voor beide stoffen het veiligheidsinformatieblad en de regels van de instelling. Bewaar droge kleurstof goed afgesloten en droog, hergebruik werkoplossingen alleen voor zover het protocol dat toestaat, bewaar gekleurde membranen droog tussen vellen filtreerpapier en fotografeer gels voordat de banden door diffusie vervagen.
Onthoud deze kernzin voor aan de labtafel. Gels toetsen de zichtbaarheid bij een hoge belading onder wit licht. Membranen toetsen overdracht en belading voordat de probe het gevoelige detectiewerk doet. Eén kleurstof dient beide doelen, met beperkte gevoeligheid, reversibele binding en een strikte volgorde van handelingen.