
Artikkel
Metylenblått som antioksidant og prooksidant: hva endrer utfallet?
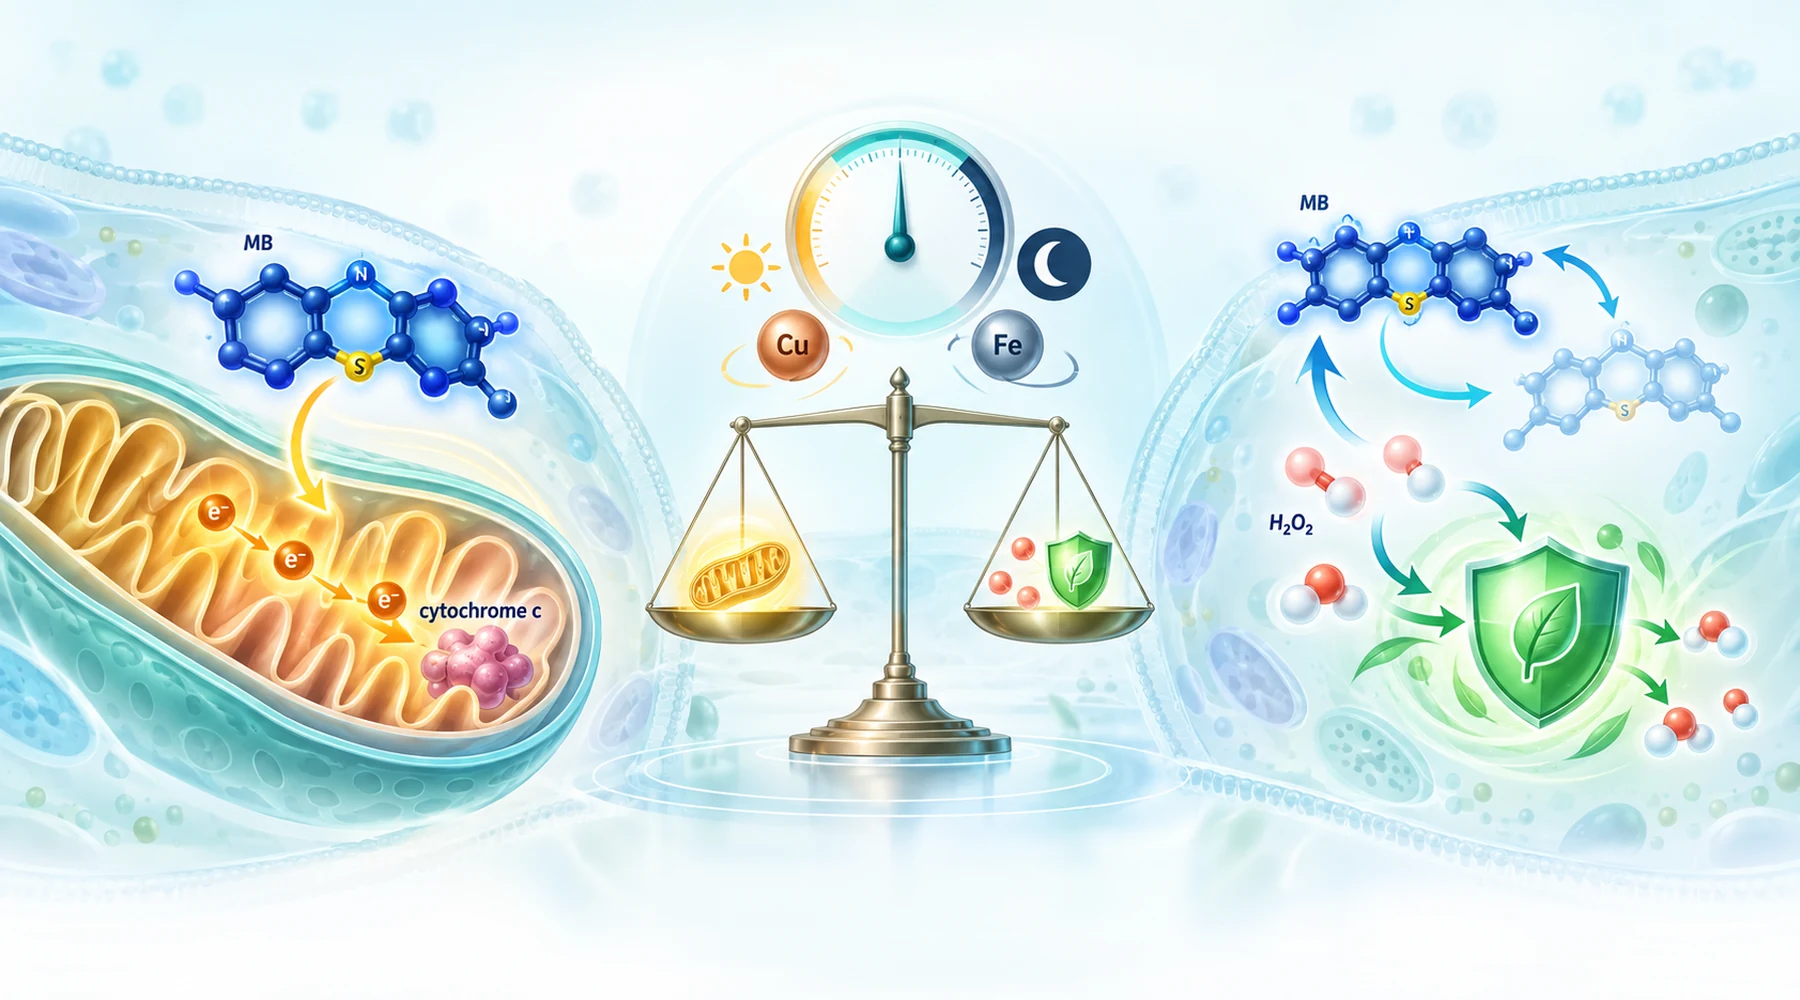
Tenk deg at to laboratorier tester det samme blå fargestoffet og rapporterer motsatte resultater. I det første får isolerte hjernemitokondrier bedre respirasjon og produserer mer ATP. I det andre frigjør det samme preparatet langt mer hydrogenperoksid. Begge rapportene er riktige. De beskriver den samme syklusen sett fra hver sin ende, og forvirringen begynner når leserne behandler den ene enden som hele historien.
Feilen er å spørre hvilken merkelapp som passer på molekylet. Metylenblått er et mellomledd for elektroner, slik oversikten over dets cellebiologiske mål viser i en bredere sammenheng. Oksidert fargestoff tar imot elektroner og blir til fargeløst leukoMB. LeukoMB gir elektronene videre og blir blått igjen. Det du observerer, avhenger av hvem som avgir elektronene, hvem som tar imot dem, og om systemet kan fjerne hydrogenperoksidet som dannes underveis. Det relevante spørsmålet er aldri om fargestoffet er en antioksidant. Det er hva betingelsene lar dette mellomleddet gjøre.
Syklusen som gir begge sider
I mørket er kjernesyklusen kort. NADH, NADPH eller bærere i respirasjonskjeden reduserer fargestoffet. Det reduserte fargestoffet har deretter konkurrerende reaksjonsveier. Det kan overføre elektroner til cytokrom c og støtte elektronstrømmen rundt et skadet kompleks, noe som forklarer hvorfor respirasjon og membranpotensial delvis gjenopprettes når kompleks I eller III blokkeres. Eller det kan overføre elektroner direkte til oksygen, noe som regenererer den blå formen og danner hydrogenperoksid. Fordi fargestoffet regenereres, kan en liten mengde gjenta denne syklusen mange ganger, med et jevnt forbruk av reduserende ekvivalenter og en jevn produksjon av peroksid.
To ytterligere forgreninger endrer kjemien fullstendig. Fritt kobber eller jern omdanner dette diffusible peroksidet til langt mer ødeleggende lokale oksidanter gjennom reaksjoner av Fenton-typen. Rødt lys åpner en separat fotokjemisk gren der eksitert fargestoff overfører energi til oksygen og danner singlettoksygen, en kjemisk art som omtales i detalj i forklaringen av fotokjemi av type I og type II. Redokssykling i mørket, metallforsterket skade og fotodynamisk skade er tre forskjellige mekanismer som tilfeldigvis deler ett utgangsmolekyl.
Matrise over betingelser og utfall
Tabellen nedenfor er verdt å ta vare på. Hver rad viser én variabel, hvilken retning den trekker i, og forsøket bak. Positiv betyr en beskyttende effekt eller et forbedret måleresultat. Negativ betyr mer oksidant, større uttømming eller mer skade.
| Betingelse | Utfallstendens | Hva forsøket viste |
|---|---|---|
| Lav konsentrasjon, 0.1 til 1 uM, isolerte mitokondrier | Positiv bioenergetikk pluss mer peroksid | 0.1 uM forbedret oksygenforbruket i hjertemitokondrier fra friske og diabetiske rotter; 100 nM til 1 uM gjenopprettet delvis ATP, membranpotensial og kalsiumopptak i blokkerte hjernemitokondrier, mens peroksidfrigjøringen økte under alle betingelser |
| Høyere konsentrasjon, over 5 uM, celler uten glukosetilførsel | Negativt oksidantsignal | Endotelceller oksiderte en generell ROS-probe og mistet redusert glutation over 5 uM når glukose var fraværende; tilsetning av glukose forhindret begge deler |
| Substrater for kompleks I (glutamat pluss malat) | Mer peroksid | Studier av både hjerne- og hjertemitokondrier fant økt peroksidfrigjøring med NADH-koblede substrater |
| Suksinat pluss rotenon, hjertemitokondrier, 0.1 uM | Mindre peroksid i denne protokollen | Den eneste klart antioksidative peroksidmålingen i materialet; merk at protokollen inkluderte rotenon og et annet vev, så substratet alene forklarer ikke resultatet |
| Rødt lys, 20 uM pluss 630 nm | Negativ DNA-skade | Ingen signifikante lesjoner i mitokondrielt DNA i mørket ved 20 uM; samme konsentrasjon med rødt lys skadet alle testede fragmenter |
| Svært høy konsentrasjon i mørket, 100 uM | Negativ selektiv DNA-skade | Selektive lesjoner i mitokondrielt DNA ved purinrike sekvenser, et sprang fra peroksidsignalet ved nanomolare konsentrasjoner |
| Kobber eller jern pluss NADH, cellefritt DNA | Negative oksidative lesjoner | Kobber rettet skaden mot en hotspot-sekvens i p53; jern-EDTA ga omfattende skade; katalase og metallkelatorer blokkerte de respektive reaksjonsveiene; oksidert guanin økte |
| Glukose til stede, intakte celler | Beskyttende buffring til tross for raskere sykling | Glukose økte reduksjonen av fargestoffet, men senket nettostresset, i samsvar med tilførsel av NADPH fra pentosefosfatveien til resirkulering av antioksidanter |
| Celler med høyt innhold av askorbat | Blandet: askorbat ble forbrukt, probesignalet ble dempet | Fargestoffet oksiderte gradvis intracellulært askorbat selv med glukose til stede, samtidig som det delvis hemmet probeoksidasjon; forsvarsreservene betalte prisen |
| Dyr forbehandlet med rotenon, fargestoff gitt først | Positivt vevsutfall | Forbehandling med fargestoff reduserte rotenoninduserte lesjoner i mitokondrielt DNA i midthjernen hos mus, til tross for økt peroksid i isolerte mitokondrier |
Poenget er mønsteret på tvers av radene. Peroksidproduksjon og biologisk beskyttelse er separate akser. En behandling kan gi et negativt resultat på den første og et positivt resultat på den andre samtidig.
Hvorfor samme dose gir forskjellige svar
Konsentrasjonen bestemmer kapasiteten for elektrontransport, ikke utfallet. Peroksidfrigjøringen fra hjernemitokondrier økte målbart fra 50 nM og oppover i arbeid med intakte hjernemitokondrier, mens tydelig skade på mitokondrielt DNA krevde 100 uM i mørket. Det er omtrent en faktor på to tusen mellom det første signalet og gentoksisitet, men det er ikke en sikkerhetsmargin. Endepunktene, kompartmentene og eksponeringstidene er forskjellige, så tallene markerer ulike fenomener snarere enn punkter på én kurve. Diskusjonen om dose–respons setter denne typen avstand mellom svakt signal og omfattende skade inn i en bredere sammenheng knyttet til hormese.
Substratet bestemmer hvor elektronene kommer inn. NADH-koblede energisubstrater gir fargestoffet rikelig med reduserende ekvivalenter til både den nyttige omkjøringsveien og den sløsende oksygenreaksjonen. Den ofte siterte oppsummeringen om at suksinat gjør fargestoffet antioksidativt mens glutamat gjør det prooksidativt, trekker for vidtrekkende slutninger fra dataene. Betingelsen med suksinat ved peroksidmålingen i hjertestudien inneholdt nemlig også rotenon og brukte et annet vev og en annen dose enn hjernestudien som fant økt peroksid med alle substrater og i alle respirasjonstilstander.
Lys endrer mekanismen, ikke bare størrelsen på effekten. Den tydeligste kontrasten i materialet er at 20 uM i mørket ikke ga noen målbar effekt på mitokondrielle DNA-fragmenter, mens 20 uM under rødt lys skadet dem alle. Den som sammenligner et belyst forsøk med et forsøk i mørket, sammenligner fotokjemi med redokssykling.
Metaller omdanner oksidanten. Uten metaller danner fargestoffets syklus i mørket peroksid, et diffusibelt molekyl som cellene også bruker som signal. Med tilgjengelig kobber eller jern bidrar fargestoff redusert av NADH til metallreduksjon, og det reduserte metallet aktiverer peroksid til arter av hydroksyltypen eller kobberperoksidarter ved siden av DNA. Slik ga cellefrie forsøk med NADH og metallioner både hotspot-selektiv og omfattende DNA-skade fra det samme fargestoffet. Metallhåndteringen i kompartmentet, ikke fargestoffet alene, bestemmer om denne grenen har betydning.
Tilgangen på energisubstrater avgjør om cellen kan betale. I endotelceller eksponert for 2 til 20 uM fargestoff gjorde fjerning av glukose oksidantkostnaden synlig, mens glukosetilførsel fjernet den, selv om glukose også fremskyndet reduksjonen av fargestoffet. Raskere sykling med forsvar som har ressurser, slår langsommere sykling med uttømte forsvar. Betrakt enhver oksidantpåstand som utelater glukose- eller NADPH-status, som ufullstendig.
Vevet bestemmer utrustningen. Endotelceller regenererer NADPH gjennom glukosemetabolismen og har cytosoliske antioksidantreserver. Isolerte mitokondrier har ikke noe av dette. Renset DNA har ikke engang reparasjon. Et resultat i ett preparat sier lite om de andre, og derfor må den planlagte artikkelen om vevsspesifikke responser holde disse systemene atskilt.
Direkte måling er ikke det samme som et påfølgende forsvar
Mye av det som skrives, slår sammen to nivåer som forsøkene holder atskilt. Det ene nivået spør hvor mye oksidant som oppsto. Det andre spør hvordan cellen svarte.
Peroksidanalyser av Amplex-typen ligger nærmest det første nivået, og selv de rapporterer nettofluks, altså produksjon minus nedbrytning minus eksport. Studien av hjernemitokondrier fant endringer på begge sider: mer peroksid ble dannet, og en tilsatt peroksidbolus ble fjernet langsommere. Lenger nedstrøms finner vi glutationoksidasjon, askorbatforbruk, oksidert guanin og DNA-lesjoner som blokkerer polymerase. Hvert trinn legger til biologiske prosesser mellom oksidanten og måleresultatet.
Nrf2-drevne antioksidantenzymer og mitokondriell biogenese hører til det andre nivået. Dette er tilpasningsprogrammer som en mild peroksidpuls kan utløse, og forfatterne av studien om beskyttelse av hjernemitokondrier foreslår nettopp en slik mild stressutløser. Samtidig påpeker de at årsakskjeden via Nrf2 bygger på tidligere arbeid, ikke på deres egen fullstendige demonstrasjon. Beskyttelse som kommer timer senere gjennom nye proteiner, betyr ikke at den innledende kjemien var antioksidativ. Det betyr at en liten prooksidativ hendelse kjøpte et større forsvar. Retningslinjene for å lese slike påstander, inkludert analysebegrensninger og forskjeller mellom preparater, er temaet i veiledningen til å lese forskning på metylenblått.
Hvorfor analyser gir ulike resultater
En generell probe som dihydrofluorescein rapporterer bred probeoksidasjon, ikke en peroksidkonsentrasjon. Den avhenger av peroksidase- og hemkjemi og kan overse en peroksidøkning som en kalibrert Amplex-analyse fanger opp. Studien av hjernemitokondrier viste kraftig økt peroksid uten et tilsvarende superoksidsignal, noe som advarer mot å sitere en antioksidantpåstand basert på ett enkelt fargestoff. Optisk overlapp er et relevant spørsmål for kontrollforsøk, siden fargestoffet absorberer synlig lys nær vanlige eksitasjons- og emisjonsbånd. Men den grundige studien kalibrerte mot kjent peroksid, reduserte eksponeringen for eksitasjonslys med liten endring i signalet og bekreftet langsommere peroksidfjerning med en separat elektrode. Interferens skal kontrolleres, ikke brukes som grunnlag for automatisk avvisning.
Kalsiumresultatet illustrerer det samme behovet for presisjon. Akutt tilførsel av fargestoff endret ikke den totale kalsiumbelastningen før permeabilitetsovergangen i hjertestudien, men forbedret hastigheten på kalsiumopptaket i blokkerte hjernemitokondrier i den diabetesrettede studien av hjertemitokondrier. Ulike endepunkter, ulike systemer, ingen motsetning.
En sjekkliste før du stoler på en konklusjon
Betrakt enhver konklusjon om antioksidativ eller prooksidativ virkning som en rapport om et system, og still fem spørsmål. Ved hvilken konsentrasjon, og i hvilket kompartment? Med hvilken elektrondonor og hvilken konkurrerende akseptor? Belyst eller i mørket, og ved hvilken bølgelengde og dose? Med hvilke tilgjengelige metaller, og med hvilke ressurser til energiforsyning og antioksidantreserver? Og med hvilken analyse, som måler oksidantfluks, skade eller tilpasningsrespons? Endrer du ett av svarene, kan det samme molekylet bevege seg gjennom matrisen fra beskyttende til skadelig uten noe paradoks i det hele tatt.