
Макала
Метилен көгү антиоксидант жана прооксидант катары: натыйжаны эмне өзгөртөт?
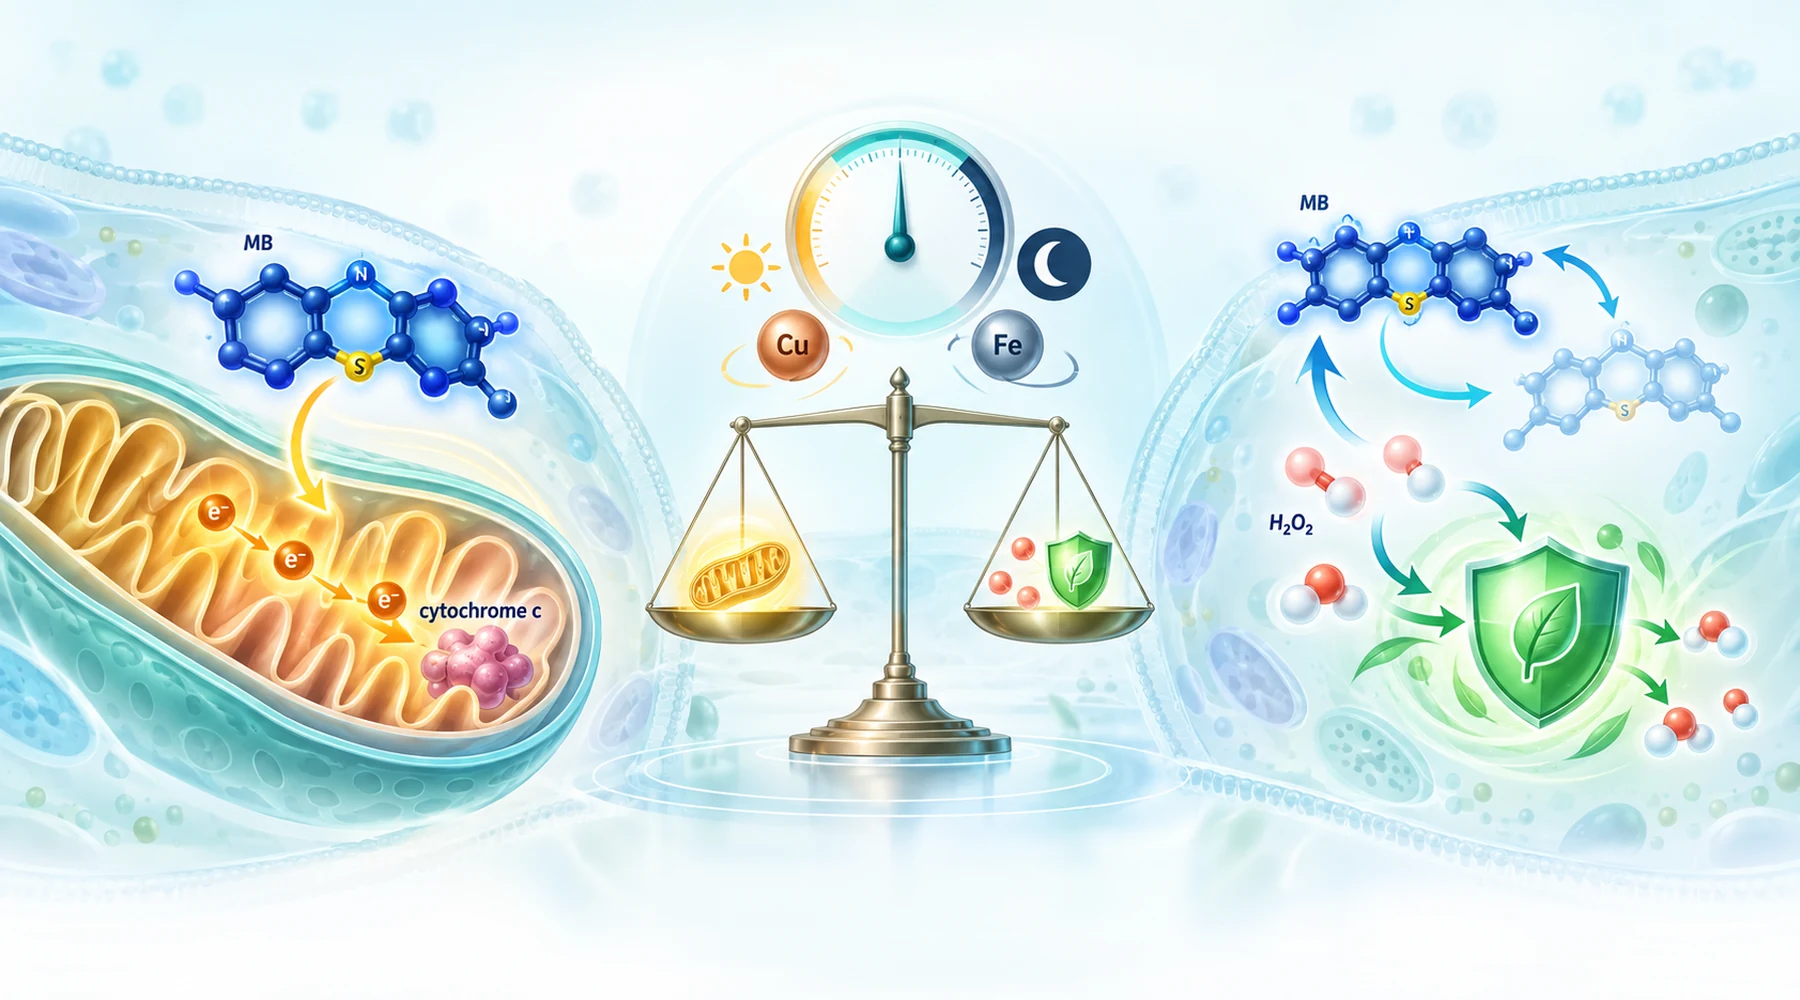
Эки лаборатория бир эле көк боёкту текшерип, бири-бирине карама-каршы натыйжаларды билдиргенин элестетиңиз. Биринчисинде бөлүп алынган мээ митохондриялары жакшыраак дем алып, көбүрөөк ATP өндүрөт. Экинчисинде ошол эле препарат кыйла көбүрөөк суутек пероксидин бөлүп чыгарат. Эки билдирүү тең туура. Алар бир эле циклди эки тарабынан сүрөттөйт, ал эми окурмандар бир тарабын бүт көрүнүш катары кабыл алганда түшүнбөстүк башталат.
Ката — молекулага кайсы аталыш туура келерин сураганда. Метилен көгү электрондорду өткөрүп берүүчү ортомчу болуп саналат; муну анын клетка биологиясындагы буталарынын картасы кеңири контекстте көрсөтөт. Кычкылданган боёк электрондорду кабыл алып, түссүз leucoMB формасына айланат. LeucoMB ал электрондорду андан ары өткөрүп, кайра көк түскө келет. Сиз байкаган нерсе электрондорду ким берерине, ким кабыл аларына жана система жолдо пайда болгон суутек пероксидин жок кыла аларына көз каранды. Маанилүү суроо эч качан боёк антиоксидантпы деген суроо эмес. Маанилүүсү — шарттар бул ортомчуга эмне кылууга мүмкүндүк берет.
Эки тарапты тең пайда кылган цикл
Караңгыда негизги цикл кыска. NADH, NADPH же дем алуу чынжырындагы ташуучулар боёкту калыбына келтирет. Андан соң калыбына келген боёктун бири-бири менен атаандашкан жолдору бар. Ал электрондорду цитохром c ге өткөрүп, бузулган комплексти айланып өтүүчү агымды колдой алат; ошондуктан I же III комплекс бөгөттөлгөндө дем алуу жана мембрана потенциалы жарым-жартылай калыбына келет. Же болбосо электрондорду түздөн-түз кычкылтекке өткөрөт, бул көк форманы кайра жаратып, суутек пероксидин пайда кылат. Боёк кайра калыбына келгендиктен, анын аз өлчөмү бул циклди көп жолу кайталап, калыбына келтирүүчү эквиваленттерди үзгүлтүксүз сарптап, пероксидди үзгүлтүксүз өндүрө алат.
Дагы эки бутак химияны толугу менен өзгөртөт. Эркин жез же темир бул диффузиялана алган пероксидди Фентон тибиндеги реакциялар аркылуу кыйла кыйратуучу жергиликтүү кычкылданткычтарга айлантат. Кызыл жарык өзүнчө фотохимиялык бутакты ачат: анда дүүлүккөн боёк энергияны кычкылтекке өткөрүп, синглеттик кычкылтекти пайда кылат. Бул түр I жана II типтеги фотохимиянын түшүндүрмөсүндө кеңири каралган. Караңгыдагы кычкылдануу-калыбына келүү цикли, металлдар күчөткөн жабыркоо жана фотодинамикалык жабыркоо — баштапкы молекуласы бир болгону менен, үч башка механизм.
Шарттар менен натыйжалардын матрицасы
Төмөнкү таблица — сактап коюуга арзый турган материал. Ар бир сапта бир өзгөрмө, ал натыйжаны кайсы багытка түртөрү жана аны негиздеген тажрыйба берилген. Оң натыйжа коргоочу же жакшырган көрсөткүчтү билдирет. Терс натыйжа кычкылданткычтын көбөйүшүн, запастардын көбүрөөк түгөнүшүн же жабыркоонун күчөшүн билдирет.
| Шарт | Натыйжанын багыты | Тажрыйба эмнени көрсөттү |
|---|---|---|
| Төмөн концентрация, 0.1 ден 1 uM ге чейин, бөлүп алынган митохондриялар | Биоэнергетиканын жакшырышы жана пероксиддин көбөйүшү | 0.1 uM дени сак жана диабети бар келемиштердин жүрөк митохондрияларында кычкылтек керектөөнү жакшырткан; 100 nM ден 1 uM ге чейин бөгөттөлгөн мээ митохондрияларында ATP, мембрана потенциалы жана кальцийди сиңирүү жарым-жартылай калыбына келген, ошол эле учурда бардык шарттарда пероксиддин бөлүнүп чыгышы көбөйгөн |
| Жогорураак концентрация, 5 uM ден жогору, глюкозадан ажыратылган клеткалар | Терс кычкылданткыч сигналы | Глюкоза жок кезде 5 uM ден жогору концентрацияда эндотелий клеткалары жалпы ROS зондун кычкылдантып, калыбына келген глутатионду жоготкон; глюкоза кошуу экөөнүн тең алдын алган |
| I комплекстин субстраттары (глутамат жана малат) | Пероксид көбүрөөк | Мээ жана жүрөк митохондрияларын изилдеген иштердин экөөндө тең NADH менен байланышкан субстраттар пероксиддин бөлүнүп чыгышын көбөйткөн |
| Сукцинат жана ротенон, жүрөк митохондриялары, 0.1 uM | Ошол протоколдо пероксид азыраак | Бул топтомдогу пероксид боюнча ачык антиоксиданттык натыйжа көрсөткөн жалгыз өлчөө; протоколдо ротенон жана башка ткань колдонулганын эске алыңыз, демек муну субстраттын өзү эле түшүндүрбөйт |
| Кызыл жарык, 20 uM жана 630 nm | ДНКнын терс жабыркоосу | Караңгыда 20 uM концентрацияда митохондриялык ДНКнын олуттуу жабыркоосу болгон эмес; ошол эле концентрация кызыл жарык менен бирге текшерилген ар бир фрагментти жабыркаткан |
| Караңгыдагы өтө жогорку концентрация, 100 uM | ДНКнын терс тандалма жабыркоосу | Пуринге бай ырааттуулуктарда митохондриялык ДНКнын тандалма жабыркоосу байкалган; бул наномолярдык пероксид сигналынан кескин башка деңгээл |
| Жез же темир жана NADH, клеткасыз ДНК | Терс кычкылдануу жабыркоолору | Жез жабыркоону p53түн мутациялар көп кездешкен ырааттуулугуна багыттаган; темир–EDTA кеңири жабыркоону жараткан; каталаза жана металл хелаторлору тиешелүү жолдорду бөгөттөгөн; кычкылданган гуанин көбөйгөн |
| Глюкоза бар, бүтүн клеткалар | Циклдин ылдамдашына карабастан коргоочу буферлөө | Глюкоза боёктун калыбына келишин күчөткөн, бирок жалпы стрессти азайткан; бул антиоксиданттарды кайра калыбына келтирүү үчүн пентозофосфат жолу NADPH камсыздай турганына шайкеш |
| Аскорбат менен толукталган клеткалар | Аралаш: аскорбат сарпталган, зонддун сигналы буферленген | Глюкоза бар кезде да боёк клетка ичиндеги аскорбатты акырындап кычкылданткан, ошол эле учурда зонддун кычкылданышын жарым-жартылай басаңдаткан; чыгымды коргонуу запасы көтөргөн |
| Ротенон менен иштетилген жаныбарлар, боёк алдын ала берилген | Ткань деңгээлиндеги оң натыйжа | Боёк менен алдын ала иштетүү чычкандын ортоңку мээсинде ротенон жараткан митохондриялык ДНК жабыркоолорун азайткан, бирок бөлүп алынган митохондрияларда пероксидди көбөйткөн |
Негизги маани — саптардын ортосундагы мыйзам ченемдүүлүктө. Пероксиддин өндүрүлүшү менен биологиялык коргонуу өзүнчө өлчөмдөр. Бир эле таасир биринчисинде терс, экинчисинде оң натыйжа бере алат.
Эмне үчүн бир эле доза ар башка жооп берет
Концентрация электрон ташуу мүмкүнчүлүгүн аныктайт, бирок акыркы натыйжаны эмес. Бүтүн мээ митохондриялары боюнча иште мээ митохондрияларынан пероксиддин бөлүнүп чыгышы 50 nM ден баштап байкаларлык көбөйгөн, ал эми караңгыда митохондриялык ДНКнын ачык жабыркашы үчүн 100 uM талап кылынган. Бул биринчи сигнал менен генотоксикалуулуктун ортосунда болжол менен эки миң эселик айырма бар дегенди билдирет, бирок бул коопсуздук чеги эмес. Өлчөнгөн акыркы көрсөткүчтөр, клеткалык бөлүктөр жана таасир этүү убактысы айырмаланат, ошондуктан сандар бир ийри сызыктын чекиттерин эмес, өзүнчө көрүнүштөрдү белгилейт. Дозага жоопту талкуулоо төмөн деңгээлдеги сигнал менен жогорку деңгээлдеги жабыркоонун мындай айырмасын гормезистин кеңири контекстинде карайт.
Субстрат электрондор кайдан кирерин аныктайт. NADH менен байланышкан энергия булактары боёкту пайдалуу айланып өтүү жолу үчүн да, кычкылтек менен ысыраптуу реакция үчүн да көп калыбына келтирүүчү эквиваленттер менен камсыздайт. Сукцинат боёкту антиоксидант, ал эми глутамат прооксидант кылат деген көп келтирилген жыйынтык маалыматтарды ашыкча чечмелейт. Анткени жүрөк боюнча изилдөөдөгү сукцинат менен пероксид өлчөнгөн шартта ротенон да болгон жана ар бир субстратта жана дем алуу абалында пероксиддин көбөйүшүн көрсөткөн мээ боюнча ишке салыштырмалуу башка ткань жана башка доза колдонулган.
Жарык таасирдин күчүн гана эмес, механизмин өзгөртөт. Бул топтомдогу эң айкын айырма — караңгыда 20 uM митохондриялык ДНК фрагменттерине байкаларлык эч нерсе кылбаганы, ал эми кызыл жарыкта 20 uM алардын баарын жабыркатканы. Жарыкта жүргүзүлгөн тажрыйбаны караңгыдагы тажрыйба менен салыштырган адам фотохимияны кычкылдануу-калыбына келүү цикли менен салыштырып жатат.
Металлдар кычкылданткычты өзгөртөт. Металлдарсыз боёктун караңгыдагы цикли пероксидди пайда кылат — бул диффузиялана алган молекуланы клеткалар сигнал катары да колдонушат. Жеткиликтүү жез же темир бар кезде NADH аркылуу калыбына келген боёк металлдын калыбына келишин камсыздайт, ал эми калыбына келген металл пероксидди ДНКнын жанында гидроксил тибиндеги же жез-пероксид түрүндөгү бөлүкчөлөргө айлантып активдештирет. Ошентип, NADH жана металл иондору менен клеткасыз жүргүзүлгөн иште бир эле баштапкы боёк мутациялар көп кездешкен аймактардагы тандалма жана кеңири ДНК жабыркоолорун жараткан. Бул бутак маанилүү болобу же жокпу — боёктун өзү эле эмес, ошол клеткалык бөлүктөгү металлдарды жөнгө салуу аныктайт.
Энергия булактарынын абалы клетка чыгымды көтөрө аларын аныктайт. 2 ден 20 uM ге чейин боёк таасир эткен эндотелий клеткаларында глюкозаны алып салуу кычкылдануу чыгымын ачык көрсөткөн, ал эми глюкоза менен камсыздоо аны жойгон, бирок глюкоза боёктун калыбына келишин да тездеткен. Коргонууга ресурстар жетиштүү болгон ылдамыраак цикл коргонуу запастары түгөнгөн жайыраак циклден артык. Глюкозанын же NADPHтин абалын көрсөтпөгөн ар кандай кычкылданткыч тууралуу тыянакты толук эмес деп эсептеңиз.
Ткань системанын жабдуусун аныктайт. Эндотелий клеткалары глюкоза метаболизми аркылуу NADPHти кайра калыбына келтирип, цитозолдук антиоксидант запастарына ээ. Бөлүп алынган митохондрияларда булардын бири да жок. Тазаланган ДНКда оңдоо механизми да жок. Бир препараттагы натыйжа башкалары жөнүндө аз гана маалымат берет, ошондуктан ткандарга мүнөздүү жооптор тууралуу пландалган макалада бул системаларды өзүнчө кароо керек болот.
Түз өлчөө кийинки коргонуу жообу эмес
Көптөгөн тексттер тажрыйбалар өзүнчө караган эки деңгээлди бириктирип коёт. Бир деңгээл канча кычкылданткыч пайда болгонун сурайт. Экинчиси клетка ага кандай жооп бергенин сурайт.
Amplex тибиндеги пероксид анализдери биринчи деңгээлге эң жакын, бирок алар да таза агымды, башкача айтканда өндүрүлүштөн ажыроону жана сыртка чыгарууну алып салгандагы натыйжаны көрсөтөт. Мээ митохондриялары боюнча изилдөө эки тарапта тең өзгөрүү болгонун тапкан: пероксид көбүрөөк пайда болгон жана кошулган пероксиддин бир жолку өлчөмү жайыраак жок кылынган. Андан кийинки баскычтарда глутатиондун кычкылданышы, аскорбаттын сарпталышы, кычкылданган гуанин жана полимеразаны бөгөттөгөн ДНК жабыркоолору турат. Ар бир кадам кычкылданткыч менен өлчөнгөн көрсөткүчтүн ортосуна кошумча биологиялык процесстерди киргизет.
Nrf2 башкарган антиоксидант ферменттер жана митохондриялык биогенез экинчи деңгээлге кирет. Булар пероксиддин жеңил импульсу ишке киргизе алган ыңгайлашуу программалары. Мээ митохондрияларын коргоо боюнча изилдөөнүн авторлору дал ушундай жеңил стресс түрткүсүн сунушташат, ошол эле учурда Nrf2 аркылуу өтүүчү себептик чынжыр алардын өзүнүн толук далилдөөсүнө эмес, мурдагы иштерге таянарын белгилешет. Бир нече сааттан кийин жаңы белоктор аркылуу пайда болгон коргонуу баштапкы химия антиоксиданттык болгонун билдирбейт. Бул чакан прооксиданттык окуя чоңураак коргонууну камсыздаганын билдирет. Мындай тыянактарды окуудагы чектөөлөр, анын ичинде анализдердин чектери жана препараттардын айырмачылыктары, метилен көгү боюнча изилдөөлөрдү окуу колдонмосунда каралат.
Эмне үчүн анализдер бири-бирине туура келбейт
Дигидрофлуоресцеин сыяктуу жалпы зонд пероксиддин концентрациясын эмес, зонддун кеңири кычкылданышын көрсөтөт. Ал пероксидаза жана гем химиясына көз каранды жана калибрленген Amplex анализи байкаган пероксиддин көбөйүшүн байкабай калышы мүмкүн. Мээ митохондриялары боюнча изилдөө супероксид сигналы тиешелүү түрдө көбөйбөстөн, пероксид кескин көбөйгөнүн көрсөткөн. Бул боёкко негизделген бир гана антиоксиданттык тыянакты келтирүүдөн сак болууга чакырат. Оптикалык кабатташуу — негиздүү контролдук суроо, анткени боёк кеңири колдонулган дүүлүктүрүү жана жарык чыгаруу тилкелерине жакын көрүнүүчү жарыкты сиңирет. Бирок кылдат жүргүзүлгөн изилдөө белгилүү пероксид өлчөмдөрү менен калибрлөө жүргүзүп, сигнал аз гана өзгөргөндөй кылып дүүлүктүрүүчү жарыктын таасирин кыскарткан жана өзүнчө электрод менен пероксиддин жайыраак жок кылынарын тастыктаган. Тоскоолдук — автоматтык түрдө четке кагуунун себеби эмес, текшерилиши керек болгон контролдук маселе.
Кальций боюнча натыйжа да тактыкка болгон ошол эле муктаждыкты көрсөтөт. Жүрөк боюнча изилдөөдө боёктун кыска мөөнөттүү таасири өткөрүмдүүлүктүн өтүүсүнө чейинки жалпы кальций жүгүн өзгөрткөн эмес, бирок диабетке багытталган жүрөк митохондриялары боюнча изилдөөдө бөгөттөлгөн мээ митохондрияларында кальцийди сиңирүү ылдамдыгын жакшырткан. Акыркы көрсөткүчтөр башка, системалар башка — карама-каршылык жок.
Тыянакка ишенүүдөн мурун текшерүү тизмеси
Ар бир антиоксиданттык же прооксиданттык тыянакты белгилүү бир система жөнүндө билдирүү катары кабыл алып, беш суроо бериңиз. Кайсы концентрацияда жана кайсы клеткалык бөлүктө? Кайсы электрон донору жана кайсы атаандаш кабыл алуучу менен? Жарыктабы же караңгыдабы, кайсы толкун узундугунда жана кайсы дозада? Кайсы металлдар жеткиликтүү, энергия булактары менен антиоксидант запастары канчалык камсыздалган? Анан кайсы анализ менен: кычкылданткычтын агымынбы, жабыркоонубу же ыңгайлашуу жообунбу өлчөөдө? Ушул жооптордун бирин өзгөртсөңүз эле, бир эле молекула матрицада коргоочудан жабыркатуучуга өтүшү мүмкүн — мында эч кандай парадокс жок.