
記事
メチレンブルーと早老症:細胞老化モデルから得られた知見
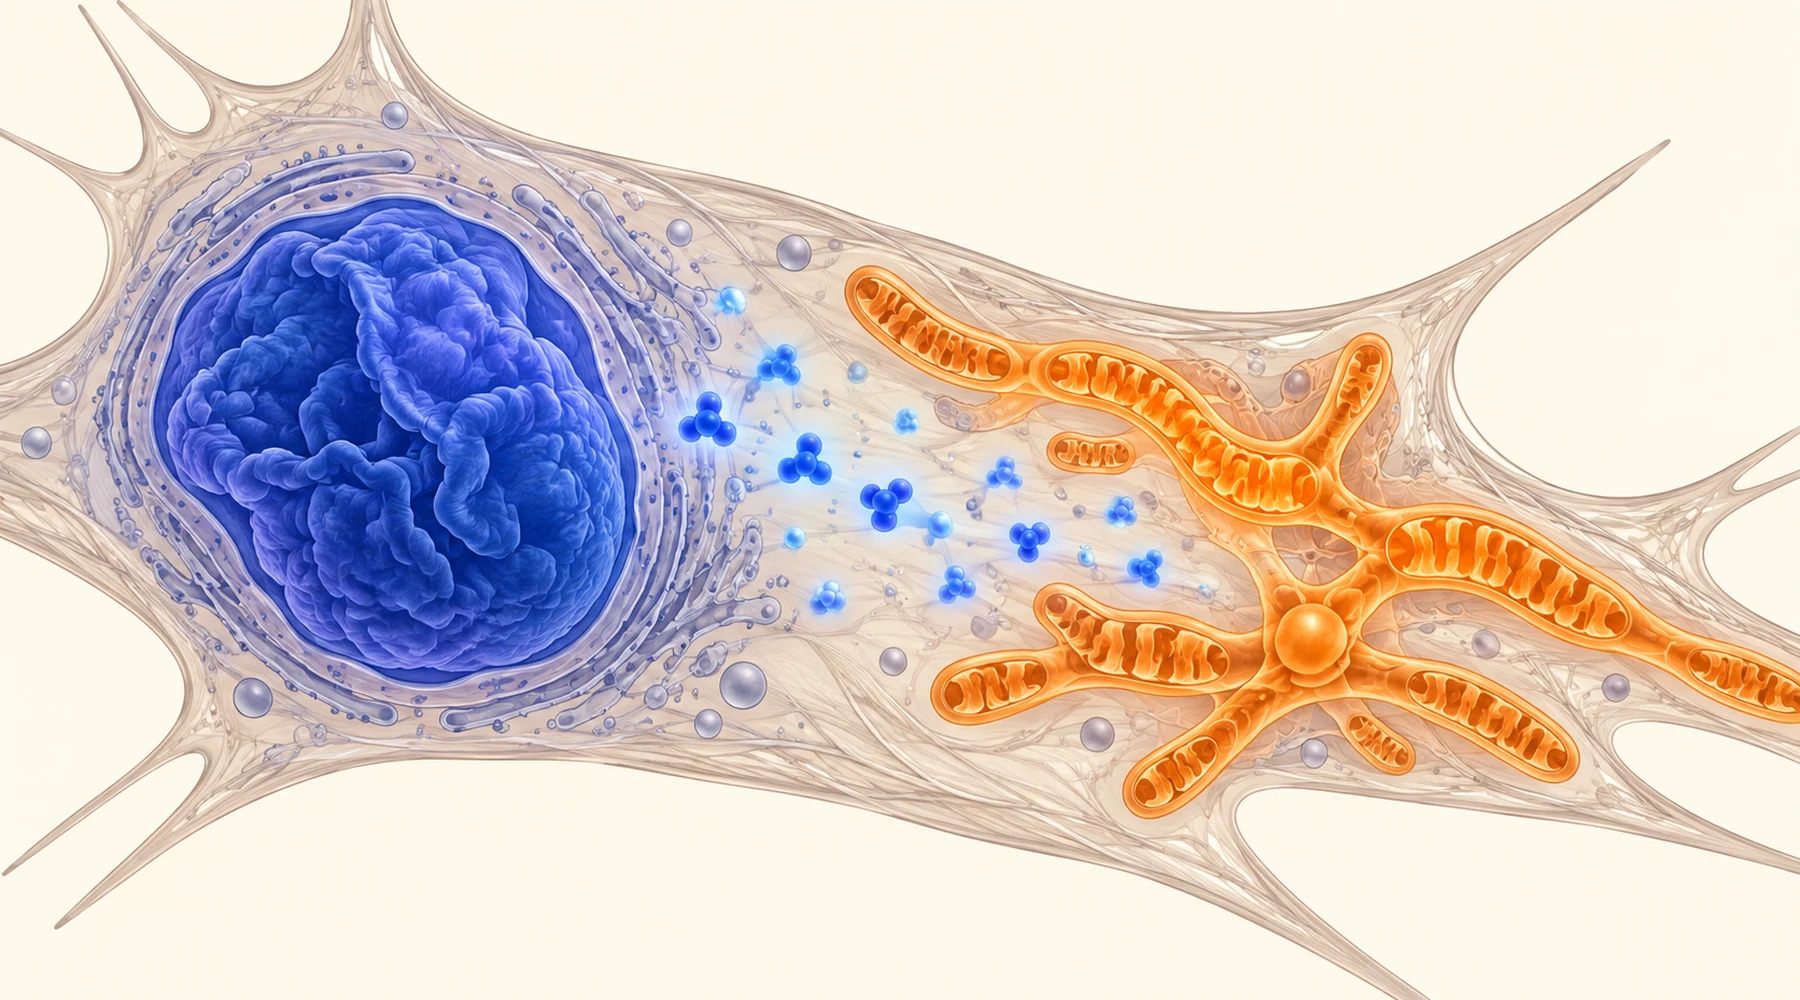
ある遺伝子のたった1文字の変化によって、子どもの老化が恐ろしい速さで進みます。脱毛、関節のこわばり、動脈の狭窄が生じ、平均余命は10代にとどまります。この疾患がハッチンソン・ギルフォード早老症候群です。その研究は長年、変異タンパク質が損傷を引き起こす場所である細胞核を中心に進められてきました。2016年、メリーランド大学の研究は別の問いを立てました。これらの細胞では、ミトコンドリアはどのような状態にあるのでしょうか。その答えは細胞内の2つの区画を結びつけ、さらに、100年以上の歴史を持つ青い色素が両方に作用することを示しました。
この研究はXiongらによるもので、2016年にAging Cellに掲載されました。実験はすべて培養細胞で行われています。以下の内容は、この事実を前提に読む必要があります。得られた知見は確かで、具体的です。同時に、それが治療からどれほど隔たっているかも明確です。
モデル:1つの変異と、膜に張り付くタンパク質
早老症は、LMNA遺伝子の1824番目の位置でCがTに置き換わることから始まります。この変化自体はアミノ酸を変えません。通常は使われないスプライス部位を活性化し、ラミンAタンパク質から50個のアミノ酸を欠失させます。この短縮されたタンパク質はプロジェリンと呼ばれ、通常なら細胞がファルネシル基のアンカーを取り除くために使う切断部位を失っています。そのため、正常なラミンAが核内膜への結合と解離を繰り返すのに対し、プロジェリンはファルネシル化されたまま核内膜に張り付き続けます。
核に生じる影響は詳しく記録されており、顕微鏡でも確認できます。核は滑らかな楕円形を保てず、突出やしわを生じます。通常は核の周縁に沿って分布する、密に詰まった転写不活性なDNAであるヘテロクロマチンが減少します。数千の遺伝子で発現が変化します。核ラミナを壁紙の裏にある骨組みと考えてみてください。骨組みの一部が誤った位置に溶接されると、壁が膨らみ、部屋全体で壁紙の模様がゆがむようなものです。
この研究では、早老症患者由来の皮膚線維芽細胞と継代数をそろえた対照細胞に加え、正常な線維芽細胞がプロジェリンを直接産生するように改変した別の細胞株を用いました。改変した細胞にも同じ異常が生じたため、原因は患者の既往歴や培養期間ではなく、プロジェリンにあると考えられます。異常の程度はプロジェリンの量に対応しており、発現量の多い細胞株では、全般的により重い異常が見られました。
ミトコンドリアはどのような状態だったか
健康な線維芽細胞のミトコンドリアは、核の周囲で枝分かれしたネットワークを形成し、長い管状の構造が細胞骨格の経路に沿って移動します。早老症の細胞株では、このネットワークが失われていました。断片化したミトコンドリアの割合が増え、多くが膨張していました。電子顕微鏡では、重度に損傷したミトコンドリアが約2倍に増えていることが確認されました。タイムラプス撮影では、対照細胞に比べて移動距離が短く、速度も遅いことが示されました。
形態の変化に伴い、機能も変化していました。ミトコンドリアのスーパーオキシドと細胞全体の酸化性物質の量が増加していました。膜電位に異常を示す細胞も増えていました。ATP産生は低下していました。損傷したミトコンドリアは活性酸素種を漏出させ、エネルギー産生も減少するため、これらを個別に見れば驚く結果ではありません。新しかったのは、原因についての提案です。NRF1、TFAMなどの下流因子や、融合・分裂を調節するMFN1、MFN2、OPA1、FIS1、DRP1を介してミトコンドリアの生合成を促進する転写共役活性化因子PGC-1alphaは、早老症細胞ではmRNA量が約8分の1に抑えられ、タンパク質量も同様に減少していました。プロジェリンは、ミトコンドリアの生成と維持を統括するスイッチを抑制しているようでした。核ラミナの損傷とエネルギー代謝のこのつながりは、ミトコンドリアのエネルギー産生を理解するための、より広い説明の一部です。また、このバランスにおける酸化性物質の側面は、酸化ストレスとROSの制御で扱われています。

メチレンブルーは何を変えたか
研究者らは、低濃度である100ナノモルのメチレンブルーで、細胞を数週間にわたり継続的に処理しました。細胞培養の実験としては、短時間だけ薬剤にさらす処理ではなく、低濃度で長くさらす条件です。メチレンブルーは酸化型と還元型の間を行き来し、ミトコンドリア内で電子を運ぶことができます。そのため、酸化性物質を1つ中和すると消費される一般的な抗酸化物質ではなく、ミトコンドリアに作用する酸化還元化合物と説明されます。
正常細胞と早老症細胞の両方で、ミトコンドリアに反応が見られました。ATPが増加し、酸化性物質の量が減少し、重度の異常を持つミトコンドリアの割合が低下しました。PGC-1alphaの発現は、その下流の標的の一部とともに部分的に回復しました。ここまでの結果は、早老症に特有のものではなく、ミトコンドリア機能を支える一般的な作用を示しています。
予想外だったのは核での結果であり、これは疾患を持つ細胞に特有でした。形状の定量解析では、核の突出が減少していました。ラミンAとCの総量も増加していました。最も注目すべき変化は、プロジェリンの分布です。未処理の早老症細胞では、プロジェリンのうち可溶性の核質画分に存在するのは約30パーセントにすぎず、残りは膜に固定されていました。処理後には可溶性画分の割合が約65パーセントまで増え、正常なラミンの挙動に近づきました。膜から離れると、プロジェリンが周囲のタンパク質を巻き込む程度も減り、ラミンAとCの可溶性画分も回復しました。
この解離に続いて、核の2つの表現型が改善しました。電子顕微鏡とヘテロクロマチンタンパク質HP1-alphaの染色で調べた核周縁部のヘテロクロマチンには、明らかな回復が見られました。また、RNAシーケンシングでは、トランスクリプトームが正常な状態に近づいていることが示されました。未処理の早老症細胞では、対照細胞との差が3,200を超える遺伝子に見られたのに対し、処理した早老症細胞では約1,670でした。正常細胞では、同じ処理によって変化した遺伝子は数十個にとどまりました。このことは、核への作用が転写全般を大きく変動させるものではなく、プロジェリンに関連していることを示唆します。細胞や動物を用いた実験が答えられる問いは、見出しから受ける印象よりも限定的であるという原則は、メチレンブルー研究の読み方で説明しています。
なぜ治療とはいえないのか
この研究を実験室での知見として位置づけるべき理由は、4つの限界にあります。
第1に、すべてが培養皿の中で起きたことです。培養した線維芽細胞には、血液供給、免疫系との関係、組織構造がありません。また、化合物がそもそも標的に到達できるかどうかを左右する、全身での薬理学的な過程も再現されていません。この論文では、動物への投与も患者への治療も行われていません。
第2に、早老症の線維芽細胞は、1種類の細胞のモデルにすぎません。この疾患で死に至る主な病変は動脈、骨、脂肪に関わりますが、研究で調べたのは線維芽細胞と1つの平滑筋細胞の実験系だけです。他の組織では異なる反応が生じる可能性があります。
第3に、核の改善は、培地中でナノモル濃度に数週間、継続的にさらすことで得られたものです。培養皿内の濃度は投与量ではなく、この論文には培地中の100ナノモルをヒトへの投与計画に換算できる情報はありません。メチレンブルーには、医療の他の用途で確認されている固有の用量反応関係と安全性の特性があります。この研究は、家庭で使用する根拠を何も提供していません。一般的な安全性については、メチレンブルーの安全性と副作用を参照してください。
第4に、早老症は通常の老化ではありません。1つの変異によって核の骨組みが特定の形で損なわれる、まれな疾患です。培養細胞でその特定の損傷を軽減する化合物があっても、その変異を持たない人の老化についてわかることはほとんどありません。この細胞の表現型は、核とミトコンドリアの相互作用を知る手がかりであり、寿命に関する結果ではありません。
したがって、妥当なまとめには条件を明示する必要があります。早老症の線維芽細胞では、プロジェリンがPGC-1alphaを抑制し、ミトコンドリアは断片化して動きが鈍くなり、酸化性物質が多く、エネルギーが少ない状態になります。低濃度のメチレンブルーは、すべての細胞でミトコンドリアの測定指標を回復させ、さらに疾患を持つ細胞ではプロジェリンを核膜から解離させました。それに伴い、核の形状、ヘテロクロマチン、遺伝子発現が部分的に回復しました。この二重の作用が、この研究を知る価値のあるものにしています。ただし、メチレンブルーが早老症や老化の治療になることを示すものではありません。