
Artikel
Mengukur spesies oksigen reaktif dalam eksperimen metilena biru
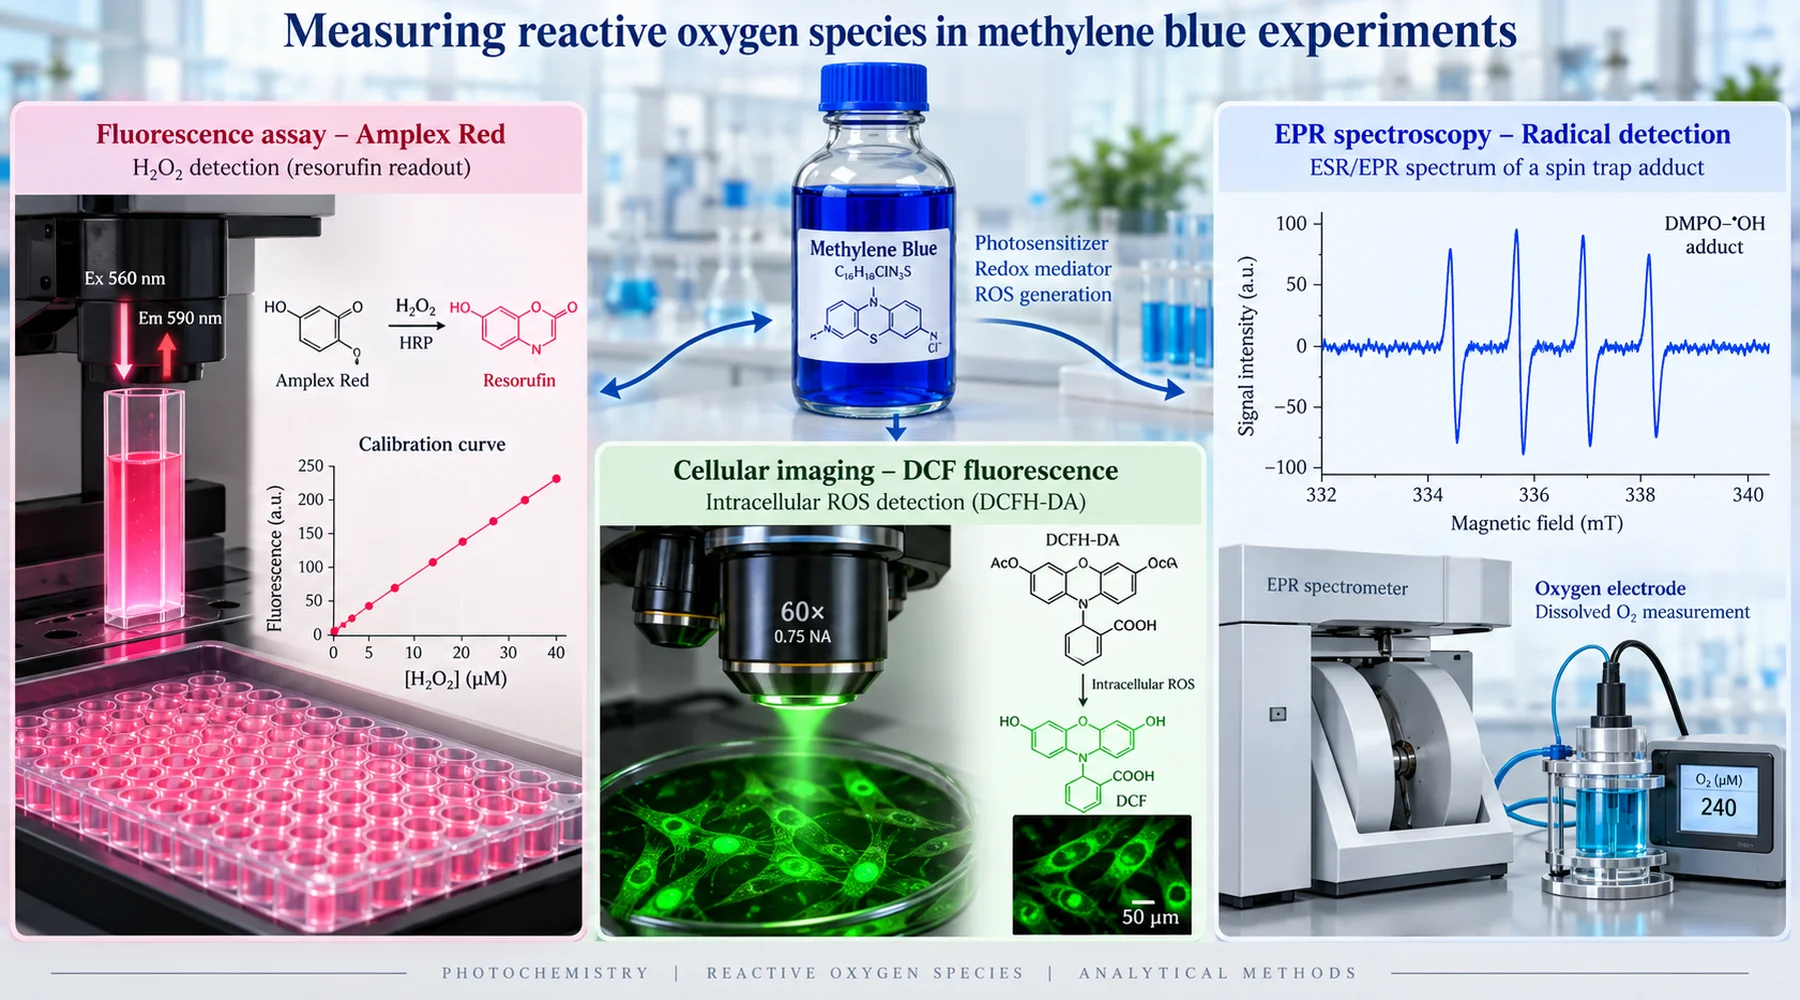
Dua laboratorium menjalankan eksperimen yang masing-masing mereka sebut sebagai eksperimen antioksidan metilena biru. Satu melaporkan bahwa zat warna tersebut menekan spesies oksigen reaktif. Yang lain melaporkan bahwa zat warna itu menghasilkannya. Keduanya menunjukkan kurva respons dosis yang jelas. Keduanya melaporkannya dengan itikad baik. Perbedaannya bukanlah penipuan atau ketidakmampuan. Masalahnya adalah kedua kelompok mengukur hal yang berbeda dalam kondisi cahaya yang berbeda, menggunakan probe yang menjawab pertanyaan berbeda, lalu menggambarkan kedua hasil tersebut dengan kata yang sama: ROS.
Metilena biru merupakan molekul yang sulit diukur secara presisi karena ikut berpartisipasi dalam kimia yang seharusnya diamatinya. Dalam gelap, molekul ini memindahkan elektron antara donor dan akseptor lalu kembali ke bentuk awalnya, siap menjalani siklus lagi. Di bawah cahaya, molekul ini menjadi fotosensitiser, mencapai keadaan triplet tereksitasi yang memungkinkannya mentransfer energi ke oksigen untuk menghasilkan oksigen singlet atau mentransfer elektron untuk menghasilkan radikal dan hidrogen peroksida. Probe apa pun yang ditempatkan ke dalam sistem tersebut dapat teroksidasi, tereduksi, mengalami pemudaran, atau tertutupi secara optik oleh zat warna itu sendiri. Karena itu, pertanyaan pertama untuk setiap pembacaan ROS bukanlah berapa angkanya. Pertanyaannya adalah apa yang sebenarnya dideteksi oleh uji tersebut, dan apa yang dilakukan zat warna terhadap uji itu.
Amplex Red: uji hidrogen peroksida yang terkalibrasi
Kombinasi metilena biru dan Amplex Red merupakan pasangan yang paling dapat dipertanggungjawabkan dalam literatur ini, jika disiapkan dengan benar. Kimianya spesifik: horseradish peroxidase menggunakan hidrogen peroksida untuk mengoksidasi substrat Amplex menjadi produk fluoresen, resorufin, dengan stoikiometri kira-kira satu banding satu. Peroksida dari sampel diubah menjadi fluoresensi pada detektor. Tidak ada anggota lain dari kelompok ROS kanonis yang secara langsung mendorong reaksi tersebut.
Keunggulan yang menentukan adalah kalibrasi. Peneliti yang cermat menjalankan standar peroksida dengan konsentrasi diketahui dalam buffer yang sama, dengan konsentrasi peroksidase dan substrat yang sama, waktu inkubasi yang sama, serta pengaturan optik yang sama, lalu membaca sampel berdasarkan kurva tersebut. Dalam studi mitokondria otak terisolasi yang menjadi landasan metode ini, para penulis melakukan tepat seperti itu, dengan menambahkan jumlah peroksida yang diketahui pada akhir setiap pengujian, dan hasilnya dilaporkan sebagai laju dalam pikomol per menit per miligram protein, bukan satuan fluoresensi arbitrer. Hal itulah yang mengubah pancaran cahaya menjadi sebuah pengukuran.
Tiga rincian dari studi tersebut layak ditiru. Pertama, para penulis memverifikasi sinyal menggunakan katalase, yang menghancurkan peroksida. Kenaikan fluoresensi akibat metilena biru berhenti ketika katalase ditambahkan, yang menegaskan bahwa sinyal tersebut berasal dari peroksida dan bukan artefak optik. Kedua, mereka menguji pencahayaan secara langsung dengan menutup berkas eksitasi sehingga sampel hanya menerima seperdelapan dosis cahaya normal, dan sinyal hanya turun sembilan persen. Lebih dari sembilan puluh persen peroksida yang mereka laporkan tidak bergantung pada cahaya pengukuran. Ketiga, mereka mengukur eliminasi peroksida secara terpisah menggunakan elektroda dan menemukan bahwa zat warna tersebut sekaligus meningkatkan produksi dan memperlambat pembersihan. Probe yang hanya melaporkan fluoresensi bersih akan mencampuradukkan kedua efek tersebut.
Uji ini tetap memiliki beberapa mode kegagalan, dan metilena biru memicu beberapa di antaranya. Zat warna ini menyerap secara luas pada wilayah merah yang sama dengan tempat resorufin memancarkan cahaya, sehingga pada konsentrasi zat warna yang tinggi, sampel dapat menutupi sinyalnya sendiri melalui efek filter internal. Karena itu, standar sebaiknya mengandung konsentrasi zat warna yang sama dengan sampel. Amplex Red juga dapat mengalami fotooksidasi sendiri, dan produknya, resorufin, dapat memasuki siklus fotoredoks yang menghasilkan superoksida dan peroksida, yang sangat penting ketika eksperimen tersebut juga menerangi sebuah fotosensitiser. Solusi praktisnya adalah menyinari sampel metilena biru terlebih dahulu lalu menguji alikuot menggunakan reagen Amplex dalam gelap, alih-alih menyinari zat warna dan probe secara bersamaan. Terakhir, superoxide dismutase tidak sekadar menekan sinyal Amplex: konversi superoksida menjadi peroksida justru dapat meningkatkannya. Kontrol SOD yang meningkatkan fluoresensi bukan berarti gagal. Kontrol tersebut telah mengidentifikasi superoksida sebagai spesies di hulu.
DCFDA: indikator oksidasi yang tidak spesifik
Pasangan metilena biru dan DCFDA merupakan sumber sebagian besar kebingungan. DCFH-DA adalah prekursor yang dimuat ke dalam sel. Esterase di dalam sel melepaskan gugus asetatnya sehingga menyisakan DCFH yang tidak berfluoresensi, dan oksidasi DCFH menghasilkan DCF fluoresen. Daftar zat yang dapat mengoksidasinya panjang: radikal hidroksil, intermediat peroksidase dan heme, nitrogen dioksida, asam hipoklorit, serta radikal turunan peroksinitrit. Hidrogen peroksida sendiri tidak mengoksidasinya secara langsung pada laju yang berguna; fluoresensi yang bergantung pada peroksida umumnya memerlukan besi, protein heme, atau kimia peroksidase dalam rangkaian reaksinya.
Kritik yang seharusnya dikutip oleh setiap bagian metode berasal dari analisis DCFH sebagai probe oleh Kalyanaraman dan rekan-rekannya, sebagaimana dirangkum dalam studi mitokondria otak yang menolak DCFDA karena alasan ini, yang menunjukkan bahwa zat warna tersebut bereaksi lambat, dengan stoikiometri yang tidak terkarakterisasi, tanpa kalibrasi yang valid, dan juga bereaksi dengan senyawa non-ROS. Probe ini juga memperkuat apa yang diukurnya: oksidasi satu elektron pada DCFH menghasilkan radikal DCF yang bereaksi dengan oksigen untuk membentuk superoksida, yang kemudian mengalami dismutasi menjadi peroksida tambahan. Dengan kata lain, pembacaan tersebut sebagian menciptakan sendiri kimia yang dilaporkannya.
Semua ini tidak membuat DCFDA tidak berguna. Artinya, DCFDA adalah alat skrining, bukan alat identifikasi. Kenaikan fluoresensi DCF berarti oksidasi probe yang bergantung pada oksidan meningkat. Itu tidak berarti peroksida meningkat, dan tentu saja tidak berarti total ROS meningkat, karena tidak ada satu probe pun yang mengukur besaran tersebut. Penelitian metilena biru sebelumnya yang mengandalkan oksidasi DCF pada konsentrasi di atas satu mikromolar melaporkan efek prooksidan, sementara sistem lain pada era yang sama melaporkan perlindungan terhadap kematian sel yang dipicu peroksida. Kedua pengamatan tersebut dapat sama-sama benar untuk zat warna yang sama dalam konteks redoks yang berbeda, dan hasil DCF saja tidak dapat menentukan oksidan mana yang menghasilkan sinyal. Arti penting penelitian mitokondria otak terdahulu adalah bahwa penelitian tersebut mengganti skrining ini dengan pengukuran peroksida terkalibrasi dan mengukur bebannya secara langsung: bahkan seratus nanomolar zat warna meningkatkan pelepasan peroksida beberapa kali lipat pada setiap substrat dan keadaan respirasi yang diuji.
DCFDA memiliki satu jebakan lain yang spesifik terhadap metilena biru. Zat warna ini sangat pekat warnanya dan aktif secara redoks, sehingga dapat memudarkan fluoresensi, memadamkan emisi, atau mengoksidasi kimia probe secara independen dari ROS seluler. Kontrol bebas sel yang berisi zat warna plus probe tanpa sel bukanlah tambahan opsional. Justru eksperimen itulah yang memberi tahu apakah zat warna berinteraksi dengan probe.
Spin trapping dan konsumsi oksigen: identitas dan fluks
Jika probe fluoresen melaporkan bahwa sesuatu yang dapat dioksidasi telah muncul, resonansi spin elektron dengan spin trap memberikan informasi yang lebih dekat pada identitas spesies tersebut. Studi klasik mengenai fotokimia metilena biru menggunakan ESR untuk mendeteksi radikal askorbat dari zat warna, askorbat, dan cahaya, kemudian menunjukkan pembentukan peroksida dalam eksperimen konsumsi oksigen serta pembentukan radikal hidroksil yang dikatalisis besi dalam pengujian spin trapping. Setiap teknik menjawab pertanyaan yang tidak dapat dijawab oleh teknik lainnya: ESR memberikan identitas radikal, konsumsi oksigen memberikan fluks reaksi yang tidak bergantung pada probe fluoresen apa pun, dan kombinasi keduanya menunjukkan bahwa jalur oksigen singlet dan jalur radikal beroperasi dalam sistem yang sama saat diterangi.
Hasil tahun 1984 tersebut masih layak dibaca sebagai peringatan. Ketika terdapat pencahayaan dan agen pereduksi, zat warna menghasilkan peroksida, dan ketika besi hadir, sistem tersebut menghasilkan radikal hidroksil, spesies paling reaktif dalam kelompok ini. Para penulis mengaitkan hal ini dengan askorbat di mata dan mempertanyakan penggunaan oftalmik secara sembarangan. Pembaca modern perlu memperhatikan kondisinya: cahaya ditambah reduktan ditambah besi. Hilangkan salah satunya dan jalur tersebut melemah atau menghilang.
Elektroda oksigen memiliki kegunaan yang berbeda. Elektroda tipe Clark mengukur konsumsi oksigen bersih, yang menunjukkan bahwa kimia redoks yang digerakkan oleh zat warna memang mengonsumsi oksigen molekuler dan memberikan data kinetika yang tidak dapat dipalsukan oleh artefak fluoresensi. Namun, elektroda ini tidak mengidentifikasi produknya. Peroksida, superoksida, air, serta peluruhan oksigen singlet semuanya mengonsumsi oksigen. Fluks tanpa identitas sama tidak lengkapnya dengan identitas tanpa fluks, sehingga penelitian yang kuat memasangkan elektroda dengan uji peroksida terkalibrasi atau sebuah trap.
Mengapa hasil antioksidan saling bertentangan
Letakkan ketiga jenis pembacaan tersebut berdampingan, dan kontradiksi yang tampak dalam literatur metilena biru dapat dijelaskan sebagai perbedaan metode ditambah tiga fakta biologis.
Pertama, zat warna ini sekaligus merupakan pengangkut elektron dan sumber peroksida. Dengan mengalihkan elektron dari lokasi respirasi tempat oksigen seharusnya berubah menjadi superoksida, zat warna ini dapat menurunkan satu jenis ROS sementara bentuk tereduksinya mereduksi oksigen secara langsung menjadi peroksida dan meningkatkan jenis lainnya. Karena itu, laboratorium yang mempelajari kimia redoks mitokondria dan perannya sebagai jalur pintas harus mengharapkan jawaban yang bergantung pada probe: pembacaan yang sensitif terhadap superoksida menurun sementara pembacaan peroksida meningkat dalam kuvet yang sama.
Kedua, peroksida pada dosis rendah berfungsi sebagai sinyal, bukan hanya sebagai penyebab kerusakan. Studi mitokondria otak tikus yang melanjutkan penelitian sebelumnya menemukan pembentukan peroksida mulai dari hanya lima puluh nanomolar zat warna tanpa lesi DNA mitokondria pada kadar terapeutik, dengan perlindungan terhadap lesi yang dipicu rotenone setelah praperlakuan. Hanya pada seratus mikromolar, jauh di atas rentang terapeutik, zat warna merusak fragmen DNA tertentu, dan cahaya merah ditambah dua puluh mikromolar zat warna menghasilkan oksigen singlet yang merusak semua fragmen yang diuji. Mekanisme yang diusulkan bersifat hormetik: produksi peroksida ringan memicu pertahanan antioksidan terkait Nrf2 dan biogenesis mitokondria, sehingga pembacaan prooksidan jangka pendek mendahului hasil antioksidan jangka lebih panjang. Uji yang dibaca setelah satu jam dan uji yang dibaca setelah satu hari dapat memberikan hasil berbeda karena biologinya berubah di antara kedua waktu tersebut.
Ketiga, cahaya menentukan molekul apa yang sebenarnya hadir. Pencahayaan mendemetilasi zat warna menuju Azure B dan produk terkait, dan lampu mikroskop di atas cawan sudah cukup untuk memfotosensitisasinya. Eksperimen dalam gelap dan eksperimen dengan pencahayaan adalah eksperimen yang berbeda, dan bagian kontrol untuk pencahayaan dan penanganan zat warna dalam protokol apa pun harus memperlakukannya demikian.
Set kontrol minimum, dan cara membaca setiap klaim
Perbandingan di bawah ini adalah aset referensi asli untuk artikel ini. Sebelum menerima hasil ROS metilena biru apa pun, periksa baris mana yang dilakukan oleh penulis dan mana yang dilewati.
| Kontrol | Apa yang disingkirkan | Cara menjalankannya |
|---|---|---|
| Gelap versus pencahayaan terdefinisi | Mencampuradukkan efek redoks keadaan dasar dengan fotokimia | Zat warna yang sama, matriks yang sama, satu kelompok dalam gelap, satu di bawah dosis cahaya terukur |
| Probe plus cahaya, tanpa zat warna | Fotokimia probe | Terangi probe saja; setiap sinyal merupakan baseline artefak |
| Zat warna plus cahaya, tanpa sel atau substrat | ROS seluler versus ROS intrinsik dari zat warna | Matriks bebas sel; menetapkan apa yang dihasilkan zat warna dengan sendirinya |
| Katalase | Sinyal non-peroksida dalam pengujian Amplex | Sinyal seharusnya turun; perhatikan bahwa zat warna yang diterangi dapat merusak katalase itu sendiri |
| SOD | Keterlibatan superoksida | Kenaikan sinyal Amplex menunjukkan keterlibatan superoksida di hulu, bukan kegagalan uji |
| Pengkelat besi seperti deferoxamine | Kimia hidroksil tipe Fenton | Menguji apakah besi aktif-redoks membawa sinyal DCFH atau trap |
| Standar peroksida dalam matriks lengkap | Fluoresensi tanpa kalibrasi | Penambahan peroksida yang diketahui dengan konsentrasi zat warna dan kondisi optik yang identik |
Dari sini dapat diturunkan aturan praktis untuk membaca hasil. Amplex dengan peroksidase, terkalibrasi, dan disertai pemeriksaan katalase merupakan bukti mengenai peroksida. DCFDA merupakan bukti mengenai oksidasi probe yang tidak spesifik dan tidak lebih dari itu. Spin trapping dengan kontrol scavenger merupakan bukti mengenai identitas radikal. Konsumsi oksigen merupakan bukti mengenai fluks. Kalimat yang mengklaim lebih banyak daripada yang dapat didukung oleh uji yang digunakan, seberapa pun meyakinkannya kalimat itu ditulis, sebenarnya merupakan pernyataan tentang probe, bukan tentang zat warna. Pembahasan terkait mengenai ketergantungan pada dosis dan rentang hormetik, aliran elektron mitokondria, interferensi uji pada sampel yang diwarnai, serta artefak pencahayaan mikroskopi memperluas masing-masing poin tersebut, dan setiap poin tetap berlaku setelah referensi placeholder terkait diganti. :::