
Artikel
Biru metilena dan autofagi: AMPK, mTOR, dan eksperimen neuronal
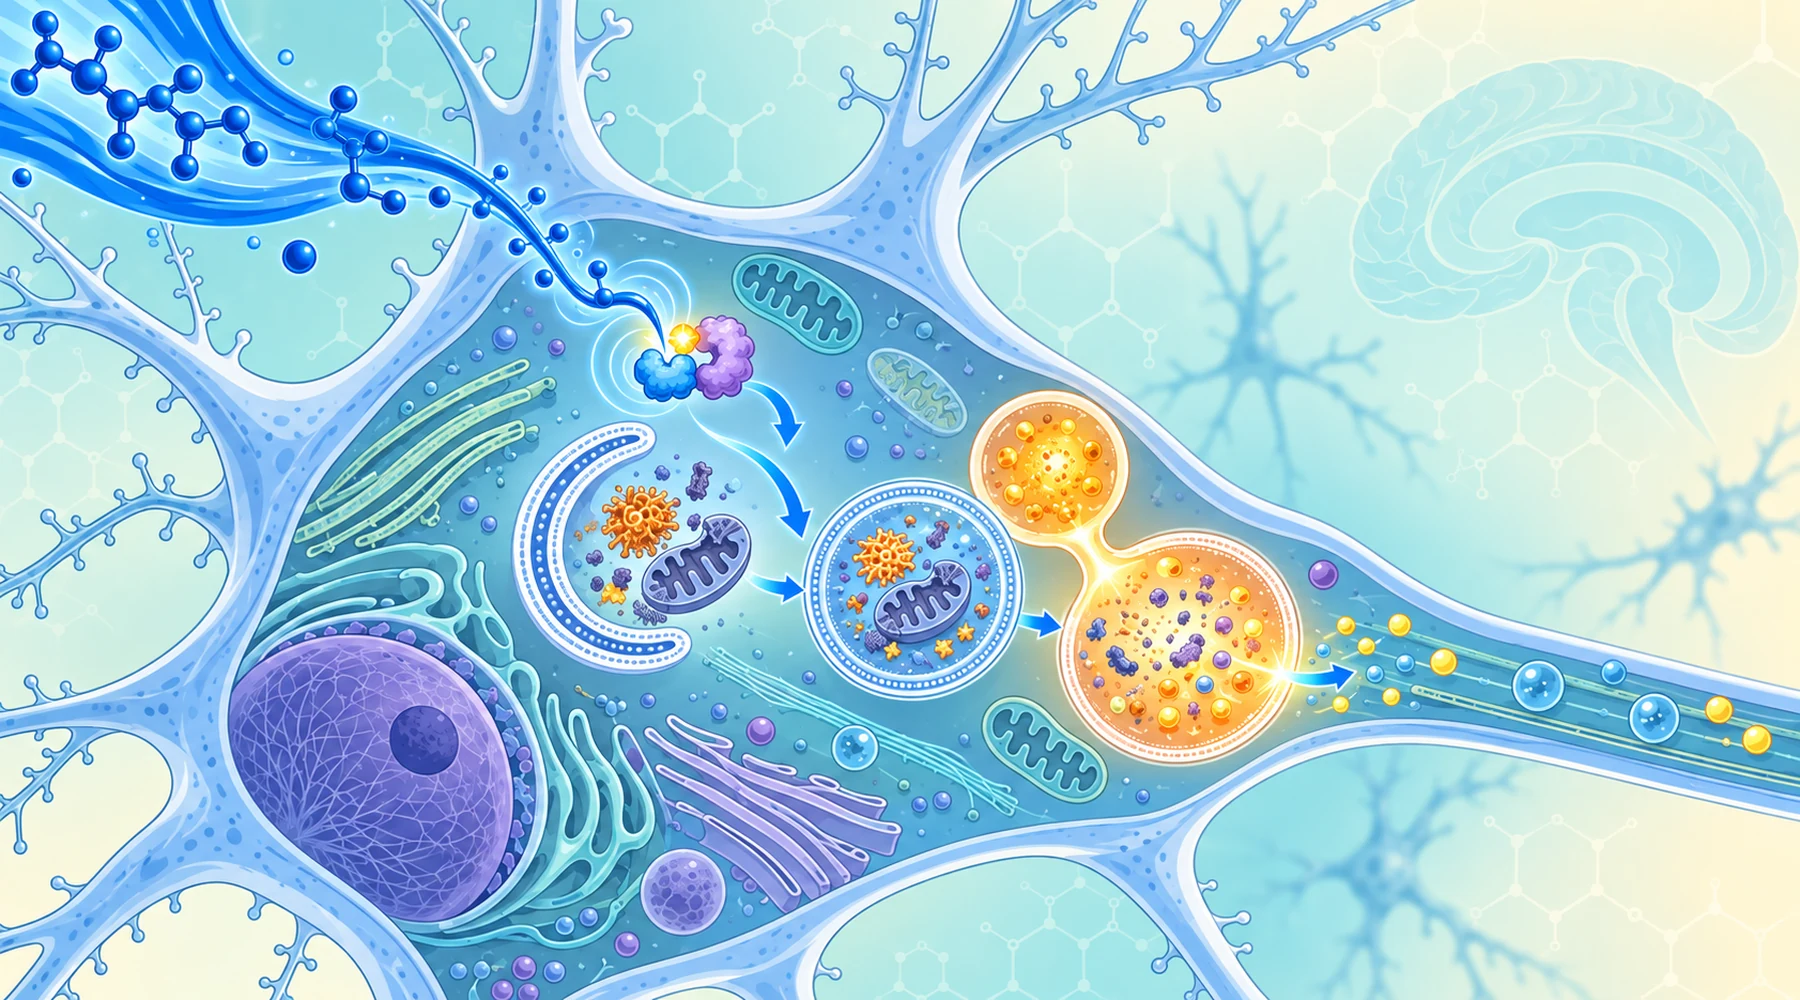
Bayangkan Anda menjalankan eksperimen sel, menambahkan biru metilena, lalu melihat pita protein bernama LC3-II menjadi lebih gelap pada blot Anda. Sangat mudah tergoda untuk menyatakan bahwa senyawa tersebut "meningkatkan autofagi" lalu berhenti di situ. Penafsiran itu terlalu dini. Pita LC3-II yang lebih gelap dapat berarti sel sedang membentuk lebih banyak vesikel pembersihan, atau dapat berarti vesikel menumpuk karena tahap pembuangannya tersumbat. Kedua interpretasi tersebut mengarah ke arah yang berlawanan, dan literatur biru metilena pada neuron memuat contoh dari masing-masing jenis bukti. Artikel ini membahas apa yang sebenarnya diukur, satu uji demi satu uji.
Makroautofagi, bentuk yang dipelajari di sini, adalah konsep daur ulang massal pada sel. Kantong membran yang disebut fagofor tumbuh mengelilingi protein dan organel yang sudah rusak, menutup menjadi autofagosom, menyatu dengan lisosom, lalu muatannya didegradasi dan dilepaskan untuk digunakan kembali. Neuron bergantung pada proses rutin ini karena neuron tidak membelah dan tidak dapat mengencerkan bagian yang rusak melalui pembelahan. Ketika daur ulang terhenti, limbah menumpuk. Ketika prosesnya berjalan, sel memperoleh kembali bahan penyusun saat berada dalam kondisi stres.
Apa yang ditunjukkan oleh satu eksperimen hipokampus
Studi induksi utama menggunakan sel hipokampus tikus HT22 yang diberi stres melalui deprivasi serum selama 24 jam, suatu kondisi yang menghilangkan faktor pertumbuhan dan sinyal trofik serta memicu apoptosis maupun autofagi. Para peneliti melaporkan bahwa biru metilena mengurangi kematian sel secara bergantung dosis, dan perlindungan ini disertai tanda-tanda makroautofagi.
Rangkaian penandanya bersifat spesifik. Pewarnaan LC3B yang tersebar mengalami redistribusi menjadi puncta perinuklear mulai sekitar 20 nM biru metilena, dengan respons LC3-I dan LC3-II terkuat mendekati 1 μM. LC3B-I dan LC3B-II sama-sama meningkat secara bergantung dosis dan waktu. Yang penting, tim tersebut melangkah lebih jauh daripada sekadar blot LC3 statis. Mereka menambahkan 10 μM klorokuin, yang menghambat pembersihan lisosomal, dan menemukan LC3-II yang lebih tinggi serta p62 yang distabilkan pada sel yang diberi biru metilena. Pola tersebut mendukung adanya turnover yang bergantung pada lisosom, bukan sekadar penumpukan. Mereka juga menunjukkan bahwa klorokuin membalikkan sebagian efek antiapoptosis, yang mengaitkan perlindungan tersebut dengan jalur autofagi dan lisosom dalam model ini.
Hasil pensinyalan adalah bagian yang paling sering dikutip secara keliru. Pensinyalan AMPK, yang dinilai melalui AMPK terfosforilasi dan target hilirnya ACC terfosforilasi, meningkat pada 12 dan 24 jam secara bergantung dosis. Inhibitor AMPK Compound C, yang diberikan pada 20 μM selama 4 jam terakhir, mengurangi fosforilasi ACC maupun aktivasi LC3. Sebaliknya, mTOR terfosforilasi tidak menunjukkan penekanan yang dapat dideteksi. Jadi, pada sel hipokampus yang mengalami stres, temuannya adalah induksi terkait AMPK melalui jalur yang tampaknya tidak bergantung pada mTOR. Pola yang sama juga terlihat pada tikus hidup, ketika perlakuan biru metilena menginduksi penanda makroautofagi di korteks dan hipokampus.
Induksi bukanlah fluks yang telah selesai
Di sinilah perbedaan konsep menjadi paling penting. Induksi berarti mesin hulu menghasilkan lebih banyak autofagosom. Fluks berarti muatan menempuh seluruh jalur: sekuestrasi, pematangan, fusi dengan lisosom, degradasi, dan daur ulang. Setiap peningkatan LC3-II baru dapat dianggap sebagai klaim induksi sampai uji fluks mengonfirmasi sisa perjalanan tersebut.
Uji fluks standar mengukur LC3-II dengan dan tanpa penghambatan lisosomal singkat seperti bafilomycin A1 atau klorokuin. Jika perlakuan tersebut benar-benar mempercepat produksi, penghambatan penghancuran seharusnya mendorong LC3-II menjadi lebih tinggi lagi. Reporter tandem mCherry-GFP-LC3 memberikan sudut pandang kedua: struktur berpendar kuning sebelum fusi lisosom dan hanya merah setelah kondisi asam memadamkan sinyal GFP, sehingga lebih banyak puncta yang hanya merah mendukung progresi menuju autolisosom yang bersifat asam. Penurunan protein p62 dapat memperkuat bukti turnover muatan, dengan catatan bahwa transkripsi p62 sendiri merespons stres dan sebaiknya diperiksa pada tingkat mRNA.
Daftar periksa di bawah ini memetakan setiap uji yang digunakan dalam literatur ini terhadap apa yang diukurnya dan apa yang tidak dapat dibuktikannya jika berdiri sendiri. Pembaca dapat menggunakannya kembali untuk mengevaluasi klaim makroautofagi apa pun di masa mendatang, termasuk argumen tentang puasa dan umur panjang yang menggunakan penanda-penanda ini.
| Uji | Apa yang diukur | Apa yang tidak dapat dibuktikan jika berdiri sendiri |
|---|---|---|
| Tingkat LC3B-I | Ukuran kumpulan prekursor sitosolik yang tersedia untuk lipidasi | Aktivitas autofagi; sintesis dan pemrosesan juga mengubahnya |
| Tingkat LC3B-II | Jumlah LC3 yang terikat membran pada struktur autofagik | Fluks yang telah selesai; peningkatan dapat berarti produksi lebih cepat atau pembersihan yang terhambat |
| Puncta LC3 dan agregasi perinuklear | Redistribusi LC3 ke dalam struktur vesikular | Arah perubahan; gambar statis tidak dapat membedakan percepatan dari kemacetan proses |
| LC3-II dengan versus tanpa klorokuin atau bafilomycin A1 | Apakah autofagosom baru terus terbentuk ketika pembersihan dihambat | Degradasi muatan sepenuhnya; diperlukan paparan inhibitor singkat yang telah dioptimalkan |
| Tingkat protein p62 | Turnover adaptor muatan yang biasanya dihancurkan dalam autolisosom | Fluks murni; jalur stres juga mengatur transkripsi p62 |
| Reporter tandem mCherry-GFP-LC3 | Progresi menuju autolisosom asam (pergeseran dari kuning menjadi hanya merah) | Degradasi lengkap setiap jenis muatan |
| Phospho-AMPK dan phospho-ACC | Keterlibatan sensor stres energi dan keluaran sinyalnya | Bahwa autofagi menyebabkan efek kelangsungan hidup; AMPK mengontrol banyak cabang metabolik |
| Phospho-mTOR, p70S6K, 4EBP1 | Aktivitas jalur pensinyalan pertumbuhan yang menahan autofagi | Fluks; ini adalah sinyal izin di hulu, bukan pembacaan proses pembuangan |
Perhatikan satu jebakan istilah yang diantisipasi oleh tabel tersebut. ACC terfosforilasi adalah bentuk yang secara enzimatis terhambat. Peningkatannya menunjukkan keluaran AMPK, bukan aktivasi ACC.
Frasa "penghambatan makroautofagi menghapus neuroproteksi" memerlukan ketepatan yang sama. Dalam model HT22, artinya adalah bahwa gangguan pada jalur autofagi dan lisosom menghilangkan keuntungan kelangsungan hidup dari biru metilena dalam kondisi deprivasi serum. Hal tersebut mendukung autofagi sebagai faktor yang diperlukan atau berkontribusi dalam model kultur sel tersebut. Hal itu tidak menetapkan autofagi sebagai satu-satunya mekanisme perlindungan senyawa ini, tidak membuktikan bahwa klorokuin bekerja secara eksklusif melalui autofagi, dan perturbasi genetik terhadap ATG5, ATG7, atau ULK1 diperlukan untuk memperkuat klaim kausal tersebut.
Dua jalur menuju mesin yang sama
Peta yang disederhanakan membantu menjelaskannya. Stres energi mendorong AMPK naik, AMPK mengaktifkan kompleks ULK1, dan autofagi dimulai. Faktor pertumbuhan dan nutrien mendorong mTORC1 naik, mTORC1 menghambat ULK1, dan autofagi tetap tidak aktif. Di hilir ULK1, kompleks Beclin-1 dan VPS34 menukleasi fagofor, LC3-I mengalami lipidasi menjadi LC3-II, autofagosom menutup, menyatu dengan lisosom, dan muatan didegradasi sementara p62 mengalami turnover.

Diagram tersebut menempatkan setiap temuan biru metilena pada peta ini: hasil hipokampus di samping cabang AMPK, dan hasil progenitor di samping cabang mTOR.
Kerangka ini menjelaskan ketegangan yang tampak dengan studi Xie kedua. Pada sel progenitor saraf tikus yang berproliferasi, eksperimen terpisah menemukan bahwa 5 μM biru metilena menghambat proliferasi dan mendorong keadaan quiescence, dengan jumlah sel positif Ki67 menurun pada hari 1 dan 3, sementara diferensiasi neuronal yang telah berkomitmen tetap utuh. Di sana, mekanismenya berjalan melalui pensinyalan mTOR yang ditekan: penurunan mTOR total dan mTOR terfosforilasi disertai ekspresi p70S6K dan 4EBP1 yang lebih rendah, serta down-regulation cyclin E1, B1, D1, dan D2. Fenotipe dominannya adalah quiescence progenitor, yang oleh para penulis dikaitkan dengan penundaan senescence, bukan penyelamatan sel hipokampus yang mengalami stres.
Tidak ada kontradiksi antara kedua makalah tersebut. AMPK dan mTOR adalah integrator yang sensitif terhadap konteks, bukan sakelar tetap. Sel mirip neuron yang mengalami stres dapat mengaktifkan AMPK tanpa penghambatan mTOR yang dapat diukur, sementara progenitor yang didorong oleh mitogen dapat merespons senyawa yang sama dengan membatasi mesin pertumbuhan yang bergantung pada mTOR. Jenis sel, konteks stres, konsentrasi, dan titik waktu menentukan cabang mana yang dominan. Itu juga sebabnya efek biru metilena terhadap energi mitokondria dan redoks termasuk dalam gambaran yang sama: seperti dijelaskan dalam tinjauan mekanistik tentang neuroproteksi, senyawa tersebut bertindak sebagai pembawa elektron alternatif, melibatkan pensinyalan antioksidan dan antiapoptosis, menghambat MAO dan NOS, serta terhubung dengan pembaruan mitokondria melalui biogenesis dan autofagi. Autofagi adalah salah satu cabang dari profil pleiotropik, bukan keseluruhan mekanismenya.
Apa yang tidak ditunjukkan oleh eksperimen tersebut
Deprivasi serum memodelkan stres trofik dan metabolik dalam kultur. Kondisi tersebut tidak memodelkan puasa pada seluruh organisme: glukosa, asam amino, dan garam tetap ada dalam medium basal, dan tidak ada perilaku makan. Konsentrasi kultur dari 20 nM hingga 5 μM tidak dapat dikonversi menjadi dosis manusia hanya dengan perhitungan aritmetis, karena absorpsi, pengikatan protein, keadaan redoks, metabolisme, akumulasi jaringan, dan waktu paparan semuanya berbeda.
Belum ada uji klinis manusia yang dirancang untuk menunjukkan fluks autofagik yang diinduksi biru metilena pada pasien. Bukti mekanistik masih berasal dari penelitian seluler, ex vivo, dan hewan, dan berbagai tinjauan masih menggambarkan bukti translasi sebagai tahap awal. Jadi, studi-studi ini tidak menunjukkan bahwa biru metilena mereplikasi puasa, memperpanjang umur manusia melalui autofagi, atau menyelesaikan fluks autofagik di otak manusia. Klaim tentang mimetik puasa dan umur panjang memerlukan bukti klinis tersendiri, dan uji biru metilena pada manusia untuk indikasi lain tidak otomatis menjadi uji autofagi hanya karena keterkaitannya. Penelitian tentang stres nutrien dan model umur panjang harus dibaca dengan batasan tersebut tetap jelas.
Untuk makalah berikutnya yang Anda baca, terapkan daftar periksa secara berurutan. Pertama, tanyakan cabang mana yang berubah: AMPK, mTOR, atau keduanya tidak. Lalu tanyakan apakah hasil LC3 dipasangkan dengan uji fluks atau berdiri sendiri. Kemudian periksa apakah penghambatan jalur tersebut menghilangkan manfaat, dan dengan metode apa. Studi yang menjawab ketiganya telah memberikan dasar bagi klaim mekanistik yang kuat. Studi yang hanya menjawab pertanyaan pertama baru menunjukkan sinyal izin, sementara sisa jalurnya masih belum dipetakan. :::